 Newshot
正文
东亚和东南亚地区早、晚期直立人(H. erectus)的发现构成了亚洲地区古人类进化史的关键部分,而中国正处于理解该物种扩散、互动与适应的关键位置6,7,8。中国拥有丰富的直立人化石记录,包括元谋(距今170万年)9,10,11、公王岭(距今160万年)12、周口店(距今78万至40万年)13、南京(约距今65万年)14和和县(距今41万年)15(补充信息1)。然而,这些遗址大多位于中国北方和中部,而在中国南方,尤其是中更新世期间,能够被可靠鉴定和测年的直立人化石明显十分罕见。这使得确定其生态偏好尤为困难。此外,中国几乎完全没有较晚的直立人(距今不足40万年)的证据。考虑到直立人在爪哇的 Ngandong 一直延续到距今11.7万至10.8万年2,这一时间上的空白尤为引人注目,并引发了关于该物种在中国大陆的分布、生态适应及最终命运的根本性问题。
确立直立人的环境背景对于理解该物种的生态灵活性和适应能力至关重要。爪哇 Ngandong 最晚的直立人2在雨林向该地区扩张时存续于林地避难所中,这引发了关于不断蔓延的郁闭冠层森林是否促成了该物种最终灭绝的疑问2,16。然而,针对直立人证据的稳定同位素研究极为稀少,因为相关材料往往受限于成岩蚀变3。近期研究对非智人(non-H. sapiens)中更新世古人类是否具备开发利用热带雨林环境的适应能力存在争议17,18。因此,研究中更新世和晚更新世热带中国南方的森林景观19,为评估直立人的生态适应提供了一个关键的检验案例。此外,通过锶同位素分析等技术理解移动模式,可以揭示这些人群如何利用其景观,以及他们如何在更广泛的区域尺度上与同期人群相联系20,21。
自更新世以来,中国南方的热带森林和草原环境为北半球纬度地区与岛屿东南亚之间的动物群扩散提供了关键的生物地理走廊22,23,24。该地区的喀斯特景观和洞穴系统已产出丰富的更新世动物群组合,但目前尚无明确证据表明直立人是该地区大熊猫-剑齿象动物群(Stegodon–Ailuropoda fauna)的一部分6。这引发了一系列问题:中国南方直立人的缺席——尤其是在中更新世晚期——究竟是由于生态约束阻止了直立人开发利用中国南方的热带森林环境18、构成了有效的生物地理屏障25,还是源于其他因素,例如研究强度的不均衡7、该物种因经由西藏走廊的替代扩散路线而真正缺席于该地区6、许多脱离地层的牙齿缺乏可靠的测年数据、对破碎遗骸的误鉴定(尤其是与形态相似的猩猩属(Pongo)牙齿26相混淆)、热带环境中的埋藏学与保存偏差18、较低的人口密度导致化石代表性降低27,或占据了不易在洞穴沉积中保存的生态位18。要区分这些情形,需要测年可靠、鉴定稳健且具有详细环境背景的古人类化石——而这类证据一直缺失。
为给来自华南 Baxian 和 Naxian 洞穴的八枚 H. erectus 牙齿6(Fig. 1、Supplementary Information 2 和 3 以及 Extended Data Figs. 1–3)提供时间和环境背景,我们使用五种独立的测年技术来约束沉积物:长石的 post-infrared infrared-stimulated luminescence(pIR-IRSL)测年、石英的光释光(OSL)测年(Supplementary Information 4)、化石牙齿的铀系(U-series)测年(Supplementary Information 5)、化石牙齿的联用铀系–电子自旋共振(US-ESR)测年(Supplementary Information 6)以及覆盖碳酸盐流石的铀系测年(Supplementary Information 7),所有这些都通过使用两个贝叶斯年龄模型——ChronoModel 和 OxCal(Supplementary Information 8)——进行整合。环境重建通过动物群分析(Supplementary Information 3)、动物群和 H. erectus 牙齿釉质的整体与序列稳定同位素分析(Supplementary Information 9)以及洞穴沉积物的团簇同位素测温(Supplementary Information 10)实现。最后,我们通过激光剥蚀微量元素填图和人科牙齿釉质的锶同位素分析评估了个体迁移模式,并结合利用随机森林机器学习构建的区域锶同位素景观(isoscape)来识别潜在来源区域(Supplementary Information 11)。这些多 lines of evidence 在中国和澳大利亚的实验室重复验证,据我们所知,提供了华南晚期 H. erectus 的首个综合时间、环境和行为背景。
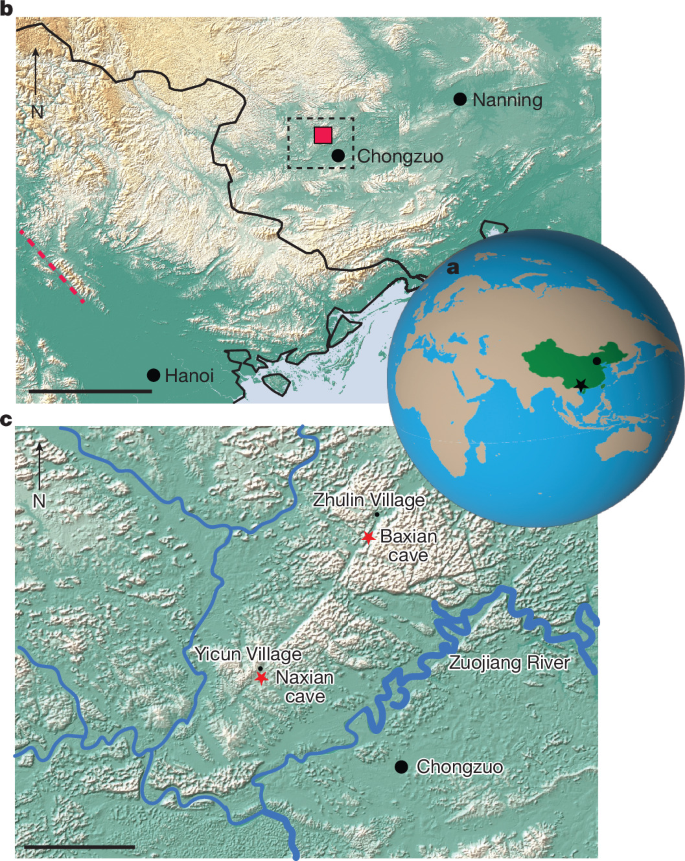
Naxian 和 Baxian 洞穴相距 15 km,分别位于崇左市西北 13 km 和以北 20 km,由一条笔直的喀斯特谷地廊道相连(Fig. 1、Extended Data Fig. 1a,b,e,f 和 Supplementary Information 2)。两者都是海拔 226 和 218 m 的水平洞穴,位于谷底以上 5–7 m(Extended Data Fig. 2),每个洞穴后部都有小型化石洞室(Fig. 2)。这些洞室包含极其相似的致密、胶结的碎裂角砾岩,已产出合计超过 18,000 件哺乳动物化石,最初由豪猪28 堆积,其中包括人科遗存(Supplementary Information 2)。含化石角砾岩(Extended Data Fig. 3)被厚层流石覆盖,下伏较年轻的混合沉积物(Extended Data Fig. 1d,h)。这种相似性表明其沉积于可比的环境条件下。
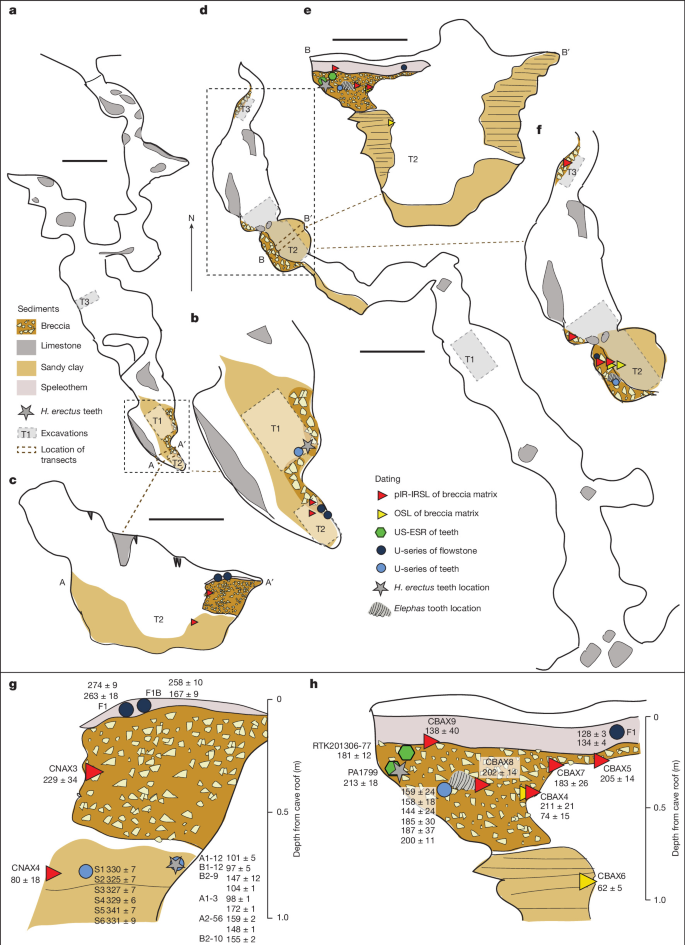
a,Naxian cave 的洞穴平面图,显示探方(T1–T3)以及洞穴后部化石洞室的位置。b,a 中探方 T1 和 T2 及化石洞室的放大示意图,显示采样点之间的空间关系。c,依据 a 中 A–A′ 位置绘制的化石洞室和 T2 发掘探方的横截面地层剖面,显示角砾岩、流石和下伏混合单元中的采样位置。d,Baxian cave 的洞穴平面图,显示洞穴后部两个化石洞室的位置以及探方(T1–T3)的位置。e,依据 d 中 B–B′ 位置绘制的化石洞室和 T2 发掘探方的横截面地层剖面,显示与图例相对应的采样位置。f,放大的化石洞室,显示 d 中 T2 和 T3 探方内采样的空间位置。g,h,Naxian(g)和 Baxian(h)洞穴的综合地层,显示流石、角砾岩和下伏砂质黏土中的采样位置。在每个位置,符号指代图例中的测年技术,并已包含采样编号和结果。比例尺,5 m(a),1 m(c,e),10 m(d)。
在来自两个洞穴的 45 个放射性测年结果中(Extended Data Figs. 4–7),有 43 个进行了建模,并给出了相似的建模年龄估计(OxCal:312–161 ka;ChronoModel:在 2σ 不确定性下为 324–184 ka;Extended Data Fig. 8),但由于 ChronoModel 结果具有更强的异常值稳健性和更可靠的年龄下限,因此采用了 ChronoModel 结果。这些结果表明,Baxian caves 的 H. erectus 化石证据年龄在 324 至 184 ka 之间,Naxian caves 的在 319 至 241 ka 之间。这些误差范围重叠且大体同时,表明 H. erectus 在 324 至 184 ka 之间某个时间出现在该地区的概率为 95%(所有测年表格、数据以及对局限性、不确定性和模型选择的讨论见 Supplementary Information 4–8;Fig. 3)。这些洞穴约 78,000 年的重叠年龄不确定性表明,它们在该地貌景观上同时或近乎同时存在。建模年龄在所有五种测年技术各自的不确定性范围内一致,为该地区 H. erectus 存在的时间提供了可靠约束。
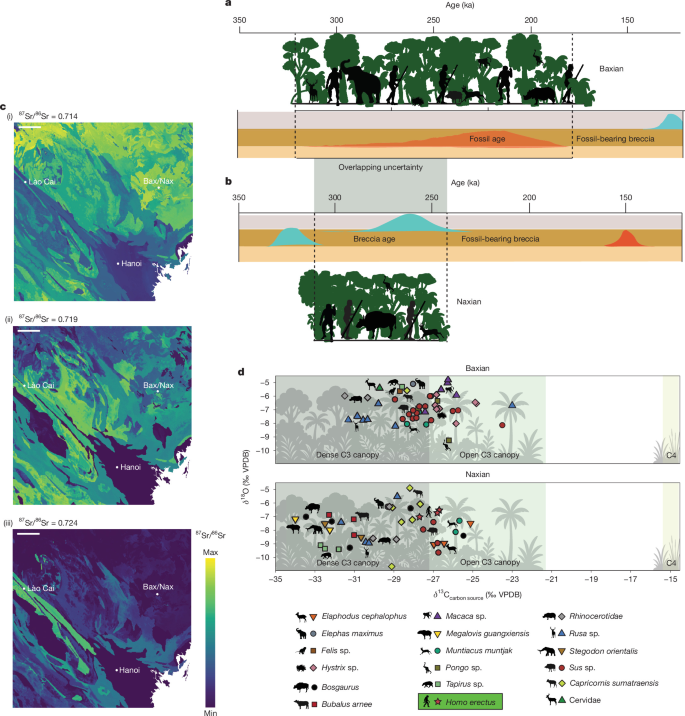
a,地层(上覆流石、含化石角砾岩和下伏黏土)以及使用ChronoModel对Baxian洞含化石角砾岩模拟的年龄范围(324–184 ka)。该图描绘了此时期的景观,包括封闭的雨林、H. erectus及相关动物群。b,Naxian含化石角砾岩的地层和模拟年龄范围(319–241 ka),以及当时洞穴周围环境的重建。这些洞穴的年龄不确定性在约78,000年期间重叠(绿色框)。这些重建基于c和d中人类和动物遗骸的微量元素和稳定同位素数据。a和b中的虚线分别表示Baxian和Naxian洞的年龄范围,并与每个洞穴的景观图像长度相对应。c,基于在H. erectus中测得的三个不同87Sr/86Sr值——(i) 0.714、(ii) 0.719和(iii) 0.724——计算出的UnionP概率面的地理归属,显示其在中国南方和东南亚北部的移动性。相应的锶同位素景观和完整方法见补充信息11。d,按分类单元划分的δ13C碳源和δ18O值与植被类型的双标图。Baxian(上;324–184 ka)和Naxian(下;319–241 ka)洞动物牙釉质δ13C碳源(植物等效值;‰ Vienna Peedee Belemnite标准 (VPDB))和δ18O(‰ VPDB)的双标图。每个分类单元由颜色和形状的独特组合表示。阴影背景区域表示生态区:密冠层森林(绿色阴影)、C3植被(浅绿色阴影)和C4草地(黄色阴影)。C3和C4之间的无阴影区间代表C3–C4过渡带。该框架允许将动物同位素特征与预期植被状况直接比较。两个地点的大部分分类单元都落在密冠层森林区内,支持了封闭冠层雨林环境的解释。比例尺,50 km (c)。Bax,Baxian;Nax,Naxian。
Baxian和Naxian洞的动物群组合在分类学上多样,组成上极为相似(补充信息3和扩展数据图3)。两个组合都包含许多后来在当地灭绝的分类单元,包括Pongo、Elephas和犀牛Dicerorhinus,尽管大多数在亚洲其他地方仍然存在。值得注意的是,H. erectus、Stegodon和‘Megalovis’在全球范围内已灭绝。栖息地偏好分析表明,两个组合均以森林栖居的分类单元为主(补充图3),这与沉积时期以森林为主的景观一致。
在对Baxian动物牙齿进行基于体重的物种特异性饮食至牙釉质富集因子校正后(补充信息9),其植物等效稳定碳同位素值范围为−31.5至−23.0‰(平均值 = −27.6 ± 1.87‰ (1σ)),而在Naxian洞观察到的较低值范围为−34.0至−25.1‰(平均值 = −29.4 ± 2.45‰ (1σ))。两个组合的值均远低于密冠层森林阈值−27.5‰(参考文献28),没有证据表明存在C4植物消费甚至C3–C4过渡特征(图3和扩展数据图9)。这些数据表明,两个地点的动物饮食碳完全来自C3植被,其冠层相关值的频率超过了赤道非洲雨林系统的报道值29,并与西亚马逊森林的记录值相当30,31,32。鉴于组合中代表的几个分类单元在其他地方已知会利用混合C3–C4资源或在更开阔的环境中在其饮食中纳入大量C4衍生输入16,这一模式尤为显著。
独立的氧同位素(δ18O)与团簇同位素(Δ47)分析进一步支持了上述环境重建结果,指示该地区当时为湿润的热带环境,降水量高于现代值、气温低于现代值(Extended Data Fig. 9 及 Supplementary Information 9 和 10)。
来自那先洞(Naxian cave)的三颗 H. erectus 牙齿(NX-B1、NX-B2 和 NX-A1)显示出同样低位的同位素值,碳值介于 −15.0 至 −14.0‰,落于郁闭林冠森林与较为开阔的 C3 植被之间的边界处。尽管数据集有限(n = 3)且目前仅限于那先地点,这些数值与在规模大得多的动物群组合中所观察到的结果完全一致,并落在以郁闭林冠 C3 植被作为膳食碳来源的消费者所预期的范围内,表明这些晚期 H. erectus 种群利用了热带雨林资源。
对来自坝先洞(Baxian cave)的一具 H. erectus 个体(PA1799)进行的高分辨率微量元素制图得到 87Sr/86Sr 比值介于 0.7110 至 0.7220(Supplementary Information 11 及 Extended Data Fig. 10),而从那先洞采样的三颗 H. erectus 牙齿则显示出相互重叠但各不相同的范围。全部四个个体均表明,其在童年时期(2–6 岁,即牙齿形成期)或在地质上彼此不同的区域之间移动,或消费了来自多个地点的资源。
华南与东南亚北部的区域锶同位素景观图33(Supplementary Information 11)显示,预测的 87Sr/86Sr 比值存在显著的空间异质性,其中坝先–那先局部区域以相对均一的数值(0.710–0.715)为特征,反映了占主导地位的石炭纪–二叠纪石灰岩喀斯特地质(Fig. 3 及 Extended Data Fig. 10)。更具放射成因的特征值(0.717–0.723)出现在西部和西北部由前寒武纪与古生代变质岩构成的山地地区,而中等至更具放射成因的数值(0.715–0.720)则见于南部地区,包括越南北部的红河河谷。
针对人类牙齿剖面中观察到的三个代表性 87Sr/86Sr 值所生成的地理归属概率图表明,这些 H. erectus 个体可能在童年时期于当地石灰岩喀斯特区域与更远地区之间移动,其中最具放射成因的特征值可能指向远至越南北部的地区,该地区连接华南与东南亚大陆(Figs. 1 和 3 及 Extended Data Fig. 10)。
我们的结果表明,H. erectus 在 324 至 184 ka 之间存在于华南(Fig. 3 及 Extended Data Fig. 8),据我们所知,这代表了该物种在中国年代最为可靠的最晚出现记录,也是华南首个具备可靠年代学约束的记录。多种独立测年技术的整合结合贝叶斯年龄建模,为亚洲大陆晚期的 H. erectus 提供了前所未有的时间分辨率。这些发现从根本上改变了我们对该物种在中国存续与分布的认识,将已记录的记录在先前和县与南京的最晚出现14,15 基础上又向前延伸了 20 万年以上,并确立华南为晚中更新世晚期存活种群的关键区域(例如 ref. 19)。
这一发现的时间意义不止于填补一个年代学空白。324–184 ka 的年龄不确定范围将这些 H. erectus 种群置于海洋同位素阶段 9 至 6 之间的某个时点,从而引出一些有趣的问题:它们是否可能与在 Cobra cave(老挝)34、Baishiya cave(青藏高原)35、哈尔滨(中国东北)36,37,38 以及台湾西岸外的澎湖海峡39 发现的 Homo longi(Denisovans)同时存在或发生重叠。中国各地这些不同古人类种群在中更新世晚期的时间接近性表明,生物地理格局比此前认识的更为复杂,多个古人类谱系可能在不同生态带和海拔梯度上共存。
此外,我们的多指标分析所揭示的环境背景,挑战了关于晚期 H. erectus 生态限制和移动模式的流行假设。综合证据明确表明,这些晚期 H. erectus 种群利用了郁闭冠层热带雨林环境,并且可能在童年时期进行了超出当地喀斯特地形的长距离移动。这种雨林利用和移动性的生态意涵十分深远。迄今为止,考古证据曾表明 H. sapiens 是我们属中唯一专门经常利用这些环境的成员18,最早可追溯到西非的 150 ka40,41。在东南亚,近期对中更新世至晚更新世早期 C4 环境减少和雨林扩张的同位素观察,已与晚于 H. sapiens 的古人类分类群的消失联系起来42,43,这些类群似乎无法从稀树草原-林地混合生境转向这些日益郁闭的森林16,44。然而,我们的数据直接挑战这一观点,证明 H. erectus 并未在生态上被排除在雨林环境之外(Fig. 3),并且向这些环境中的长距离移动可能是一种常见行为模式,而非孤立个体的例外行为。
这些发现与爪哇 Trinil3 和 Sangiran4 的早更新世和中更新世 H. erectus 占据情况形成鲜明对比(Extended Data Fig. 9b)。在 Ngandong2 的最年轻爪哇 H. erectus 持续存在于相对开阔的林地避难所2,这引出了雨林扩张可能促成了该物种在爪哇最终灭绝的看法2,16。在东亚和东南亚含早期古人类的遗址中(Extended Data Fig. 9b),Naxian 和 Baxian 洞穴的结果与苏门答腊 Lida Ajer(73–63 ka)最为相似;后者是一个早期 H. sapiens 遗址,同样以郁闭冠层雨林为特征45。这表明 H. erectus 至少能够在雨林动物群中存续,即使此类生境并非其最优生态位。
越南北部地区,如红河谷(Figs. 1 和 3),长期被认为是连接中国南方喀斯特高地与东南亚大陆低地的关键生物地理走廊24。有限的锶同位素证据初步提示,晚期 H. erectus 种群可能利用类似走廊进行季节性移动、长距离迁徙或资源获取。这种穿越大部分封闭环境的大范围活动(可能约 250 km)挑战了关于 H. erectus 活动范围有限的假设,并表明其在景观利用方面具有行为复杂性。
我们的发现共同表明,中更新世晚期的直立人存在于中国南方,与龙人同时生存,并表现出相当大的生态和行为灵活性。这些种群并非如传统假设那样局限于开阔的稀树草原或林地生境,而是持续存在于封闭冠层的热带雨林中,同时可能跨越多样的生态和地质景观进行长距离移动。这一证据挑战了将直立人描述为无法利用复杂热带森林环境的物种的观点。这些适应是否仅局限于中国南方晚期存活的种群还有待观察,但对其他中更新世遗址进行进一步的稳定同位素研究对于解决这一问题至关重要。然而,在324至184 ka之间,中国南方存在形态学和遗传学上确认的直立人,结合环境证据和推测的移动性证据,足以有必要重新评估该物种在亚洲大陆的适应能力、生物地理范围和最终命运。
方法
洞穴学与发掘技术
这些洞穴是通过当地知识和对后室角砾岩的针对性勘察寻找发现的。洞穴内探坑的位置是根据这些勘察调查选定的。发掘网格基于洞穴通道的形状和富含化石沉积物的分布。使用手提钻破碎化石角砾岩块,并使用地质锤提取化石。精细清理、鉴定和编目在山东大学和古脊椎动物与古人类研究所(IVPP)的实验室中进行。
角砾岩基质的发光测年
在昏暗红光条件下对两个洞穴化石洞室的含化石角砾岩及相关沉积物进行了原位采样(图2a,d),并采用标准的样品纯化程序进行石英和长石分离,包括分别用40%和10%的氢氟酸洗涤45分钟和10分钟46。90–125 µm长石和180–212 µm石英或长石颗粒的单测片在Riso TL-DA-20中处理,该设备配备自动DASH装置、双激光单颗粒附件47以及对蓝光和紫外光敏感的电子管光电倍增管(PDM9107Q-AP-TTL-03),长石使用蓝色滤光片组(Schott BG-39,2 mm,和Corning 7-59,4 mm),石英使用U340滤光片(2 × Hoya U340,3.5 mm)。数据使用Sequence Pro v.4.65采集,并在Analyst v.4.57、DRAC v.1.3以及在Microsoft Excel 365 v.2607中设计的电子表格上进行分析。长石等效剂量根据异常衰减测试的结果进行校正(使用每十倍频2.0 ± 0.2%的加权平均衰减率)48,但未进行残余校正,然后将长石和石英的等效剂量分别通过单测片结果的中心年龄模型或最小年龄模型49运行,以识别埋藏前经历最多晒退的单颗粒群体。所有发光分析均在澳大利亚悉尼麦考瑞大学的“Traps”发光测年设施进行。
中国南方晚期 Homo erectus 的雨林适应
在实验室中,对干燥并粉碎的沉积物样品采用 Geiger–Muller 多计数器 β 计数和厚源 α 计数估算 238U、235U、232Th 和 40K 的测量值,并结合野外的原位 γ 能谱测量。相应的(干)β 和 γ 剂量率使用 ref. 50 中的转换因子和 ref. 51 中的 β 剂量衰减因子获得。宇宙射线剂量率根据先前发表的关系52 估算,并考虑样品所在地的沉积物覆盖层(范围为 3.99 至 0.20 m)、海拔(范围为海拔 2,000 至 176 m)以及采样点的地磁纬度和经度。
牙齿铀系定年
在位于中国和澳大利亚的两个实验室中,对来自 Naxian(n = 6)和 Baxian(n = 1)洞穴的七颗 H. erectus 牙齿进行了铀系定年分析。铀系测量按照 ref. 53 中的方案,在 Southern Cross University 的 Geoarchaeology and Archaeometry Research Group(GARG)使用激光剥蚀多接收器电感耦合等离子体质谱仪(MC-ICP-MS)进行,并按照 refs. 54,55 在南京师范大学地理科学学院使用 Neptune MC-ICP-MS 进行。激光剥蚀(在 Southern Cross University)使用 New Wave Research 213 nm 激光器进行,钍(230Th、232Th)和铀(234U、235U、238U)同位素在 Thermo Neptune XT MC-ICP-MS 上测量。牙齿以每次 5 min 的 raster 进行剥蚀,并在前后用标准物质测量。在南京使用常规阴离子交换色谱分离铀和钍,然后通过 DSN-100 脱溶雾化器系统将 U–Th 溶液引入 MC-ICP-MS。使用允许同时测量 U 和 Th 同位素56,57 的检测器配置测量同位素比值。
牙齿铀系–ESR 联合定年
选取
分别从 Naxian 和 Baxian 洞穴原位覆盖流石的新鲜横截面手工钻取子样品,并在昆士兰大学放射成因同位素设施处理(n = 6),另有 6 个 soda straws 和 1 个次生方解石胶结物样品在南京师范大学地理科学学院处理(n = 7)。粉末化子样品经化学处理并通过质谱法进行同位素测量56。洞穴沉积物样品的 U 系测年在昆士兰大学使用 Nu Plasma MC-ICP-MS 进行,分析流程遵循先前关于 MC-ICP-MS 的出版物57,58,59。230Th/234U 年龄使用 Isoplot EX 3.75(文献 60)以及 230Th 半衰期 75,690 年、234U 半衰期 245,250 年(文献 61)计算。洞穴沉积物样品的 U 系测年在南京师范大学使用 Neptune MC-ICP-MS 进行。U 系年龄使用 230Th 半衰期 75,584 年和 234U 半衰期 245,620 年(文献 62)计算。非放射性成因 230Th 采用假定的全地球原子 230Th/232Th 比值 (4.4 ± 2.2) × 10−6 进行校正(文献 54,55)。
建模
使用两个贝叶斯建模程序分析选定的独立年龄估计(n = 43)(补充信息 8),并评估应用于两个遗址的联合测年技术相关的不确定度(补充表 7–15):OxCal(v.4.4.4,见 https://c14.arch.ox.ac.uk/oxcal.html)63 和 ChronoModel(v.3.2.7,https://chronomodel.com/)64。分析纳入单个年龄的概率分布、地层关系施加的约束,以及所报告的某些单个年龄估计的最小或最大性质。每个单个年龄均作为高斯分布纳入(均值和 s.d. 由年龄估计及其相关不确定度定义),每个沉积阶段的最终年龄范围以 2σ 呈现。OxCal 可识别各层之间的边界年龄以约束化石层,ChronoModel 则用于评估可在多大程度上获得相同或相似的数据。为保持透明,两种建模结果均已给出。
稳定同位素分析
来自 Naxian 洞穴的 3 件 H. erectus 标本,以及来自 Baxian 洞穴的 47 颗动物牙齿和来自 Naxian 洞穴的 38 颗(总计 n = 41),经分类学鉴定并按
从 Baxian 的角砾岩中批量采集了三个原位样品(CBAX2、CBAX3、CBAX4),并在 Macquarie GeoAnalytical Stable Isotope Facility 使用 ThermoFisher 双进样 MAT253+ 质谱仪进行了团簇同位素分析。结果使用 Easotope 软件包69 处理。然后对每个样品的最终 Δ47 值求平均并以 95% 置信区间报告,之后使用 ref. 70 中针对 90 °C 反应的校准计算温度。利用这些温度,使用 ref. 71 中的方程计算沉淀流体的氧同位素组成(δ18Ofluid)。
牙齿的微量元素和锶分析
一颗来自 Baxian 的 H. erectus 牙齿用高精度金刚石锯切片,并抛光至大于 5 μm 的平滑度。按照 refs. 19,72 中的程序,在 Southern Cross University 的 GARG,使用与 Agilent 7900 ICP-MS 联用的 ESI NWR193,通过激光剥蚀结合 ICP-MS 进行微量元素分布图分析。使用 40 μm 的激光斑径、80 μm s−¹ 的扫描速度、60% 的激光强度(约 1 J mm−2)和 0.50 s 的总积分时间,生成对应约 40 × 40 μm 像素尺寸的数据点。NIST610 和 NIST612(有证标准参考物质)用于评估信号漂移。对四颗 H. erectus 牙齿进行了锶同位素分析(87Sr/86Sr):一颗来自 Baxian 洞穴,三颗来自 Naxian 洞穴,同样在 GARG 设施使用激光剥蚀 MC-ICP-MS。根据分布图结果,从铀浓度低且元素特征与周围牙本质明显不同的区域小心提取釉质碎片。为将所获得的 87Sr/86Sr 值置于背景中并评估潜在流动模式,构建了中国南方和东南亚北部的区域锶同位素景观图。该同位素景观图建模基于随机森林集成机器学习分析,改编自 ref. 33 开发的原始脚本,并遵循 ref. 21 中完整描述的方法。
报告摘要
有关研究设计的更多信息可在与本文关联的 Nature Portfolio Reporting Summary 中获取。