 Newshot
正文
神经科学的一个核心目标是刻画神经回路相继节点之间发生的计算变换。在视觉系统中,这需要界定视网膜信号在向更高级脑中枢上行时被整合和处理的机制。其中,运动信号尤其突出,为捕食性追踪、逃逸和空间导航等关键行为提供感觉基础9,10。在过去半个世纪中,人们已发现各种脑区的神经元会对视觉运动作出反应。一种尤其常见的运动敏感性形式是对沿特定方向运动的刺激的偏好,这种特性被称为方向选择性,已在视网膜、SC 和皮层中观察到1,2,3,4,5。然而,不同脑区中方向选择性细胞类型之间的关系尚不清楚,这也使得方向选择性活动在视觉层级不同阶段如何被使用和变换同样不清楚。一个关键障碍是缺乏连接图谱来指导理解数十种不同的视网膜神经节细胞(RGC)类型与 SC 等靶区中同样多样的神经元细胞类型之间的信息流。在这里,我们描述了一个技术平台的开发,该平台使我们能够弥补这些知识空白。
绘制神经回路的努力已产生多种多样的方法,但现有的“金标准”方法在可扩展性和分子鉴定方面面临相当大的限制。尽管电子显微镜可提供高分辨率重建11,12,13,14,但它仍无法与突触前和突触后伙伴的分子谱分析兼容,并且目前对于全脑哺乳动物应用并不实际。类似地,通道视紫红质辅助回路图谱绘制(CRACM)12 和 Patch-seq15,16 等生理学技术可提供精确的功能数据,但受限于低通量。近期基于测序的策略(如 Retro-Seq、Project-Seq、VECTOR-Seq、MAPseq 和 BARseq)17,18,19,20,21 通过使用 RNA 条形码以高通量定义起始神经元的投射靶标,推动了该领域发展,但这些策略追踪的是脑内的轴突投射靶标,并不鉴定这些区域内的突触靶细胞类型。此外,这些方法通常依赖组织显微切割,因而丢失了解剖学背景。这些限制凸显了对下一代、易于采用的方法的需求,以在细胞类型分辨率下进行全面连接图谱绘制。
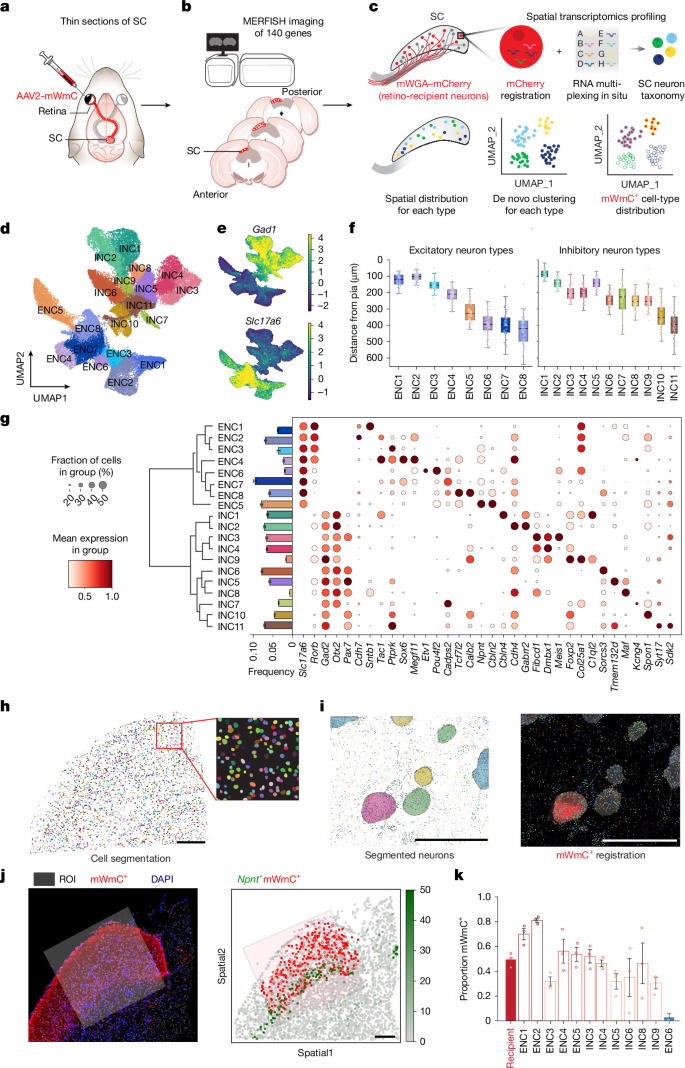
为填补这一空白,我们特别聚焦于突触靶细胞类型的全面图谱绘制,将遗传编码的顺行荧光跨神经元示踪剂 mWGA–mCherry (mWmC)6(图 1a)与空间转录组学技术 MERFISH7,8(图 1b)整合在一起。我们将这一组合平台命名为 TransA-MERFISH,它需要两项重大技术进展。首先,我们建立了一套实验工作流程,使顺行跨神经元示踪剂免疫染色与基于 MERFISH 的空间转录组学能够结合。其次,我们开发了一个自动化数据处理流程,用于对齐连接性与转录组数据——也就是说,将来自顺行示踪剂的荧光信号叠加到由 MERFISH 中多重 RNA 信号得到的空间分辨神经身份数据上(图 1c)。随后,我们应用 TransA-MERFISH 研究视觉神经科学中前述悬而未决半个世纪的问题:方向选择性神经元类型与视觉层级不同阶段计算之间的关系。我们使用 TransA-MERFISH 建立了 ooDSGCs 下游的综合性、细胞类型分辨的接线图;ooDSGCs 是一类已被充分研究的 RGC 亚类,对沿四个基本方向之一——鼻侧、颞侧、背侧或腹侧——运动的刺激具有选择性22,23。利用 Cre 转基因小鼠,我们绘制了偏好特定方向的 ooDSGCs 在 SC 中的突触靶细胞类型24,25,26。我们意外发现,尽管 ooDSGCs 强烈支配若干 SC 细胞类型,但它们并不支配先前一项研究27声称在 SC 中最具方向选择性的细胞类型。这些令人意外的结果通过多种遗传学、解剖学和电生理学测试得到验证。随后对消融视网膜方向选择性回路前后 SC 活动的体内成像研究证实,计算上不同的 ooDSGC 依赖性和 ooDSGC 非依赖性方向选择性细胞类型在 SC 中混杂在一起。我们的研究确立了 TransA-MERFISH 作为生成细胞类型水平接线图的高通量方法,并揭示了视觉运动检测的不同计算策略。
TransA-MERFISH揭示不同的视网膜后方向选择性回路
a–c,TransA-MERFISH工作流程示意图。a,将AAV2-mWGA-mCherry递送到左侧视网膜,以便将mWmC从所有RGCs跨神经元传递到右侧SC中的视网膜接受神经元。b,在注射后4周(4 wpi),对sSC进行成像。c,使用140个基因面板对sSC神经元进行分类。抗RFP免疫染色用于在MERFISH分割图谱中识别mWmC+细胞。d,e,统一流形近似与投影(UMAP)图,将sSC神经元分类为8个ENC和11个INC(d),并叠加Slc17a6(兴奋性神经元)和Gad1(抑制性神经元)表达(e)。f,所有簇的胞体沿背腹轴的中位位置。箱线图显示中位数,箱的下界和上界分别代表第25和第75百分位数。须线表示最小值和最大值。g,左,树状图,表示簇之间的转录组相似性。中,条形图显示簇频率。右,每个ENC或INC的sSC标记基因点图。对于d–g中的数据,n = 16只小鼠,46,277个细胞。h,i,RNA转录本分割和配准(h)以及mWmC叠加(i)的样本图像。颜色深浅表示由Cellpose生成的细胞掩膜边界,每个点代表一个不同的转录本。mWmC+细胞(红色神经元)使用对照衍生的荧光强度阈值对红色荧光强度分布进行量化(方法)。比例尺,200 µm(h)和25 µm(i)。来自五次独立实验的代表性图像,结果相似。j,在sSC样本切片上的mWmC配准。左,DAPI和mWmC的最大强度投影图像与白色分割细胞掩膜叠加。右,Npnt(ENC5标记)表达叠加在mWmC配准上。比例尺,200 µm。ROI,感兴趣区域。k,条形图报告所有视网膜接受神经元簇。49.3 ± 3.3%(平均值 ± 标准误)的sSC神经元被注释为接受者。n = 3只小鼠。数据以平均值 ± 标准误表示。P < 0.05,P < 0.01,P < 0.001,****P < 0.0001;NS,不显著(P ≥ 0.05)。
在固定组织中适配MERFISH用于分类
TransA-MERFISH 揭示视网膜下游发散的方向选择性环路
基于单细胞 RNA 测序(scRNA-seq)的方法为理解神经元分类体系奠定了基础,包括覆盖整个 SC 区域28,29的 scRNA-seq 研究。然而,这些方法需要组织解离和基于微流控的单细胞分离,这降低了空间分辨率、细胞类型鉴定的完整性以及大规模图谱构建的可扩展性。因此,我们开发了一种将顺行跨神经元示踪与空间转录组学(MERFISH)相结合的样品制备方案。由于已建立的 MERFISH 方案使用新鲜冷冻组织以最大化 RNA 保存30,31,它与针对蛋白标志物(例如顺行跨神经元示踪剂 mWmC)的免疫染色不兼容。因此,我们开发了一种在固定组织上进行 MERFISH 的方案。为评估该方案,我们试图创建接受视网膜输入的浅层 SC(sSC)中 SC 神经元的参考图谱(图1c)。我们参考现有 scRNA-seq 数据6,19,28,选择 140 个神经元类型标志基因,用于对浅层 SC(sSC)中接受视网膜输入的神经元进行分类(图1b、扩展数据图1e,f和2f,i及方法)。我们开发了一种灌注-固定 MERFISH 方案,确保与新鲜冷冻组织相比 RNA 完整性和神经元形态未受损,同时保留蛋白定位(扩展数据图1a–d和方法)。随后我们在 sSC 上进行 MERFISH,之后进行基于 Cellpose 的分割(如过去在小鼠大脑中的 MERFISH 研究31),覆盖了所有 sSC 神经元(图1h,i和方法)。该流程将 sSC 神经元分为 8 种兴奋性细胞类型(ENC1–8,由 Slc17a6 标记)和 11 种抑制性细胞类型(INC1–11,由 Gad1 标记)(图1d–g和扩展数据图1g–j)。改良 TransA-MERFISH 方案获得的 SC 细胞分类数据质量(扩展数据图3a–e)与几个已发表的 scRNA-seq 数据集19,27,28(扩展数据图2c,e–j)以及 Allen Brain Atlas 数据集30中报告的细胞类型和超类型(扩展数据图2a,b)密切匹配。这些数据共同验证了在固定组织中进行 MERFISH 的可行性。
对空间分布的分析发现,每个 ENC 簇都局限于沿背-腹轴的一个特定亚层(图1f和扩展数据图4f),这与过去在啮齿类和斑马鱼中的观察一致6,32,33,34。INC1、INC2、INC5 和 INC6 也局限于沿背-腹轴的特定亚层,而 INC3、INC4 和 INC7–11 则分布在多个亚层中(图1f和扩展数据图4g)。此外,我们观察到所有 ENC 和 INC 沿前-后轴和内侧-外侧轴的一致分布,这在很大程度上遵循亚层排列,没有层交换(扩展数据图4a–e)。总体而言,MERFISH 数据以单细胞类型分辨率绘制了 sSC 神经元沿背-腹轴的亚层分布。每个簇在扩展数据表1中进一步比较和定量。
将 mWmC 配准到每个 MERFISH 簇
在建立了与免疫染色兼容的 MERFISH 方案并创建了 sSC 细胞类型图谱之后,我们接下来试图将细胞连接信息叠加到该图谱上。为此,将编码 mWmC 的腺相关病毒(AAV)递送到左眼,以实现对所有 RGC 类型的近乎完全覆盖(图1a和扩展数据图6a)。mWmC 蛋白被顺行且单突触地转移到对侧(右侧)sSC 中 RGC 的突触靶标,该区域接受约90% RGCs35 的支配。随后,我们对固定组织进行 MERFISH,并在同一台显微镜上进行抗 RFP 免疫染色,以便与 MERFISH 数据进行配准。结果,由抗 RFP 免疫染色鉴定的 mWmC 信号可以清晰地与基于 RNA 的 Cellpose 分割掩膜配准(图1i,j和方法)。给定 RGC 起始神经元下游 SC 中的所有 mWmC+ 神经元均可通过成像方法捕获,并使用 MERFISH 进行分子鉴定。基于共配准的 mWmC 信号和 MERFISH 转录本,我们建立了一个计算流程,以单细胞分辨率将 mWmC 信号分配给分割后的神经元,随后进行人工校对(图1i,j和方法)。优化后的工作流程实现了高通量配准。该计算流程确定每个神经元簇中 mWmC+ 神经元的百分比,从而在细胞类型分辨率上提供连接的定量度量(图1k和方法)。我们将这一整合工作流程称为 TransA-MERFISH,因为它将顺行跨神经元示踪与基于 MERFISH 的细胞分类相结合,以读出连接性。
利用 TransA-MERFISH,我们检查了所有 RGC 的突触靶细胞类型。大约一半(49 ± 3%,平均值 ± 标准误)的 sSC 神经元具有可检测的 mWmC 信号(图1k)。在由 MERFISH 定义的 sSC 神经元类型中,8 种 ENC 中的 5 种和 11 种 INC 中的 6 种根据高于基线的 mWmC 信号被归类为接受视网膜输入的神经元,包括我们最近证明为接受视网膜输入的一种细胞类型(Npnt+)6(图1k和图2a,c以及扩展数据图3f–h)。值得注意的是,sSC 中的多种 ENC 和 INC 未接受 mWmC,因此未被归类为接受 RGC 输入的神经元,包括先前6被表征为不接收视网膜输入的细胞类型(Etv1+)(图1k和图2c,o)。因此,这些数据表明 TransA-MERFISH 具备大规模绘制突触连接的灵敏度和特异性。
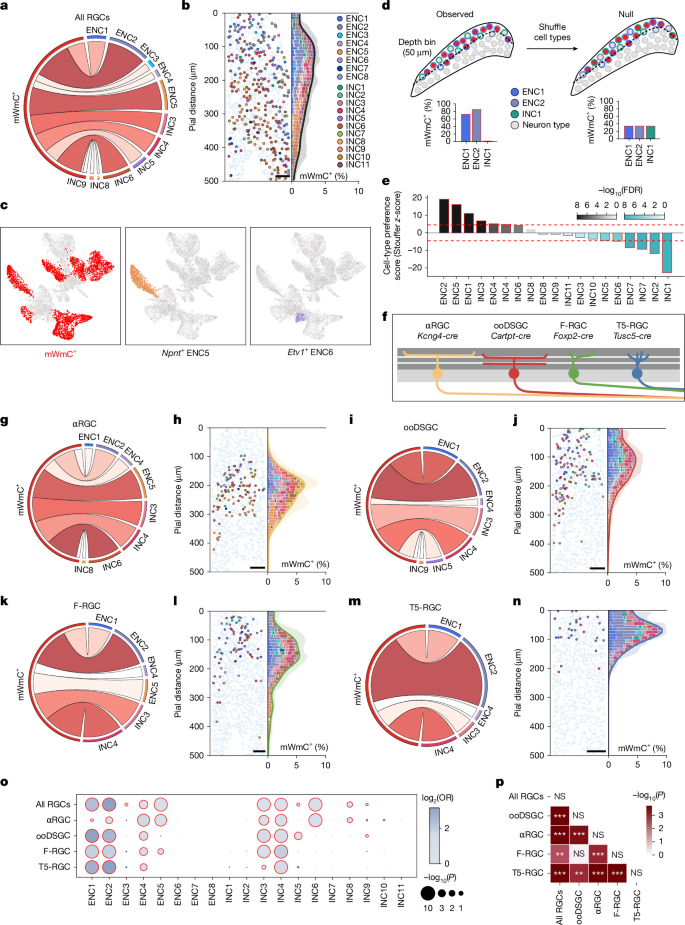
用 TransA-MERFISh 生成的 SC 中所有接受视网膜输入的神经元的空间分辨图谱(图 2b),使得能够在共享的亚层背景内直接比较不同细胞类型之间的连接性。值得注意的是,若干 SC 神经元对尽管占据相似的亚层分布,却表现出不同的 RGC 连接(图 1f 和 2a、b、g–o)。例如,在最浅层的 SC 中,ENC1 和 ENC2 神经元接受视网膜输入,而相邻的 INC1 神经元则不接受;类似地,在稍深的层中,ENC5 和 INC6 神经元接受视网膜输入,而相邻的 ENC6 神经元则不接受。这些观察表明,仅凭亚层位置不足以解释 RGC 轴突的突触靶向。为了检验分子细胞类型身份是否在亚层组织之外还贡献于突触特异性,我们实施了一个基于置换的框架,其中细胞类型标签沿背腹轴在深度分箱内被随机打乱(图 2d 和方法)。该过程保留了 mWmC 标记的亚层分布,同时破坏了分子身份与连接性之间的关联。细胞类型特异性通过将每种细胞类型观察到的 mWmC 富集或耗竭与置换得到的零分布进行比较来量化。使用这种方法,我们鉴定出多个接受视网膜输入的聚类,包括 ENC1、ENC2 和 ENC5,在考虑亚层位置后,这些聚类显示出 mWmC 标记的显著富集(图 2e)。相比之下,多个不接受视网膜输入的聚类,包括此处表征的 INC1 和 ENC6,相对于亚层预期表现出显著耗竭(图 2e、p)。综合来看,这些结果表明,RGC 轴突以细胞类型特异性的方式支配 SC 神经元,而不是仅仅依据其亚层分布;也就是说,分子身份而非亚层分布决定了从视网膜到 SC 的连接特异性。
文章标题:TransA-MERFISH 揭示视网膜后方向选择性回路的差异
正文: a,所有 RGC 的弦图。每条线代表一种 mWmC+ 神经元类型,线的宽度代表 mWmC+ 神经元的数量。b,mWmC+ 细胞在所有 RGC 中的亚层分布及其空间细胞类型组成谱。左,mWmC+ 细胞的空间嵌入图,按分子细胞类型着色,范围从软膜表面 0–500 µm(n = 1,181 个细胞)。右,mWmC+ 神经元的空间分布。彩色线条表示均值。比例尺,20 µm。c,sSC 中所有接受视网膜输入的神经元的 UMAP 图,红色表示被 mWmC 标记的接受视网膜输入的神经元。ENC5(黄色)而非 ENC6(紫色)为 mWmC+。a–c,n = 3 只小鼠。d,置换检验。sSC 神经元类型标签在 50 µm 深度区间内被打乱,同时随机化分子身份。e,使用受亚层控制的置换检验(方法)计算的细胞类型偏好得分(聚合 Stouffer z-score)的排序条形图。条形高度表示跨小鼠合并的 Stouffer z-score。正值表示 mWmC+ 标记的富集超出亚层预期,而负值表示耗竭。f,四种 RGC 亚类的示意图。g,i,k,m,αRGC(g)、ooDSGC(i)、F-RGC(k)和 T5-RGC(m)突触靶细胞类型的弦图。h,j,l,n,mWmC+ αRGC(h)、ooDSGC(j)、F-RGC(l)和 T5-RGC(n)神经元的亚层分布,以及空间细胞类型谱。左,代表性 ROI 的细胞空间嵌入图。n = 829 个细胞(h)、1,423 个细胞(j)、1,256 个细胞(l)和 733 个细胞(n)。右,细胞空间分布曲线。比例尺,20 µm。o,报告所有 TransA-MERFISH 实验中 mWmC+ 细胞富集的点图(方法)。p,如 b,h,j,l,n 中深度分布两两统计比较的 P 值(方法)。在 o,p 中,αRGC,n = 3 只小鼠,7,375 个细胞;ooDSGC,n = 4 只小鼠,10,799 个细胞;F-RGC,n = 3 只小鼠,8,635 个细胞;T5-RGC,n = 3 只小鼠,6,063 个细胞。所有统计检验均为双侧。
我们使用 CRACM 验证了 TransA-MERFISH 的灵敏度和特异性。我们首先检查了 ENC5,它对应遗传标记的 Npnt+ 宽视野神经元6(扩展数据图 5i 和扩展数据表 1)。已知 ENC5 接受强烈的 RGC 输入:54 ± 6%(均值 ± s.e.m.)的 Npnt+ 神经元含有 mWmC 标记(图 1j,k)。CRACM 定量验证了 TransA-MERFISH 的预测,受 RGC 支配的 Npnt+ 宽视野神经元的百分比相当(52 ± 2%,均值 ± s.e.m.)(扩展数据图 5a,b,d)。相比之下,由 Etv1 标记的 ENC6 神经元与 ENC5 处于同一亚层,但在 TransA-MERFISH 数据中不接受直接视网膜输入(图 1k)。一致地,这些神经元在 CRACM 实验中也不接受 RGC 输入(扩展数据图 5a,c,d)。这些结果验证了 ENC5 神经元接受来自视网膜的输入,而 ENC6 神经元不受 RGC 支配这一发现(扩展数据图 5e–h)。总之,这些数据支持 TransA-MERFISH 提供了一个高通量平台,可在细胞类型分辨率上定量定义神经元突触靶细胞类型这一观点。
解码不同 RGC 的神经元输出组
TransA-MERFISH 揭示不同的视网膜下游方向选择性回路
为了证明 TransA-MERFISH 能够发现遗传学定义起始细胞的突触靶细胞类型的能力,我们解析了 SC 中四种检测不同视觉特征的主要 RGC 亚类的突触靶细胞类型36:αRGCs(Kcng4-cre);ooDSGCs(Cartpt-cre);F-RGCs(Foxp2-cre);以及 T5-RGCs(Tusc5-cre)24,37,38,39,40(图 2f 和扩展数据图 6)。这些并行的 TransA-MERFISH 实验产生了细胞类型分辨率下的全面连接矩阵。我们观察到不同 RGC 亚类具有高度不同的突触靶细胞类型组成(图 2g–n)。例如,ENC5(Npnt+)神经元接受 αRGCs 的输入,但不接受 ooDSGCs 的输入,这与我们的 CRACM 和跨神经元示踪结果一致,而 ENC6(Etv1+)神经元不接受这四种 RGC 亚类中任何一种的输入(图 1k、2f–n、p 和扩展数据图 7)。此外,由于不同 RGC 亚类在不同 sSC 亚层中分支,我们按突触靶细胞类型的亚层分布和连接频率对其进行了排序(图 2b、h、j、l、n 和扩展数据图 7)。我们发现,接受视网膜输入的神经元在很大程度上共享该 RGC 亚类轴突分支的亚层分布。例如,αRGCs 到 SGS(lower stratum griseum superficiale)下部和 SO(stratum opticum)中 ENC4 和 ENC5 神经元的强连接已有报道(图 2g、h 和扩展数据图 7b),αRGC 轴突主要在同一亚层中分支24,26,40,41(扩展数据图 6i)。相比之下,ooDSGCs、F-RGCs 和 T5-RGCs 主要支配浅层 ENC1 和 ENC2(图 2i–n 和扩展数据图 7b–f),这与其轴突主要支配 SGS 上部相关(扩展数据图 6i)。总体而言,TransA-MERFISH 数据提供了细胞类型水平上从视网膜到 SC 的详细神经元连接图谱,为并行的视网膜-顶盖回路组织提供了功能见解,并进一步验证了该工具以高通量方式绘制全面连接组的灵敏度和特异性。
从 ooDSGCs 到 SC 神经元的选择性连接
对 Cartpt-cre 标记的 RGCs 的突触靶细胞类型分析得出了一个值得注意的发现,这些 RGCs 是据报道偏好向上(背侧)或向下(腹侧)运动的 ooDSGCs24,42。Cartpt+ ooDSGCs 支配 3 个 ENC 簇(ENC1、ENC2 和 ENC4)以及 4 个 INC 簇(INC3、INC4、INC5 和 INC9)(图 2i、j 和 3c)。ooDSGCs 最强的靶标 ENC1 和 ENC2 是以 Cdh7 标记的兴奋性簇(图 1g 和 3a–d 以及扩展数据图 2d)。它们位于 SGS 最浅的 100 µm 内,与 INC1 神经元混杂,INC1 神经元以 Cbln4 标记(图 1g),并且 mWmC 标记阴性(图 3c、d)。值得注意的是,对 TransA-MERFISH 数据的置换检验(图 2d、e)还显示,ENC1 和 ENC2 对来自视网膜的支配具有最高的突触富集,而 INC1 神经元最低(图 2e),强调了这些神经元簇中细胞类型特异性分子特性在招募 ooDSGC 输入中的重要性。
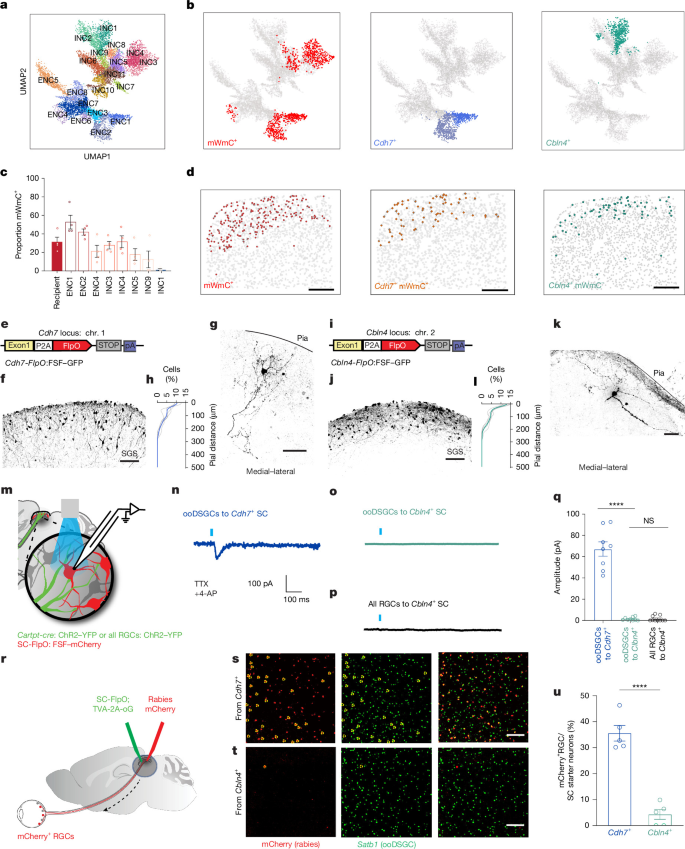
a,b,UMAP 图(a)和 mWmC+ ooDSGCs 接收神经元(b,左)。b,中,Cdh7 标记所有由 ooDSGCs 支配的 ENCs(ENC1 和 ENC2)。b,右,Cbln4 标记一个 mWmC− SC 簇(INC1)。c,各簇中 mWmC+ 神经元的比例。INC1(Cbln4+)不接收视网膜输入。a–c,n = 4 只小鼠。d,空间嵌入图显示由 ooDSGCs 支配的 mWmC+ 神经元(左)、Cdh7+ mWmC+ ENCs(中)和 Cbln4+ mWmC− INC1 神经元(右)的亚层分布。n = 1,423 个细胞。比例尺,200 µm。e,i,Cdh7-FlpO(e)和 Cbln4-FlpO(i)敲入等位基因。Chr. 染色体。f,j,Cdh7-FlpO(f)和 Cbln4-FlpO(j)表达的代表性图像。比例尺,250 µm。g,h,k,l,Cdh7-FlpO;FSF–eGFP 标记 ENC1 和 ENC2(g)及沿背–腹轴的分布定量(h)(n = 5 只小鼠)。Cbln4-FlpO;FSF–EGFP 标记浅层亚层中的 INC1(k)及沿背–腹轴的分布定量(l)。n = 5 只小鼠。Cdh7+(g)和 Cbln4+(l)SC 神经元的 Biocytin 填充。比例尺,100 µm。来自三次独立实验的代表性图像,结果相似。m,使用 CRACM 检查连接性的方法示意图。改编自参考文献 6,Springer Nature。n,由 ooDSGCs 中 ChR2 诱发的 Cdh7+ SC 神经元兴奋性突触后电流(EPSC)迹线平均值。蓝色矩形表示刺激。n = 3 只小鼠,8 个细胞。o,由兴奋 ooDSGCs 中 ChR2 诱发的 Cbln4+ SC 神经元 EPSC 样本。n = 6 只小鼠,9 个细胞。p,由兴奋所有 RGCs 中 ChR2 诱发的 Cbln4+ SC 神经元 EPSC 记录样本。n = 5 只小鼠,10 个细胞。q,n–p 中 EPSCs 的定量。每个点代表一个细胞。****P = 3.14 × 10⁻⁸。r–t,从 SC(r)到视网膜逆行追踪示意图,以及来自 Cdh7+ SC 神经元(s)或 Cbln4+ SC 神经元(t)的 Satb1+(绿色)和狂犬病毒感染(红色)RGCs 免疫染色。比例尺,200 µm。改编自参考文献 6,Springer Nature。u,SC 中逆行标记的 mCherry+ RGCs 与起始神经元的比值,以百分比表示。P = 2.29 × 10⁻⁵。双侧非配对 Student’s t 检验。n = 5 只小鼠。数据为平均值 ± s.e.m.。
INC1 中 ooDSGCs 缺乏 mWmC 标记出乎意料,因为最近一项结合钙成像与事后原位杂交的研究发现 Cbln4+ SC 神经元具有强方向选择性31。此外,其他研究提示 SC 方向选择性依赖于 ooDSGCs43,44。综合来看,这些结果似乎预测强方向选择性的 Cbln4+ SC 神经元会受 ooDSGCs 支配。因此,为验证这些发现,我们生成了 FlpO 敲入品系 Cdh7-FlpO(图 3e–h、Extended Data Fig. 5j,k,p,q 和方法)和 Cbln4-FlpO(图 3i–l、Extended Data Fig. 5l–o 和方法),并进行了 CRACM、mWmC 顺行追踪和狂犬病毒逆行追踪。所有这些方法均证实 ooDSGCs 到 Cdh7+ SC 神经元的强单突触输入(图 3m,n,r,s 和 Extended Data Fig. 8a–c,h,j,l),但未证实 ooDSGCs 到 Cbln4+ SC 神经元的输入(图 3m,o,r,t 和 Extended Data Fig. 8d,e,i,j,m)。此外,mWmC 顺行和狂犬病毒逆行追踪发现,对侧或同侧眼 RGCs 到 Cbln4+ SC 神经元的输入可忽略不计,而使用所有 RGCs 表达 ChR2 的 CRACM 未检测到对侧 RGCs 到 Cbln4+ SC 神经元的单突触输入,与 TransA-MERFISH 数据一致(图 2a 和 3p,q,u 以及 Extended Data Fig. 8f,g,k,n,o)。因此,这些实验验证了 TransA-MERFISH 的意外发现:强方向选择性的 Cbln4+ SC 神经元不受来自对侧或同侧眼的 ooDSGCs 支配(图 2f,i,j 和 3q 以及 Extended Data Fig. 8d,e,k,o)。这些结果证明了 TransA-MERFISH 在系统性突触靶细胞类型图谱绘制中的特异性和敏感性,使生物学发现成为可能。
Cbln4 + 细胞的方向选择性不依赖 ooDSGC
先前的环路追踪数据提示,Cdh7+ SC 神经元可能从 ooDSGCs 继承其方向选择性,而 Cbln4+ SC 神经元可能不会。这种差异连接的一个关键功能预测是:Cdh7+ SC 神经元的方向选择性依赖于视网膜 ooDSGC 环路,而 Cbln4+ SC 神经元的方向选择性则不依赖。为检验这一预测,我们使用双光子钙成像(图 4a,d,i,l)分析两种 SC 细胞类型在基线和消融星爆无长突细胞(SACs)后的方向选择性,该消融会降低 ooDSGCs45 的方向选择性(图 4b,c,j,k,q,r 和扩展数据图 9a–f)。与我们 TransA-MERFISH 实验的预测一致,SAC 消融降低了 Cdh7+ SC 神经元的方向选择性(图 4c,f–h),但没有降低 Cbln4+ SC 神经元的方向选择性(图 4k,n–p)。我们进一步通过遮盖同侧眼并双侧消融 SACs 来检查同侧视网膜 ooDSGCs 的贡献(扩展数据图 9m,o),发现 Cbln4+ SC 神经元的方向选择性没有变化(扩展数据图 9n,p)。这些数据表明,Cbln4+ SC 神经元的方向选择性独立于视网膜 ooDSGCs,而 Cdh7+ SC 神经元从视网膜 ooDSGCs 继承方向选择性。总之,这些数据支持这一观点:多种机制构成了不同 SC 神经元类型之间计算上不同的方向选择性的基础,包括 Cdh7+ SC 神经元中依赖视网膜 ooDSGCs 的方向选择性和 Cbln4+ SC 神经元中独立于视网膜 ooDSGCs 的方向选择性。对这两个群体的偏好方向分析揭示了另一个显著差异:在 SC 的成像区域(后侧和内侧),Cdh7+ SC 神经元在偏好方向上呈现广泛分布(图 4q 和扩展数据图 9g–i),而 Cbln4+ SC 神经元偏好非常窄的方向分布,主要偏好背侧到鼻侧运动(图 4r 和扩展数据图 9j–l)。这些不同的群体偏倚表明,这些神经元很可能参与不同的环路(图 4s)。
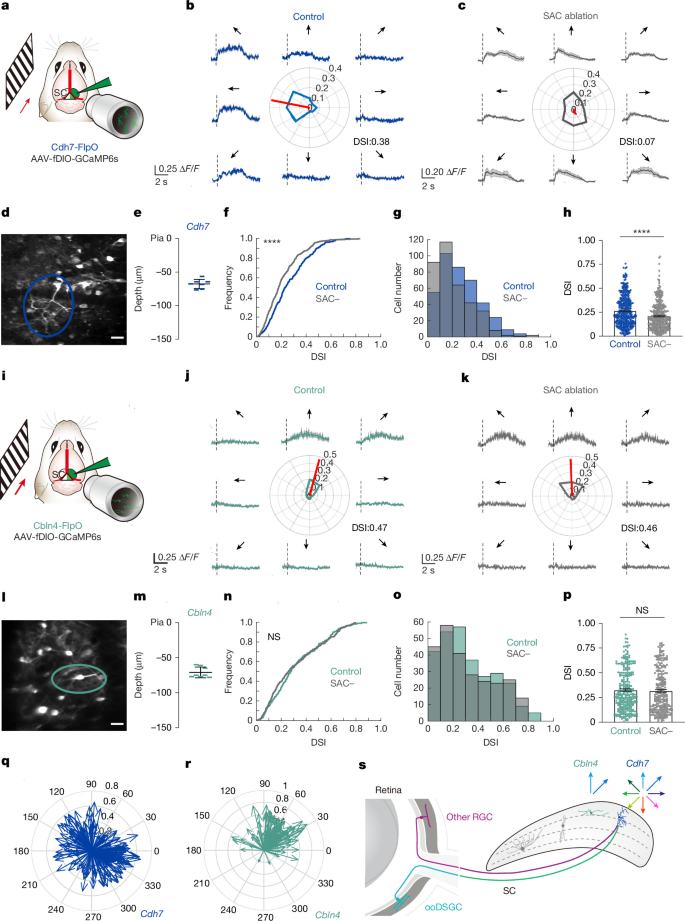
a,SC 中双光子钙成像示意图,使用八个方向的移动光栅视觉刺激。b,c,对照小鼠中一个 Cdh7+ SC 神经元的示例轨迹。彩色编码的轨迹是六次试验的平均值;灰色轨迹是 s.e.m.。b,一个 Cdh7+ SC 神经元在视网膜 SAC 消融前(b)和后(c)的示例轨迹。红色箭头指示偏好方向和方向选择性指数(DSI)。彩色编码的多边形是各方向反应的矢量和。d,e,成像的 Cdh7+ SC 神经元显示星形神经元形态(d;蓝色圆圈内)以及成像群体的距软膜深度(e)。比例尺,10 µm。n = 7 只小鼠。f–h,对照(蓝色)和 SAC 消融(SAC−)条件下的 DSI 累积频率(f;Kolmogorov–Smirnov 检验,P = 1.02 × 10⁻⁵)、分布(g)和平均值(h;双侧非配对 Student’s t 检验,P = 7.355 × 10⁻⁷)。每个点代表一个细胞。对照:平均 DSI = 0.27;SAC 消融:平均 DSI = 0.21。n = 5 只小鼠,393 个细胞。i–k,同 a–c,但针对 Cbln4+ SC 神经元。l,m,成像的 Cbln4+ SC 神经元显示水平细胞形态(l;绿色圆圈内)以及成像神经元的距软膜深度(m)。比例尺,10 µm。n = 8 只小鼠。n–p,同 f–h,但针对 Cbln4+ SC 神经元。对照:平均 DSI = 0.32;SAC 消融:平均 DSI = 0.32。n = 5 只小鼠,283 个细胞。NS,P = 0.4144。q,成像的 Cdh7+ SC 神经元中偏好方向的分布:Cdh7+ SC 神经元显示出宽泛分布。r,同 q,但针对 Cbln4+ SC 神经元。Cbln4+ SC 神经元表现出非常窄的分布,主要偏好背侧到鼻侧运动。s,从 ooDSGCs 到 Cdh7+ SC 神经元、但不连接到 Cbln4+ SC 神经元的连接图示意模型。两个 SC 神经元群体都表现出强方向选择性。数据为平均值 ± s.e.m.。除非另有说明,否则使用双侧非配对 Student’s t 检验。
讨论
在此,我们将 TransA-MERFISH 确立为用于哺乳动物大脑中系统性神经环路作图的高通量平台。利用该平台,我们实施了一种分步策略来解析早期视觉通路中的方向选择性神经环路。首先,我们将 TransA-MERFISH 应用于四个主要 RGC 亚类,并在单个神经元类型的分辨率上生成了它们在 SC 中突触靶细胞类型的全面连接图。其次,通过聚焦 ooDSGCs 的下游靶标,我们在 sSC 的同一亚层内识别出两个不同的、由遗传定义的 SC 神经元群体:接收 ooDSGC 单突触输入的 Cdh7+ SC 神经元,以及不接收此类输入的 Cbln4+ SC 神经元。第三,我们使用体内双光子钙成像显示,从 ooDSGCs 中选择性去除方向选择性反应会降低 Cdh7+ SC 神经元的方向选择性,但不会降低 Cbln4+ SC 神经元的方向选择性。这一结果揭示,SC 包含交织在一起的细胞类型,其方向选择性来源于不同的环路起源和计算机制。最后,我们指出,此处引入的 TransA-MERFISH 方法可推广到哺乳动物中枢神经系统(CNS)46 的其他区域,以在细胞类型分辨率上直接合并连接性和细胞分类。扩大 TransA-MERFISH 方法的规模,可能提供一条高效途径,以在神经元类型分辨率上实现全面的哺乳动物连接图谱绘制,并通过与斑马鱼34和果蝇47中近期连接组学里程碑进行基准比较。
我们的研究呈现以下技术创新。首先,TransA-MERFISH 连接了细胞身份与连接性,能够以更低的成本和复杂度实现高通量、单细胞类型的连接性重建。其通量为在整个 CNS 中可扩展地绘制突触靶细胞类型图谱奠定了基础。使用正交方法(包括 CRACM 和狂犬病毒示踪)进行的验证,确认了 TransA-MERFISH 的灵敏度和特异性。其次,我们应用 TransA-MERFISH 生成了视网膜到 SC 的接线图谱,将分子身份、连接性和功能联系起来,从而将遗传定义的细胞类型分配到其在视觉中继运动处理中的作用。这些数据集补充了现有的大规模资源,例如缺乏突触后特异性的 Projectome Atlas48,以及未指定突触前分子身份的中尺度输入图谱。总体而言,TransA-MERFISH 提供了一种可扩展的多区域回路映射方法,结合了分子、解剖和生理脑特征,为大幅提高对遗传定义神经元网络的形成和功能的理解提供了途径。该方法的未来应用还应有助于我们更好地理解回路退化(例如在青光眼中49,50)或回路重建(例如视神经病变的再生疗法中51)。
我们的研究通过将单组分顺行跨神经元示踪剂(mWmC)与基于杂交的空间转录组学技术(MERFISH)相结合,建立了一种简化、可扩展的回路映射工作流程。尽管 mWmC 介导的顺行示踪6和 TransA-MERFISH 会产生非零的假阳性和假阴性率,但这些在特定细胞类型水平上基本可以忽略,并且通常反映细胞类型连接性的固有生物学变异,正如我们的 CRACM 数据中所示。此外,我们使用互补的遗传和功能实验独立验证了这些连接性预测。mWmC 介导的顺行回路解码可以推广到神经系统中的各种回路,包括丘脑皮层回路46、下丘脑回路52、海马回路53和肠回路54。因此,TransA-MERFISH 将作为一种可扩展的回路映射方法,广泛适用于哺乳动物神经系统,超越视网膜到脑的连接性映射6,46。最终,这些实验为将顺行跨神经元示踪与空间转录组学配对建立了有力的原理验证。这种通用框架高度适用于其他空间转录组学平台,以及其他顺行跨神经元示踪剂,包括用于区域靶向的带有 AAV1-Cre/Flpo55,56 的遗传编码报告基因,或用于分离严格兴奋性突触连接的 ATLAS57。
TransA-MERFISH 揭示分化的视网膜后方向选择性回路
利用 TransA-MERFISH,我们获得了关于视网膜方向选择性回路编码的运动信息如何沿哺乳动物早期视觉通路传递和转换的关键见解。自半个多世纪前被发现以来1,ooDSGCs 一直是剖析视网膜中运动选择性背后回路机制的有力模型。然而,下游细胞群体如何处理这些信息仍不清楚。SC 也因其方向选择性而被广泛研究,从小鼠到灵长类等多个物种中都观察到丰富的方向选择性反应。SC 中的方向选择性被认为依赖于 ooDSGCs,因为 SAC 扰动会降低 SC 的整体方向选择性。然而,这些效应并未在遗传定义 SC 细胞类型的层面上进行分析43。利用 TransA-MERFISH 系统绘制 ooDSGCs 与 SC 细胞类型之间的连接图谱,我们发现 SC 细胞类型已报道的方向选择性与其同 ooDSGCs 的连接性之间存在意想不到的关系。最值得注意的是,此前报道为 SC 中方向选择性最强的细胞类型(Cbln4+)几乎不接受或不接受来自 ooDSGCs 的输入。这一连接图谱产生了可检验的预测,功能实验证实了这些预测:Cbln4+ SC 神经元的方向选择性与 ooDSGC 无关,而其他 SC 细胞类型的方向选择性依赖于 ooDSGC。值得注意的是,大量文献一直在讨论视网膜与皮层方向选择性之间的关系,揭示出初级视觉皮层主要通过皮层内禀回路从头计算方向选择性,同时也包含一部分神经元,这些神经元通过背外侧膝状核58,59继承硬连线的、专门化的视网膜运动流。近期研究结果表明,这些并行通道承担不同的功能角色:继承的视网膜通路似乎感知更局部的运动,如物体运动,而非继承的视网膜通路似乎感知更全局的运动,如光流60。我们的发现表明,并行的继承性和计算性方向选择性反应是皮层和皮层下结构共同使用的基本策略,可能支持检测不同形式的行为相关运动,例如自身产生的运动与外部运动。总之,我们的发现表明,SC 由不同遗传定义方向选择性细胞类型交织构成的子网络组成:一个位于 ooDSGCs 下游,第二个与 ooDSGC 无关。因此,TransA-MERFISH 能够在细胞类型分辨率上系统、高通量地发现神经元连接图谱,以揭示回路机制。
方法
小鼠
TransA-MERFISH 揭示视网膜后方向选择性环路的发散
所有动物实验均经加利福尼亚大学圣 Francisco 分校的机构动物护理和使用委员会批准。小鼠维持在 C57BL/6 背景、无特定病原体条件下,采用 12 小时光照:12 小时黑暗周期,食物和水自由获取。除非另有说明,免疫组织化学实验使用出生后 30–90 天(P30–P90)的小鼠进行。切片电生理记录和体内钙成像在年轻成年小鼠(P60–P90)中进行。SC 的 MERFISH 实验在 P30–P90 小鼠中进行。两种性别使用数量大致相等;在视网膜顶盖连接、电生理记录和钙成像实验中未观察到性别特异性差异。基因型通过趾部活检的 PCR 确定。本研究使用以下小鼠品系:Kcng4-cre(JAX,029414)37 先前已建立用于 RGC 亚类研究——Kcng4-cre 标记所有 αRGC 亚型;Cartpt-cre(JAX,028533)38 先前已建立用于 RGC 亚类研究——Cartpt-cre 标记多种 ooDSGCs42;Foxp2-cre(JAX,030541)39 先前已建立用于 RGC 亚类研究——它标记 5 种归类为 F-RGCs 的 Foxp2-RGC 亚型;Tusc5-cre 在本研究中生成,用于标记所有 T5-RGCs31——RGCs 中的特定视网膜表达模式在扩展数据图 6 中验证(Tusc5 敲入品系的详细表征见 X.D. 正在准备的另一篇手稿);ChAT-Cre 小鼠(JAX,006410)已被表征为一种工具,可结合 AAV 介导的扰动来标记和操纵 SACs61。
Cdh7-FlpO 和 Cbln4-FlpO 小鼠品系的构建
为了构建 Cdh7-FlpO 小鼠品系以实现对表达 Cdh7 的 SC 兴奋性神经元的遗传学访问,通过 CRISPR–Cas9 介导的同源定向修复,将 FlpO 重组酶盒插入内源性 Cdh7 位点(chr. 1:109909967–110073002)的外显子 1。供体构建体包含 FlpO 编码序列,其两侧为对应于靶向 Cdh7 基因组位点的 5′ 和 3′ 同源臂。通过使用内部和外部引物对的 PCR 筛选创始小鼠,以验证敲入等位基因正确的 5′ 和 3′ 整合,并通过跨插入接头的 Sanger 测序进一步确认靶向位点。重组使用两条单 guide RNA(sgRNA)序列:(sgRNA-Cdh7#1: AAAGATGAAGCTGGGCAAAGTGGAG 和 sgRNA-Cdh7#2: TTTTCTACAGCTTATAGCTC)。两只可种系传递的创始小鼠被繁育以建立 Cdh7-FlpO 小鼠品系。使用 RNAscope 荧光原位杂交(扩展数据图 5),将其中一个品系与内源性 Cdh7 转录本比较,验证了其 FlpO 表达特异性。
为了构建 Cbln4-FlpO 小鼠品系以实现对表达 Cbln4 的 SC 抑制性神经元的遗传学访问,使用 CRISPR–Cas9 介导的同源定向修复策略,将 FlpO 重组酶盒插入内源性 Cbln4 位点(chr. 2:171878256–171885386)的外显子 1。通过使用内部和外部引物对跨 5′ 和 3′ 重组接头进行 PCR,随后对靶向等位基因进行 Sanger 测序,验证了正确靶向。重组使用一条 sgRNA 序列:sgRNA-Cbln4#1 (TTGCGCACGCGGGCTCACCATG)。三只可种系传递的创始小鼠
文章标题:TransA-MERFISH 揭示视网膜后分化的方向选择性环路
正文:
- 1. AAV2-CAG-mWGA-mCherry(mWmC,Addgene ID 263583)以 AAV Serotype 2 制备(Virovek,货号 117-UCSF89,浓度 2 × 10¹³ vg ml−1),参照 Tsai et al.6,并在 Virovek 采用细菌人工染色体(BAC)-to-AAV 技术生产,以实现稳定表达和高滴度 AAV 制备。该载体用于 Fig. 2,标记所有 RGCs 并考察其在 SC 中的神经元输出。
AAV2-CAG-mWGA-mCherry(mWmC,Addgene ID 263583)以 AAV Serotype 2 制备(Virovek,货号 117-UCSF89,浓度 2 × 10¹³ vg ml−1),参照 Tsai et al.6,并在 Virovek 采用细菌人工染色体(BAC)-to-AAV 技术生产,以实现稳定表达和高滴度 AAV 制备。该载体用于 Fig. 2,标记所有 RGCs 并考察其在 SC 中的神经元输出。
- 2. AAV2-CAG-DIO-mWGA-mCherry(DIO-mWmC,Addgene ID 263584)以 AAV Serotype 2 制备(Virovek,货号 117-UCSF86,浓度 4 × 10¹³ vg ml−1),参照 Tsai et al.6,并在 Virovek 采用 BAC-to-AAV 技术生产。该载体用于 Fig. 3 和 Extended Data Fig. 6,标记特定类型的 RGCs 并分析其在 SC 中的输出。
AAV2-CAG-DIO-mWGA-mCherry(DIO-mWmC,Addgene ID 263584)以 AAV Serotype 2 制备(Virovek,货号 117-UCSF86,浓度 4 × 10¹³ vg ml−1),参照 Tsai et al.6,并在 Virovek 采用 BAC-to-AAV 技术生产。该载体用于 Fig. 3 和 Extended Data Fig. 6,标记特定类型的 RGCs 并分析其在 SC 中的输出。
- 3. AAV2-CAG-ChR2-mCherry-WPRE(Addgene ID 100054)(Serotype 2,由 Boston Children’s Hospital Viral Core 制备,浓度 2× 10¹³ vg ml−1)用于 Fig. 2,对全部 RGCs 开展 CRACM 实验,考察其向 SC 神经元的连接性。
AAV2-CAG-ChR2-mCherry-WPRE(Addgene ID 100054)(Serotype 2,由 Boston Children’s Hospital Viral Core 制备,浓度 2× 10¹³ vg ml−1)用于 Fig. 2,对全部 RGCs 开展 CRACM 实验,考察其向 SC 神经元的连接性。
- 4. AAV2-EF1α-DIO-ChR2(H134R)-mCherry(Addgene ID 20297)(Serotype 2,由 UNC Viral Core 制备,浓度 2 × 10¹³ vg ml−1)用于 Fig. 3,在 Cartpt-cre 小鼠中开展 CRACM 实验,在 RFP 通道中评估与 SC 神经元的连接性。
AAV2-EF1α-DIO-ChR2(H134R)-mCherry(Addgene ID 20297)(Serotype 2,由 UNC Viral Core 制备,浓度 2 × 10¹³ vg ml−1)用于 Fig. 3,在 Cartpt-cre 小鼠中开展 CRACM 实验,在 RFP 通道中评估与 SC 神经元的连接性。
- 5. AAV2-EF1α-FDIO-GFP-WPRE(Addgene ID 203843)用于在 GFP 通道中标记 Cdh7-FlpO 和 Cbln4-FlpO 品系中的 SC 神经元。
AAV2-EF1α-FDIO-GFP-WPRE(Addgene ID 203843)用于在 GFP 通道中标记 Cdh7-FlpO 和 Cbln4-FlpO 品系中的 SC 神经元。
- 6. AAV8-EF1α-FDIO-GCaMP6s(Addgene ID 105714)用于标记 Cdh7-FlpO 和 Cbln4-FlpO 品系中的 SC 神经元,以进行在体钙成像。
AAV8-EF1α-FDIO-GCaMP6s(Addgene ID 105714)用于标记 Cdh7-FlpO 和 Cbln4-FlpO 品系中的 SC 神经元,以进行在体钙成像。
- 7. AAV2-Flex-taCasp3-TEVp(Addgene ID 45580)(Serotype 2,由 UNC Viral Core 制备,浓度 2 × 10¹³ vg ml−1)62 用于在 ChAT-Cre 小鼠中选择性消融视网膜 SACs。
AAV2-Flex-taCasp3-TEVp(Addgene ID 45580)(Serotype 2,由 UNC Viral Core 制备,浓度 2 × 10¹³ vg ml−1)62 用于在 ChAT-Cre 小鼠中选择性消融视网膜 SACs。
- 8. AAV8-hSyn-FRT-TVA-P2A-EGFP-2A-oG63 由 X.C. 改造并制备,为 Serotype 8,浓度 2× 10¹³ vg ml−1,可在受限的神经元亚群中实现高效的、依赖 FlpO 的逆行示踪,包括 Cdh7-FlpO 和 Cbln4-FlpO SC 神经元,如 Fig. 3 所示。
AAV8-hSyn-FRT-TVA-P2A-EGFP-2A-oG63 由 X.C. 改造并制备,为 Serotype 8,浓度 2× 10¹³ vg ml−1,可在受限的神经元亚群中实现高效的、依赖 FlpO 的逆行示踪,包括 Cdh7-FlpO 和 Cbln4-FlpO SC 神经元,如 Fig. 3 所示。
- 9. EnvA G-deleted Rabies–mCherry(Addgene ID 32636)获自 Salk GT3 Core(目录号 32636)。与 TVA-2A-oG 联合使用时,它能够对图 3 中特定 SC 起始群体的突触前视网膜神经元进行逆行标记。
EnvA G-deleted Rabies–mCherry(Addgene ID 32636)获自 Salk GT3 Core(目录号 32636)。与 TVA-2A-oG 联合使用时,它能够对图 3 中特定 SC 起始群体的突触前视网膜神经元进行逆行标记。
- 10. AAV2-CAG-membrane bound YFP(AAV-CAG-mYFP,Addgene ID 263585)由 AAV-EF1a-BbTagBY(Addgene ID 45185)64 改造而来。AAV 血清型 2 以 2 × 10¹³ vg ml−1 生产,并用于投射轴突标记65。眼内注射后,它能够可视化 SC 中的轴突投射。
AAV2-CAG-membrane bound YFP(AAV-CAG-mYFP,Addgene ID 263585)由 AAV-EF1a-BbTagBY(Addgene ID 45185)64 改造而来。AAV 血清型 2 以 2 × 10¹³ vg ml−1 生产,并用于投射轴突标记65。眼内注射后,它能够可视化 SC 中的轴突投射。
- 11. AAV2-CAG-DIO-membrane bound YFP(AAV-CAG-DIO-mYFP,Addgene ID 263586)由 AAV-EF1a-BbTagBY(Addgene ID 45185)改造而来。AAV 血清型 2 以 2 × 10¹³ vg ml−1 生产,并与 Cre-driver 小鼠品系联合使用,以选择性标记特定 RGC 起始群体的轴突。这能够可视化 SC 中细胞类型特异性的 RGC 轴突投射。
AAV2-CAG-DIO-membrane bound YFP(AAV-CAG-DIO-mYFP,Addgene ID 263586)由 AAV-EF1a-BbTagBY(Addgene ID 45185)改造而来。AAV 血清型 2 以 2 × 10¹³ vg ml−1 生产,并与 Cre-driver 小鼠品系联合使用,以选择性标记特定 RGC 起始群体的轴突。这能够可视化 SC 中细胞类型特异性的 RGC 轴突投射。
为 TransA-MERFISH 保存小鼠脑组织的优化方案
TransA-MERFISH 的脑组织制备经过优化,以保留免疫组化染色并最大化后续 RNA 多重实验的 RNA 质量。年轻成年小鼠被深度麻醉,并经心脏灌注冰冷生理盐水(0.9% NaCl 溶液),随后用冰冷 4% 多聚甲醛(PFA)的 0.1 M 磷酸缓冲液(pH 7.4)灌注。解剖后,脑组织在同一固定液中于 4 °C 后固定过夜。目标脑区(本研究中为 SC,体积约 10 mm3)经显微解剖,并仔细标记前后和背腹方向。随后在 4 °C 下于 PBS 中的 30% 蔗糖中进行冷冻保护,直至组织下沉(2–4 h)。目标区域包埋于 OCT 化合物中,并在干冰冷却的 2-甲基丁烷(Supelco, MX0760-1)中快速冷冻。然后,在冷冻切片机上制备约 12 µm 的冠状切片,并在无 RNase 条件下收集到 MERSCOPE Slides(Vizgen)上,用于 RNA 级处理。
TransA-MERFISH 的组织切片
对每只小鼠,按照上述灌注固定方案,从右侧 SC 获取约 10 张冠状切片;右侧 SC 接收来自注射 mWmC 示踪剂的左眼的对侧视网膜输入。切片按每 9 张(每张 12 µm,总计约 100 µm)的间隔收集,覆盖右侧 SC 的前后轴。根据 Allen Mouse Brain Atlas 选择包含 SC 的冠状切片,对应于相对于 Bregma 的立体定位坐标,范围为 −3.0 mm 至 −5.0 mm。该切片涵盖 SC 的完整背腹范围,从浅层视觉层 stratum zonale (SZ)、SGS,到深部运动相关层 stratum griseum profundum (SGP) 和 stratum album profundum (SAP)。
使用 MERSCOPE 的优化 TransA-MERFISH 工作流程
文章标题:TransA-MERFISH揭示视网膜后方向选择性环路的分化
正文: MERSLIDES(Vizgen,20400001)上的SC组织首先在70%乙醇(4°C)中透化过夜,随后进行一系列乙醇梯度脱水:室温下90%乙醇5 min,室温下100%乙醇1 h,室温下90%乙醇5 min,然后在室温下用70%乙醇孵育5 min。随后使用MERSCOPE Sample Preparation Kit(Vizgen,10400012)并按照MERSCOPE User Guide(Fresh and Fixed Frozen Tissue Sample Preparation,91600002 RevF)制备SC切片以进行MERSCOPE成像。
对于蛋白染色,样品用5 ml PBS洗涤。然后将封闭液(10:1 Blocking Buffer C Premix: RNase inhibitor)(Blocking Buffer C,Vizgen 20300100;RNase inhibitor Murine,NEB M0314L)加到组织切片中央,室温孵育1 h。样品在Primary Staining Solution(100:10:1 Blocking Buffer C Premix: RNase inhibitor: Primary antibody)中室温孵育1 h。值得注意的是,此步骤中anti-RFP(rabbit,Rockland 46510)按1:100稀释。随后样品用PBS洗涤。然后将Secondary Staining Solution(100:10:3:1 Blocking Buffer Premix: RNase inhibitor: Secondary Stain Mix : Protein Stain)(Anti-Rabbit Protein Stain Kit,Vizgen,10400107)加到样品中孵育1 h。然后样品用PBS洗涤。随后将Fixation Buffer(4% PFA in PBS)加到组织切片上,室温孵育15 min。然后样品用PBS洗涤。
接下来,对于编码探针杂交,样品在5 ml Formamide Wash Buffer(Vizgen,20300002)中37 °C孵育30 min。然后小心吸去Formamide Wash Buffer,将定制的140-Gene MERSCOPE Gene Panel Mix(Vizgen,VZG180,小鼠浅层SC panel;Supplementary Table 1)加到组织切片上,随后在加湿腔室中37 °C孵育至少36 h,最长48 h。然后,在编码探针杂交后洗涤中,向样品加入Formamide Wash Buffer并在47 °C孵育30 min。重复该洗涤步骤,然后样品在Sample Prep Wash Buffer(Vizgen,20300001)中孵育2 min。
然后进行凝胶包埋,从MERSLIDE中吸去洗涤缓冲液,加入Gel Embedding Solution(2:10:1 Gel Embedding Premix: 10% w/v ammonium persulfate solution: N,N,N′,N′-tetramethylethylenediamine)(Gel Embedding Premix,Vizgen 20300004;ammonium persulfate,Sigma-Aldrich 09913;N,N,N′,N′-tetramethylethylenediamine,Sigma-Aldrich T7024)覆盖组织切片。将经Gel Slick(VWR,12001-812)预处理的盖玻片直接置于组织切片上,室温孵育90 min使凝胶固化。然后取下盖玻片。随后对样品进行透明化处理。样品在预热的Clearing Solution(100:1 Clearing Premix: Proteinase K)(Clearing Premix,Vizgen 20300003;Proteinase K,NEB P8107S)中47 °C孵育24 h。
对于DAPI和PolyT染色,去除Clearing Solution后,样品用Sample Prep Wash Buffer洗涤。然后将DAPI and PolyT Staining Reagent(Vizgen 20300021)加到样品中,在摇床上室温孵育15 min。随后用Formamide Wash Buffer洗涤10 min,然后用5 ml Sample Prep Buffer洗涤5 ml。
最后,对于MERFISH成像,将样品加载到MERSCOPE仪器(MERSCOPE1.0,VIZGEN)上进行成像,使用MERSCOPE 140 Gene Imaging Kit(Vizgen,10400004),该试剂盒可自动化完成MERFISH探针交换和读出。
MERFISH基因panel设计与评估
TransA-MERFISH 揭示视网膜后不同的方向选择性回路
为了设计 SC 特异性 MERFISH 基因 panel,我们首先评估了分类 SC 神经元类型所需的基因数量。为此,我们基于 SC 单核 RNA 测序(snRNA-seq)数据,实现了一个基于梯度提升(XGBoost)的模拟框架。简言之,对每个神经元聚类,选择前 k 个非冗余特异性基因组成一个 panel。验证准确率(使用 70:30 的训练:测试划分)被评估直至达到平台期。因此,在从成年 SC snRNA-seq 数据28中取神经元细胞子集后,我们接着使用 Seurat 标准对数标准化流程重新聚类这些细胞,使用以下函数:“NormalizeData”采用默认参数,“FindVariableFeatures”(selection.method = ‘vst’),ScaleData(vars.to.regress =”nCount_RNA”),“RunPCA”(npcs=50),FindNeighbors(dims=1:35,维度由“ElbowPlot”选择),“FindClusters”和“RunUMAP”(dim=35)。聚类基于原始细胞类型标签进行标注,生成了 19 个 Leiden 聚类,重现了原始神经元细胞类型区室(扩展数据图 2e)。然后,我们使用“FindAllMarkers”函数和“MAST”检验(min.pct = 0.2,logfc.threshold=0.25,latent.vars = “nCount_RNA”)为每种类型推导排名靠前的标记基因。
为了对标记基因进行排序,我们为每个基因计算了一个综合特异性评分:仅保留在目标细胞类型中超过 40% 细胞内检测到的基因,并计算对数比值特异性评分如下:
其中 pct.1 和 pct.2 分别表示目标群体和背景群体中表达细胞的比例,ϵ = 0.02 为伪计数。为了整合特异性和倍数变化,我们在每个聚类内分别对对数比值特异性评分和平均 log2 转换后的倍数变化(avg_log2FC)计算 z 分数。最终 Stouffer 评分计算如下:
混合评分同时捕捉二元特异性(表达普遍性)和定量幅度(倍数变化),从而能够对每个聚类的标记基因进行稳健排序。
我们接下来为每个神经元亚型(如上文所鉴定的共 19 种类型)选择前 k 个(k = 1 到 10)非冗余、高特异性标记基因。我们将它们作为特征来训练一个 XGBoost 分类器。为确保基因间的可比性,将标准化表达矩阵取子集到所选基因 panel,并通过将每个基因中心化到其均值并除以其标准差(跨细胞 z 分数标准化)进行缩放。分类器使用多类 softmax 目标(multi:softprob)训练 200 轮提升,学习率(η)为 0.2,最大树深度为 6,子采样率为 0.6 以减轻过拟合。输出类别数设为唯一神经元亚型的数量。训练在 70% 的细胞上进行(按聚类分层),性能在留出的 30% 数据上评估。对于每个细胞,预测标签对应于概率最高的类别。比较预测标签和真实标签的混淆矩阵显示出高度一致性,确认 MERFISH panel 准确恢复了神经元亚型异质性。分类准确率作为基因 panel 大小的函数在折线图中总结(扩展数据图 1e),显示当 k = 9(171 个基因)时性能达到 0.8414 的平台期,随后在 k = 10(190 个基因)时略微下降至 0.8403。值得注意的是,尽管包含了更多排名靠前的标记基因,该准确率仍低于使用 MERFISH 基因 panel 所达到的准确率(0.91)。
在该 panel 包含的 140 个基因中,我们选择了富集于泛兴奋性、泛抑制性和类型特异性神经元群体的标记。这 140 个基因包括 Ntng1、Meis1、Cpne4、Cacna2d1、Sgcd、Spon1、Kctd8、Gpc5、Ptprk、Nxph1、Robo1、Hs3st4、Sorcs3、Chrm3、Mgat4c、Syt1、Car10、Pcbp3、Reln、Trpm3、Meis2、Prkd1、Epha3、Fras1、Il1rapl2、Tmem132d、Fstl4、Erbb4、Ebf3、Ebf1、Maf、Ptprt、Cdh18、Npas3Htr2c、Tfap2b、Etv1、Tshz2、Sorcs1、Lhfp、Col25a1、Sox6、Adarb2、Megf11、Pde1c、Csgalnact1、Cdh8、Chrm2、Tcf7l2、Sphkap、Arpp21、Kirrel3、Zfhx3、Tmem132c、Hcn1 Hdac9、Rorb、Pdzd2、Adam12、Ankfn1、Sntb1、Npnt、Gpc3、Kcnd3、Tpd52l1、Myh8、Cdh7、Barhl1、Kcnab1、Rd3l、Cbln4、Otx2、Gabrr2、Cdhr1、Sox14、Dmbx1、Lhx1os、Galnt14、Tnnt1、Tnni3、Fibcd1、Mgarp、Lmo1、Vwc2、Npffr1、Rnf152、Zfhx4、Tal1、Trim66、Gata3、Syt2、Nrtn、Smim17、Pax7、Cdh13、Slc17a6、Tac1、Cbln2、Kcng3、Kcng4、Cdh4、Pde5a、Gda、Foxp2、Pou4f2、Sema3e、Gad2、Npas4、Sdk2、Ppia、Atp5md、Mllt11、Calb2、Nap1l5、Gap43、Tacr1、C1ql2、Fabp5、Cxcl14、Stmn1、Fos、Snap25、Junb、Pmfbp1、Ntng2、Pcdh20、Satb1、Sv2c、Fign、Gfra1、Syt17、Rasgrf2、Lmo3、Slc19a1、Cplx3、Marcksl1、Cadps2、Calb1、Syt4 和 Gad1。
为进一步评估性能,我们将 140 基因 TransA-MERFISH panel 与 2 个对照基因集进行比较:(1) 从完整 snRNA-seq 表达矩阵中随机抽取的 140 个基因;(2) 从前 2,000 个高变基因(HVGs)中随机抽取的 140 个基因。对于每个对照集,我们无放回地抽取基因,并重复该过程 15 次,以估计分类准确率中的变异性(误差线)。使用相同的分类框架,我们的 panel 始终优于两个对照以及上述标记基因方法(Extended Data Fig. 1e)。140 基因 panel 中的两个基因(Sgcd 和 Ppia)因在 TransA-MERFISH SC 数据集中转录本检测低且对 SC 神经元类型特异性差而被排除。
图像预处理与 ROI 选择
对于每个 12 µm 组织切片,MERFISH 方案分别为 DAPI、polyT 和 mCherry/RFP 通道生成七张 1.7 µm 光学切片(z0、z1、…、z6),以 Tiff 文件形式保存在 images 文件夹下,同时包含 micron_to_mosaic_pixel_transform.csv,用于将微米尺度(转录本和 MERSCOPE visualizer)与 mosaic 像素尺度(Tiff 文件)关联起来。每个 MERFISH 数据文件夹还包含 detected_transcripts.csv 文件,其中包括检测到的转录本坐标及其空间坐标,以及其他元数据和细胞-基因信息。细胞分割信息也由 Vizgen Post-processing Tool(VPT)生成。为提高细胞分割准确性,我们使用自定义脚本和针对 SC 微调的 Cellpose2.0 模型进行了独立分割,如下所述。
进行了以下步骤:(1) DAPI 图像预处理与初始感兴趣区域(ROI)选择。每个区域的 z 平面 0 的 DAPI 图像被加载到 Python Jupyter notebook(tifffile.imread)中,并使用 0.95 分位数(np.quantile)作为截断值过滤过曝像素,以增强用于下游 ROI 选择的信号。对于每个区域,由于我们的 AAV2-mWmC 注射到左眼(图 1a),初始 ROI 被限制在右侧 SC 半球,并使用处理后的 DAPI 图像在 ImageJ(Analyze-Tools-ROI manager)中手动勾画,从软膜表面开始,以包含内侧朝向中线的浅层 SC 层(SZ 和 SGS),并向腹侧延伸至中脑水管水平。该 ROI 包括 Allen Mouse Brain Atlas 中由细胞构筑边界定义的浅层和更深层。然后,我们将一个切片的每七张 z 平面图像的原始 DAPI Tiff 图像裁剪到所勾画的 ROI(使用 read_roi 函数、matplotlib.patches 模块的 Polygon 类以及 PIL 包的 Image 模块)。对光学切片执行最大 z 投影方法,以增强细胞分割信号。为此,使用 ImageJ(Images-Stack-Z Project)或 Python(numpy.max)生成每个切片所有七个 z 平面光学切片的最大强度投影。同时,我们从 MERFISH 的 detected_transcripts.csv 文件中取子集,使其与所选 ROI 对应(read-roi 用于加载 ImageJ ROI 文件,随后在 Python 中使用 matplotlib.path.Path),使用 micron_to_mosaic_pixel_transform.csv 文件将转录本坐标(global_x 和 global_y 坐标)转换为 Tiff 图像的 mosaic 像素坐标,并附带每个检测到的转录本的基因符号。
细胞分割与 AnnData 组装
我们在小鼠脑31的先前 MERFISH 研究中进行了分割。我们使用 ClusterMap 包的 get_img 函数
为在 TransA-MERFISH 数据集中注册 mWmC+ 细胞,我们实现了一套基于单细胞 mCherry 强度的自动化注册流程,并辅以人工校正。首先,我们通过汇总每个 z 层(z = 1:6,排除 z0 以避免潜在的光学噪声)的平均 mCherry 像素强度,得出单细胞平均 mCherry 强度。随后将汇总值除以 z 平面数(本例中为 6,因为由最大强度投影生成的细胞分割掩膜在所有 z 平面上共享),得到跨 z 平面的单细胞平均 mCherry 强度。单细胞平均 mCherry 强度的频率分布显示红色荧光主要呈双峰分布。其次,我们使用内细胞质环区域和相邻的细胞外环带作为局部背景估计的平均强度值,为每个细胞分配 mWmC 阳性评分。阳性细胞通过基于同一切片上对照 ROI(位于下方、非视网膜接收区域、红色荧光信号最低处)的分布所设定的阈值来识别。最后,mWmC+ 细胞由两名独立标注人员对所有切片进行校对,他们使用 Vizgen MERSCOPE Visualizer 检查叠加在 DAPI 和 PolyT 标记上的红色荧光,可带或不带分割细胞掩膜。该流程的 Python 脚本已存放于 GitHub(https://github.com/duanxlab/TransA-MERFISH)。
对于 mCherry 荧光的背景校正单细胞定量,我们实现了一套集成流程,按以下步骤进行图像去噪、荧光背景去除、单细胞 mWmC 评分计算和阈值分配。
第一步,背景校正:为去除不均匀照明和背景荧光(尤其是位于与接收神经元相同层内的轴突信号),我们对 RFP 通道图像应用了多线程滚动球背景减除算法。对于每个切片,使用 z0–z7 光学平面的最大强度投影作为输入。图像以重叠分块(4,096 × 4,096 像素)处理,滚动球半径为 80 像素。对于每个分块,使用 skimage.restoration.rolling_ball 函数计算背景表面,然后跨分块合并结果以形成连续背景场。通过从原始拼接图中减去该背景场并将负值裁剪为零,获得校正后的图像。所得背景减除图像用于下游分析。经过此校正后,背景强度降至基线,从而去除单个细胞周围的雾状信号。相比之下,细胞掩膜内的像素强度基本得以保留。第二步,进一步背景去除和单细胞信号定量:在上述滚动球背景校正之后,使用基于环的减除程序估计并去除每个标记胞体周围的残余局部背景(例如,神经毡和轴突)。简言之,对于每个分割的胞体(细胞 i),将胞体掩膜腐蚀 1 像素以定义核心区域,然后膨胀 4 像素的保护带,以防止背景环带紧贴胞体边缘。然后在此受保护的胞体周围设置一系列同心环带(内宽 = 8 像素;外半径范围 = 12–30 像素),从中采样背景强度。在排除属于其他细胞的任何像素后,从环带中采样背景像素。局部背景水平 Bi 定义为环带强度的第 25 百分位数。校正后的图像 \({I}^{{\prime} }(x,y)\) 计算为,
对于每个胞体和指定的环配置,我们报告了内部测量区域(胞体相邻环)内的减除前和减除后统计量:
以及来自环带的背景噪声估计:
以及 \({\sigma }_{\text{STD}}\)(样本标准差)。在去除局部背景后,上述定义的内环显示出改善的局部信噪比,mWmC 斑点信号更加突出。
第三,为了定义内部对照区域并在每个切片中识别 mWmC 阳性细胞,我们实现了对照区域的自动识别和 mWmC+ 细胞的定量。在该流程中,我们使用了自动化的深度感知滑动窗口分析。对于每个细胞 i,局部背景校正后的荧光强度通过局部背景减除后胞体内测量环内的平均像素强度来汇总,如上所述。细胞质心从分割掩模计算得出,高度为 800 µm 的滑动窗口以 100 µm 的增量沿软脑膜至深部轴移动。在每个窗口 w 内,我们计算累积荧光能量为 \({S}_{w}=\sum _{i\in w}{I}_{i},\) 其中 Ii 是每个细胞的荧光指标(此处为减除后内环平均强度)。少于 15 个细胞的窗口被排除。所得曲线 Sw 随深度的变化使用七点移动平均进行平滑,有效窗口中的谷值(最小值)被选为对照区域的中心,对应于累积信号最低(背景)的区域。从该谷值开始,对照区域对称扩展,直到至少包含 600 个细胞。最终对照区域导出为跨越整个内外侧宽度的矩形 ROI。对于对照 ROI 内的所有细胞,Ii 被汇总以估计对照群体均值(μctrl)和标准差(σctrl)。然后我们使用以下阈值定义 mWmC+ 细胞:在修剪最亮的 2% 细胞以排除例如邻近过曝像素混淆的离群值后,阳性检测阈值定义为 T5σ = μctrl + 5σctrl 作为注册 mWmC+ 细胞的基线。
最后,利用每个细胞的 mWmC 信息,我们通过首先使用上述方法在不同细胞类型中推导 mWmC+ 细胞谱,进一步将细胞类型指定为 mWmC+(视网膜接收)。令人鼓舞的是,自动分配的 mWmC+ 细胞谱与手动注释强烈相关,表明方法之间的一致性。为了量化 mWmC+ 细胞在神经元亚型中的富集,我们使用以下步骤为每个示踪和细胞类型计算富集分数。对于每个示踪 × 细胞类型,我们构建了一个 2 × 2 表,包含该细胞类型内与所有其他细胞中 mWmC+ 和 mWmC− 的计数,并应用单尾 Fisher 精确检验(alternative = “greater”)。比值比(OR)计算为:
其中 a 和 b 是给定亚型内 mWmC+ 和 mWmC− 细胞的数量,c 和 d 是该亚型外的相应计数。效应大小可视化为 log2(OR)(值 < 0 裁剪为 0)。同时,统计证据通过面积与 −log10(P) 成正比的点来编码。正富集(log2(OR) > 0)的细胞类型用红色轮廓突出显示(图 2o)。当 log2(OR) 值大于 0(富集)时,我们在特定示踪条件下将细胞类型指定为阳性或连接。基于此处分配的 mWmC+ 细胞类型,我们以条形图总结了动物间平均 mWmC+ 细胞比例(误差线:s.e.m.)(图 1k 和 3c)。
聚类与降维
该神经元子集使用与上文所述类似的框架进行了重新聚类。为确定更能反映内部数据结构和细胞类型粒度的参数,我们基于统计评估和已有的参数选择工具选择了聚类参数。主成分维度(n_pcs = 12)根据对方差解释曲线(sc.pl.pca_variance_ratio)的检查选定。随后使用 clustree R 包中实现的聚类树方法确定聚类分辨率,以评估多个分辨率下的聚类稳定性,并选择了 1.5 的分辨率。这里的参数选择使我们能够以无偏方式确定最能代表内部数据结构的细胞类型粒度。随后使用下文所述方法对这些聚类进行标注。随后与已发表的 SC 图谱进行的比较显示出高度一致性,例如,在 supertype 层级与 10x Whole Mouse Brain Atlas 比较时,这支持了所选参数的稳健性以及所得细胞类型粒度。
为进行聚类和降维,我们首先对每个 MERFISH 切片的表达矩阵应用了基于 SCTransform 的归一化67。这是通过从 Python 使用 rpy2 访问 R 包中实现的 SCTransform 算法来实现的。归一化之前,原始计数存储在 adata.layers[‘raw_counts’] 中。随后应用质量控制过滤步骤以去除低质量特征,保留在至少 5 个细胞中检测到的基因(sc.pp.filter_genes)以及总计数至少为 5 的细胞(sc.pp.filter_cells)。过滤后,对稀疏矩阵进行显式排序以确保兼容性。每个 AnnData 对象被转换为 Seurat 对象(as.Seurat()),并应用了 SCTransform(do.correct.umi = FALSE)。SCTransform 在归一化过程中将测序深度(文库大小/唯一分子标识符(UMIs)总数)建模为技术协变量。从 SCT assay 的 scale.data slot 中提取完整的归一化基因表达值,并存储到 adata.layers[‘normalized’] 中,确保归一化后缺失的任何基因都以零填充向量重新引入,以保持与原始特征集的一致性。然后将归一化矩阵分配给 adata.X 用于下游分析。原始计数保存在 adata.raw 中,并使用原始层计算标准质量控制指标(n_genes_by_counts、total_counts)。基于质量控制指标,两个质量低且计数显著较低的切片被排除在进一步分析之外。
TransA-MERFISH揭示分化的视网膜后方向选择性环路
其余MERFISH切片的AnnData对象随后使用scanpy(v1.10.4;以下简称为sc)通过ad.concat(merge = ‘unique’, index_unique=None)合并,得到包含47,740个细胞的合并数据集。细胞标识符在各切片间被设为唯一,并在合并表达矩阵上进行了主成分分析(sc.tl.pca)。检查每个成分解释的方差以指导降维(sc.pl.pca_variance_ratio)。使用前15个主成分(n_pcs = 15)和30个最近邻(n_neighbors = 30)通过sc.pp.neighbors构建邻域图。随后应用UMAP进行二维嵌入(sc.tl.umap)。使用Leiden算法以分辨率参数0.8进行无监督聚类(sc.tl.leiden)。我们检查了各聚类间质量控制指标的分布。我们发现n_genes_by_counts和total_counts在各聚类间高度一致,但其中一个聚类检测率较低(扩展数据图1h);如上所述,该聚类通过SC XGBoost分类器被鉴定为非神经元细胞(扩展数据图1i)。为提高分类分辨率,排除非神经元聚类,得到46,277个神经元细胞的高质量转录组图谱。神经元子集使用与上述类似的框架重新聚类。根据对解释方差曲线的检查,选择主成分维度(n_pcs = 12)(sc.pl.pca_variance_ratio)。随后使用clustree R包中实现的聚类树方法确定聚类分辨率,以评估多个分辨率下的聚类稳定性,并选择1.5的分辨率。然后使用下文所述方法对这些聚类进行标注。
分类及与既往SC图谱的转录组对应关系
为稳健地鉴定上述MERFISH聚类的分子身份,我们采取以下步骤对鉴定出的聚类进行分类,并将其与已建立的SC图谱进行比较:首先,我们检查了一组SC经典标记基因的基因表达模式(图1g),以及基于各聚类平均表达层次聚类得到的这些聚类之间的树状图(sc.tl.dendrogram)。其次,我们使用Allen Institute的MapMyCells工具套件将我们的MERFISH数据比对到10x Whole Mouse Brain(CCN20230722)分类体系30。第三,我们如上所述利用XGBoost分类器,将MERFISH数据与我们及其他已发表的SC scRNA-seq或snRNA-seq神经元类型图谱6,27,28联系起来,以MERFISH panel与snRNA-seq基因之间的共享基因作为特征(扩展数据图2c、g、j)。最后,我们比较了我们的数据与既往发表的SC数据集之间关键标记基因的表达模式(扩展数据图2d)。总体而言,鉴定出的聚类以高分辨率捕捉了SC的神经元多样性,与已有参考图谱相比表现出高度一致性——在某些情况下还具有更高的粒度。
连接性中SC神经元类型的置换分析
我们实施了一项亚层控制下的细胞类型特异性分析,以检验每种 SC 类型在指定与突触前 RGC 输入连接时的特异性(Fig. 2d)。该分析基于一个基于置换的统计框架,并跨小鼠进行 Stouffer z 分数聚合。更具体地说,为评估独立于亚层分布的 mWmC+ 标记的细胞类型特异性富集或耗竭,我们进行了亚层控制的置换检验。在每只小鼠内,SC 神经元按胞体深度分箱(除非另有说明,为 50 µm)。在每个(动物 × 深度箱)层内,细胞类型标签被随机打乱,从而保留 mWmC 标记的亚层分布,同时破坏细胞类型身份与 mWmC 标记之间的关联。除非另有说明,所有置换检验均使用固定随机种子进行 1,000 次置换。对于每次置换,我们计算每种细胞类型的 mWmC+ 细胞数,从而得到在“亚层位置单独解释连接性”这一假设下预期计数的零分布。随后,观测到的 mWmC+ 细胞计数被转换为相对于该零分布的每只动物 z 分数。具体而言,对于每种细胞类型 t 和小鼠 q,z 分数计算如下,
其中 \({N}_{t,q}^{\mathrm{obs}}\) 表示小鼠 q 中类型 t 的 mWmC+ 细胞的观测数量,μt,q 和 σt,q 表示该细胞类型和小鼠的置换衍生零分布的均值和标准差。z 分数提供了相对于亚层预期的富集或耗竭的带符号归一化度量。随后使用 Stouffer 方法跨小鼠聚合 z 分数,如下,
其中 n 是小鼠数量。为检验 mWmC 标记超出亚层预期的双向偏离(富集或耗竭),使用标准正态分布从合并 z 分数计算双侧 P 值,如下,
并使用 Benjamini–Hochberg 错误发现率程序对细胞类型间的多重比较进行控制。正 z 分数表示超出亚层预期的富集,而负 z 分数表示耗竭,反映亚层位置单独高估接受视网膜输入可能性的情况。由于统计推断使用由聚合 z 分数得出的正态理论 P 值(在从置换估计零均值和方差之后),最小可达到的 P 值不受置换次数限制。最后,SC 神经元类型按其聚合 Stouffer z 分数排序,我们将其称为细胞类型特异性分数,代表细胞类型分子身份对 RGC 连接性的偏好(Fig. 2e)。
RGC 轴突在 SC 中的分布
纳入了来自四种不同基因型以及所有 RGC 的 SC 中 RGC 轴突。简言之,冠状脑切片经免疫染色并使用共聚焦显微镜成像,如先前所述43。采集 20 µm 厚度的共聚焦堆叠图像,并处理生成最大强度投影。使用 ImageJ,将每个右侧 SC 半球分成五个等分区段。通过垂直于每个区段软膜表面、延伸至其下方 500 μm 深度的 200-μm 厚线扫描,测量轴突分支的荧光分布。信号强度值以所有图像中的最大强度进行归一化并绘图。使用 MATLAB 中的局部加权散点图平滑函数对曲线进行平滑。使用 ImageJ 分析共聚焦堆叠图像并生成最大强度投影。为量化整个 SC 中的轴突深度,在每个区段内测量从软膜表面到轴突分支上、下边界的最短距离。每种实验条件使用每种基因型的五只小鼠,包括所有 SC 切片。对于从同一只小鼠记录多个神经元的实验,将小鼠身份视为实验单位/随机效应,以考虑数据的层级结构。
视网膜和 SC 的免疫组织化学
视网膜组织学方案如先前所述50。小鼠被安乐死,收集眼球,然后在冰上于 4% PFA/PBS 中固定 1 h。解剖出视网膜并用 PBS 冲洗。对于图 3 中的 whole-mount 视网膜数据,我们采用了先前所述的方案37。whole-mount 视网膜样本在封闭缓冲液(PBS 中 5% 正常驴血清、0.5% Triton X-100)中室温封闭 1 h,然后在 4 °C 下与一抗孵育 2–4 天,随后在室温下与二抗孵育 2 h。封片时,将视网膜平放,神经节细胞面朝上,并用 Fluoromount-G(SouthernBiotech,0100-01)封固。对于扩展数据图 6 中的视网膜垂直切片,我们采用了先前所述的方案37。固定的小鼠视网膜在包埋于 OCT(Epredia)之前,于 PBS 中的 30% 蔗糖中冷冻保护 1 h。制备视网膜垂直冷冻切片(20 µm)并贴到玻璃载玻片上。切片在相同封闭缓冲液中封闭,并在 4 °C 下与一抗孵育过夜,随后在室温下与二抗孵育 1 h。切片用含 DAPI 的 Fluoromount-G(SouthernBiotech)封固。
脑切片组织学如先前所述68。小鼠被深度麻醉,并经心脏灌注冰冷 PBS,随后灌注 4% PFA。脑在 4 °C 下于 4% PFA 中后固定过夜,然后在 4 °C 下于 PBS 中的 30% 蔗糖中冷冻保护,直至组织块下沉。组织直接在干冰冷却的滑动切片机(Leica)载物台上冷冻,并以 40 µm 厚度冠状切片。漂浮切片在上述封闭缓冲液中封闭,并在 4 °C 下与一抗孵育过夜,然后在室温下与二抗孵育 1 h。切片用含 DAPI 的 Fluoromount-G(SouthernBiotech)封片于载玻片上。
所用抗体如下:山羊和鸡抗 GFP(1:1,000,Rockland;1:500,Abcam);兔抗 RFP(1:1,000,Rockland,用于免疫组织化学);小鼠抗 SATB1(参考文献69 中 ooDSGC 的标志物,1:1,000,Santa Cruz);山羊抗胆碱乙酰转移酶(ChAT,1:500,Millipore);兔抗 CARTPT(1:2,500,Phoenix Pharmaceuticals);兔抗 TUSC5(1:500,Novus);兔抗 RBPMS(1:1,000,Poteintech/Fisher);山羊抗 SPP1(1:500,R&D);绵羊抗 FOXP2(1:500,R&D);兔抗 ETV1(1:1,000,J.A.K.)70。二抗偶联 Alexa Fluor 488、Alexa Fluor 568 或 Alexa Fluor 647(Jackson ImmunoResearch),并按 1:1,000 使用。
RNAscope 原位杂交
原位杂交按先前所述68的方法进行,使用 RNAscope Fluorescent Multiplex Kit(Advanced Cell Diagnostics),并按照制造商说明操作。简言之,切片在 4% PFA 中固定,并按“视网膜和 SC 的免疫组织化学”所述脱水,随后风干。用 ImmEdge 笔(Vector Labs,H-4000)在切片周围画疏水屏障。切片用 4% PFA 后固定,用过氧化氢淬灭,并进行靶标修复,随后在 100% ethanol 中脱水。切片用 Protease III 处理,与靶标探针孵育,用一系列扩增试剂处理,并用 TSA 荧光团显色。使用封片剂(VECTASHIELD,Vector Laboratories)封片。RNAscope 探针包括:Cdh7(ACD #521331)、Cbln4(ACD #505411)、Itga7(ACD #542911)和 Sntb1(ACD #440541)。
眼内注射
AAV 的眼内注射按先前所述37,41的方法进行。使用锋利的玻璃微吸管将约 0.5 µl 病毒递送到左眼。所有 AAV(靶向 RGCs 的血清型 2)均标准化至相同滴度 2 × 10¹³ 基因组拷贝。注射后约 4 周(wpi)将小鼠安乐死,并收集视网膜和脑。
- 1. 对于基于 mWmC 的顺行示踪实验,将编码组成型 mWmC 或 Cre 依赖性 mWmC 的 AAV 玻璃体内注射到野生型、Kcng4-cre、Cartpt-cre、Foxp2-cre 和 Tusc5-cre 小鼠。使用锋利的玻璃吸管按先前所述19的方法将 AAV 注射到左眼。小鼠在 4 wpi 时进行处理分析。
对于基于 mWmC 的顺行示踪实验,将编码组成型 mWmC 或 Cre 依赖性 mWmC 的 AAV 玻璃体内注射到野生型、Kcng4-cre、Cartpt-cre、Foxp2-cre 和 Tusc5-cre 小鼠。使用锋利的玻璃吸管按先前所述19的方法将 AAV 注射到左眼。小鼠在 4 wpi 时进行处理分析。
- 2. 对于光遗传学实验,将 AAV2-CAG-ChR2-mCherry-WPRE、AAV2-EF1α-DIO-ChR2(H134R)-EYFP、AAV2-EF1α-DIO-ChR2(H134R)-mCherry 注射到小鼠左眼,以激活所有 RGCs 或 ooDSGCs。小鼠被允许成熟至少 6 wpi,在分析前达到成年(6–10 周)。
对于光遗传学实验,将 AAV2-CAG-ChR2-mCherry-WPRE、AAV2-EF1α-DIO-ChR2(H134R)-EYFP、AAV2-EF1α-DIO-ChR2(H134R)-mCherry 注射到小鼠左眼,以激活所有 RGCs 或 ooDSGCs。小鼠被允许成熟至少 6 wpi,在分析前达到成年(6–10 周)。
- 3. 对于星爆无长突细胞(Chat+)消融实验,将 AAV2-Flex-taCasp3-TEVp 注射到消融组小鼠的左眼或双眼。使用位于眼球背侧和腹侧的 2 个位点进行注射;每个位点注射 0.75 µl 病毒。对于对照组,将相同体积的生理盐水注射到小鼠左眼。注射后 1 个月进行双光子钙成像。
对于星爆无长突细胞(Chat+)消融实验,将 AAV2-Flex-taCasp3-TEVp 注射到消融组小鼠的左眼或双眼。使用位于眼球背侧和腹侧的 2 个位点进行注射;每个位点注射 0.75 µl 病毒。对于对照组,将相同体积的生理盐水注射到小鼠左眼。注射后 1 个月进行双光子钙成像。
立体定位注射
TransA-MERFISH 揭示视网膜后方向选择性回路的差异
成年小鼠 SC 标记:手术期间用异氟烷麻醉小鼠(诱导 3%,维持 1.5–2%),并置于立体定位仪(Model 940, David Kopf Instruments)中。手术前和手术后 1 天腹腔注射美洛昔康(5 mg kg−1)用于镇痛。使用恒温毯将体温维持在 37 °C。将病毒溶液装入与注射器(7634-0, Hamilton)通过双套圈适配器(55750-0, Hamilton)相连的拉制玻璃移液管中。注射速度和体积由微量注射泵(UMP3T-1, WPI)控制。将 AAV2-EF1a-FDIO-mCherry 或 AAV2-EF1a-FDIO-EGFP(1 µl)以恒定速度(60 nl min−1)注射到成年小鼠右侧 SC。
对于 Cdh7-FlpO 和 Cbln4-FlpO 品系,使用了两个注射位点:一个位于 lambda 后 0.35 mm、外侧 0.5 mm、深度 1.3 mm 处,另一个位于 lambda 后 0.1 mm、外侧 0.6 mm、深度 1.2 mm 处。小鼠在 4 wpi 时经心脏灌注。收集大脑用于免疫组织化学分析。此外,专门针对伪狂犬病毒介导的逆行示踪,按上述立体定位注射方法将 AAV8-hSyn-FRT-TVA-P2A-EGFP-2A-oG 病毒(1 µl)注射到 Cdh7-FlpO 或 Cbln4-FlpO 成年小鼠右侧 SC。三周后,将 EnvA G-Deleted Rabies-mCherry(1.2 µl)注射到右侧 SC。狂犬病毒注射后 6 天,经心脏灌注小鼠,并收集大脑和对侧(左侧)视网膜用于免疫组织化学分析。
CRACM
我们使用 Cre/FlpO 策略标记 SC 神经元,并通过将 RGC 特异性 Cre 驱动小鼠与 SC 特异性 FlpO 小鼠杂交来分别操纵 RGC。将 AAV2-EF1α-FDIO-GFP-WPRE 注射到 Cbln4-FlpO 或 Cdh7-FlpO 小鼠右侧 SC 后,我们可以靶向记录 GFP 标记的 SC 神经元。通过向左眼注射 AAV2-CAG-ChR2-mCherry-WPRE 以操纵所有 RGC,或注射 AAV2-EF1α-DIO-ChR2(H134R)-mCherry 以操纵特定类型的 RGC,蓝光(473 nm, 15 mW mm−2)可激活 SC 中的 RGC 轴突末端。
注射后的小鼠用氯胺酮和赛拉嗪(100 mg kg−1, 12.5 mg kg−1)麻醉,并用冰镇 Cutting solution(78.3 mM NaCl, 2.3 mM KCl, 33.8 mM choline-Cl, 0.45 mM CaCl2, 6.4 mM MgCl2, 1.1 mM NaH2PO4, 23 mM NaHCO3, 20 mM D-glucose, 0.5 mM L-glutamine, pH 7.4)经心脏灌注。解剖大脑,并在冰镇、充碳酸混合气的 Cutting solution 中使用振动切片机(VT1200S, Leica)制备冠状脑切片。收集含 SC 的切片(厚度 250 μm),并转移至充满充碳酸混合气 Cutting solution 的 32.5 °C 孵育室中。孵育 30 分钟后,将切片转移至室温人工脑脊液(ACSF; 125 mM NaCl, 2.5 mM KCl, 1.25 mM NaH2PO4, 26 mM NaHCO3, 1 mM MgCl2·6H2O, 2 mM CaCl2, 20 mM D-glucose, pH 7.4)中,随后进行记录。Cutting solution 和 ACSF 持续用 5% CO2 和 95% O2(Carbogen, Airgas)鼓泡。
文章标题:TransA-MERFISH 揭示视网膜后方向选择性环路的分化
正文: 将一台安装于荧光显微镜(BX51WI,Olympus)上的 CCD 相机(IR-2000,DAGE-MTI)用于检测被红色轴突终末包围的绿色细胞。在 IR-DIC 可视条件下进行靶向全细胞记录。玻璃微电极(BF150-86-10,Sutter Instrument)由拉制仪(P1000,Sutter Instrument)拉制成记录电极(3–5 MΩ)。记录电极内充灌钾基内液(135 mM 葡萄糖酸钾、8 mM KCl、10 mM HEPES、0.25 mM EGTA、2 mM MgATP、0.3 mM Na2GTP、7 mM 磷酸肌酸,pH 7.3)。所有数据均使用 MultiClamp 700B 放大器和 1440A DigiData(Molecular Devices)采集。信号以 10 kHz 数字化,并在 1 kHz 低通滤波。轴突激活使用 473 nm LED(Cool LED,pE300)完成。每次试验给予五个光脉冲(2 ms)。破膜后,将细胞钳制在 −65 mV 并施加全细胞补偿。电压钳模式用于记录诱发性 EPSC,电流钳模式用于记录动作电位。向 ACSF 灌流液中加入河豚毒素(TTX,1 µM)和 4-氨基吡啶(4-AP,100 µM)以确认单突触连接。加入 CNQX(10 µM)和 APV(50 µM)以确认谷氨酸能突触。对于从同一只小鼠记录多个神经元的实验,将小鼠身份作为实验单位或随机效应处理,以考虑数据的层次结构。
电生理记录后的染料填充
如先前所述71,使用含 Biocytin(0.5%,B4261-100mg,Sigma)的内液进行电生理记录和染料填充。记录结束后,脑切片用 4% PFA 在 4 °C 下固定过夜,然后用封闭液(含 0.3% TritonX-100 和 5% 正常驴血清的 PBS)在 4 °C 下封闭一天。随后将切片与 Streptavidin-488 或 555(1:1,000,Invitrogen)在室温下孵育 2 h。切片封片后,使用 Zeiss 共聚焦显微镜(LSM900)采集图像。
在体双光子钙成像
如先前所述72,使用双光子显微镜对小鼠 SC 进行在体钙成像。
手术在八周龄转基因小鼠上进行。在右侧 SC 上方完成开颅、病毒注射和透明硅胶塞植入。小鼠用氯胺酮和甲苯噻嗪麻醉,置于立体定位仪中,眼睛涂以眼膏。小鼠以 2% 异氟烷麻醉维持,并注射美洛昔康(5 mg kg−1)。在颅骨 lambda 处上方开颅,用镊子(Dumoxel-Biology 11252-30,FST)在硬脑膜上打开一个大瓣。向右侧 SC 注射 400 nl AAV8-EF1α-FDIO-GCaMP6s。将与 5 mm 圆形盖玻片粘合的硅胶塞安装在吸盘上,并置于开颅处上方。硅胶塞向下推进以压迫脑组织,然后向前移动以移位硬脑膜和横窦。用一滴氰基丙烯酸酯(Vetbond,3 M)将硅胶塞固定于颅骨,随后释放负压并撤出吸盘。用氰基丙烯酸酯(Vetbond,3 M)和牙科水泥(Ortho-Jet,LangDental)将定制的头板(钛制,1 mm 厚,eMachineShop)粘合于颅骨。植入颅窗至少 2 周后,小鼠在双光子显微镜下至少 4 次适应抓取和头部固定。
我们使用双光子显微镜(Neurolabware)配合 Spectra-Physics MaiTai 激光器在 920 nm(15–50 mW)下激发 GCaMP6s,对小鼠的钙响应进行成像。SC 中的成像在软膜表面以下 50–200 µm 深度进行。以 15.5 Hz 扫描 575 × 370 µm 视野,产生一系列 416 × 268 像素图像。将一台切向 LCD 屏幕(Dell,U2312HM)置于头部固定小鼠左眼前,用于呈现由 Psychtoolbox3(MATLAB)生成的视觉刺激,并通过来自刺激屏幕的 TTL 信号与图像采集同步。屏幕中心距小鼠 14 cm,在俯仰和偏航方向上倾斜 20 度,以尽量减少鱼眼畸变。我们对每只小鼠成像约 1 小时,如有需要可在连续多天进行多次 session,以呈现一组视觉刺激并获取稳定成像。
视觉刺激呈现在屏幕的切向区域(1,920 × 1,080 像素)上。屏幕在每条扫描线结束时以 2 µs 进行频闪(1,200 Hz;灰色屏幕亮度,1.25 cd m−2;最大亮度,未改装显示器的 1/80),以尽量减少视觉刺激与双光子荧光检测之间的干扰。所有呈现的刺激仅使用屏幕的绿色和蓝色通道。屏幕底部覆盖黑色胶带,红色条在该处周期性闪烁,以传递视觉刺激的时间信息,从而与荧光采集同步。双光子实验中的所有视觉刺激均以伪随机序列呈现,在每个刺激组内穿插空白时段,每个组使用不同的随机种子。移动光栅用于测试 SC 神经元的方向选择性。漂移光栅宽 100 像素(6.4°),带有黑色或白色条,以 356 像素每秒(22.7° 每秒)的速度沿 8 个方向(45° 间隔)漂移。为映射感受野,在刺激显示器上以 9 × 5 位置阵列呈现闪烁光点。每个光点为 216 × 216 像素(13.8° × 13.8°)的方块,出现 1 秒。所有视觉刺激在每个试次中重复六次。
为检验同侧眼对 Cbln4+ SC 神经元方向选择性的贡献,我们在钙成像期间用黑盒遮住同侧眼。实验后移除该盒。
钙信号数据处理
我们通过 NoRMCorre73 对钙成像数据进行离线运动校正,识别 GCaMP6s+ 细胞,提取每个细胞的钙迹线,并减去神经毡信号。接下来,我们使用通过 TTL 信号从刺激显示器传递到显微镜的同步脉冲将迹线与视觉刺激对齐,这些脉冲在成像数据中带有时间戳。对于具有高峰值噪声尖峰的迹线(无法校正的小鼠大幅运动),我们使用去噪算法用平滑迹线替换噪声点。噪声尖峰迹线通过是否存在大于均值 ± 4 s.d. 迹线的点来确定。然后,将钙迹线与每个视觉刺激的起始对齐,跨试次平均,并识别每条平均迹线的峰值和谷值。
方向选择性指数计算
DSI 计算遵循先前发表的方案74。每次呈现刺激的 ΔF/F 值由六次重复平均得到,每个方向的峰值 ΔF/F 用于计算方向偏好。方向选择性指数(DSI)按所有方向的向量和的归一化幅度除以它们的标量和来计算。DSI > 0.2 的细胞被归类为方向选择性。偏好方向定义为八个刺激角度上的加权向量和。
数据量化与分析
共聚焦图像采集的所有流程均以双盲方式进行。一名研究人员在不知晓基因型的情况下采集图像,另一名进行分析的研究人员也同样处于盲态。除非另有说明,所有实验均使用同窝仔鼠作为对照。雌性和雄性小鼠均纳入。图像在配备 10× 空气物镜、20× 空气物镜和 40× 油浸物镜的 Zeiss LSM900 共聚焦显微镜(Carl Zeiss Microscopy)上采集。
为量化 SC 和视网膜中的免疫染色细胞,所有样本的视网膜垂直切片、SC 冠状切片和全视网膜铺片的共聚焦图像均在相同成像条件下采集。获取 20 µm(视网膜和 SC 切片)或 60 µm(全视网膜铺片)的共聚焦堆栈,并处理生成最大强度投影。各标记物阳性的细胞通过阈值化荧光强度标准进行判定。使用 ImageJ(NIH)中的 Cell Counter 插件手动计数单阳性和双阳性细胞。对于 RNAscope 原位杂交,经 RNAscope 处理和免疫染色的 SC 切片在 Zeiss LSM900 上使用 20× 物镜成像。如上所述,对所有染色样本中 GFP 阳性神经元或标记物阳性细胞的数量进行计数。数据跨动物合并,结果以百分比表示(平均值 ± s.e.m.)。用于组织学的共聚焦图像文件使用 Fiji Image J(v1.53c)、Microsoft Excel 365、Graph Pad Prism9、Adobe Illustrator 2020 进行分析。电生理数据采集和分析未针对实验条件以盲法进行。所有全细胞记录数据均由 Camplex 10.7(Molecular Devices)采集,并在 MATLAB(MathWorks)或 Clampfit 10.7(Molecular Devices)中分析。光遗传学诱发的电流在 5 次试验中取平均。Clampfit 10.7 测量诱发电流的峰值幅度。MATLAB 分析记录神经元的固有特性。所有统计量均由 GraphPad Prism 9 计算。两组之间的峰值电流使用双尾 Student t 检验进行比较。
视动反应测试
视动反应此前已有描述75。OptoDrum(Striatech)由一个带有四个屏幕的箱体组成,用于模拟漂移光栅。箱体顶部安装的红外相机用于记录小鼠运动。小鼠先在其笼内适应房间 30 分钟。随后,将自由活动的小鼠放置在平台上,并让其适应箱体至少 5 分钟。顺时针方向的漂移光栅(12° s−1)可触发左眼介导的身体和头部运动,而逆时针方向的漂移光栅用于测试右眼介导的运动。漂移光栅从低空间频率(0.056 周/度)呈现到高频率(0.3–0.5 周/度),以确定小鼠能够跟踪的阈值。OptoDrum 的软件可检测小鼠体形,并标记小鼠头部、身体和尾部的位置。如果小鼠出现理毛行为或从平台掉落,刺激和视频跟踪会暂停,之后恢复。该软件可对视动反应进行评分,并确定空间频率阈值。假阳性被人工判定为无效,并重复相同频率的漂移光栅。我们比较了左眼(消融)与右眼(对照)触发视动反应的漂移光栅空间频率阈值,以评估视力差异。
统计方法
我们从不同的生物样本中获得测量结果。未检验协变量。未进行正式的正态性检验;统计检验根据数据的分布假设选择。每种实验配置所用的统计方法和动物数量记录在各实验的图注中。比较两组时,统计量根据图注所示,使用非配对双侧 Student t 检验、Kolmogorov–Smirnov 检验或 Fisher 精确检验得出。为比较多种反应中的细胞类型比例,我们使用 Kruskal–Wallis H 检验(scipy.stats.kruskal, Python)。在 GraphPad Prism 9 中进行单因素方差分析(ANOVA),以评估多个测量值之间差异的统计显著性。
Fisher 精确检验使用 Easy Fisher Exact Test Calculator(https://www.socscistatistics.com/tests/fisher/default2.aspx)进行。
统计显著性定义为 P < 0.05、P < 0.01、P < 0.001 和 ****P < 0.0001。所有数值均表示平均值 ± s.e.m.,除非另有说明。
报告摘要
有关研究设计的更多信息可在与本文链接的 Nature Portfolio Reporting Summary 中获取。