 Newshot
主要
在许多热带地区,生物多样性丰富的原始雨林已被木本经济作物单一栽培所取代,包括油棕、橡胶、咖啡、可可和木材种植园5。与此同时,传统和现代热带农林复合系统6——长期被视为兼顾生产与生态可持续性——正被更高强度的农业所取代7,8。土地利用变化和土地利用集约化的此类趋势对热带生态系统的生物多样性和功能构成重大威胁9,10。然而,量化其影响仍然具有挑战性,因为对高度多样的热带生态系统进行多营养级调查需要巨大投入,不同分类群的反应往往相反,而且生物多样性具有尺度依赖性11。
土地利用变化和集约化对热带生物多样性的多重负面影响日益得到充分记录,尤其是在局域尺度(α多样性)上。以往研究表明,热带农业系统中的α多样性通常显著低于森林,物种多样性下降与生态功能衰退相关12,13,14,15。尽管保护区对于缓解这些负面影响至关重要16,但热带生物多样性的长期存续也将取决于保护区边界之外的保护。因此,设计对生物多样性友好、能够维持区域多样性(γ多样性)且不损害经济目标的热带农业镶嵌景观至关重要3,8,15。实现这一目标需要深入理解群落组成如何在样点间变化(β多样性)17。β多样性要么源于样点间的物种替换,即每个样点拥有不同的物种集合(周转),要么源于物种较少的群落成为物种较丰富群落的子集(嵌套性)18。因此,在高度多样的热带生态系统中,识别土地利用集约化背景下β多样性的空间、环境和管理相关驱动因素,可能为更有效的景观尺度管理提供指导19。
在此背景下,一个重要但研究不足的过程是生物同质化;有人提出,它是人类世塑造物种群落和全球生物多样性的主导动态20。生物同质化发生在群落组成变得越来越相似时,通常是通过特化、稀有或依赖森林的物种丧失,以及它们被广布泛化种(包括非本地物种)取代而实现21。相比之下,生物分化发生在群落物种组成变得更加不相似时,其来源包括局域获得(如引入非本地物种)或物种丧失(包括优势本地物种的灭绝)17,22。物种丧失和获得的格局可能掩盖曾经有森林的景观中生物区系的逐步侵蚀,从而掩盖全球生物多样性危机的真实程度。在异质性农业景观中,分化也可能源于多种半自然生境,这些生境支持不同的物种组合。由于同质化和分化可能同时发生,理解它们的综合动态对于评估土地利用集约化的完整影响至关重要——然而,这种相互作用仍未得到充分探索17,22。
文章标题:热带土地利用集约化重塑生物多样性
正文: 我们通过对24个分类群进行系统性生物多样性调查,填补了这一知识空白,调查覆盖了生命的所有域、多个营养级以及地上和地下部分。群落在四种不同的土地利用类型中采样——低地森林,以及三种农业土地利用类型:低强度橡胶农林(以下简称丛林橡胶)和集约化管理的小农橡胶和油棕种植园(图1)。生物多样性和环境数据采用标准化设计采集,覆盖印度尼西亚苏门答腊岛Jambi省小农主导的农业热带低地中2个不同景观内的32个采样样地(扩展数据图1)。这一综合数据集建立在长期合作研究项目的基础之上,该项目已生成详细的分类学、功能性和营养级信息,以及连接生态和社会经济维度的综合分析(方法)。在此基础上,我们通过研究热带土地利用集约化在多个空间尺度上对多营养级群落组合的影响,提供了一种新的视角。印度尼西亚兼具非凡的生物多样性和世界上最高的森林砍伐率,使其成为热带土地利用变化的关键前沿地区23,24,25,也是研究日益成为全球小农主导热带地区典型特征的土地利用轨迹的模范区域。
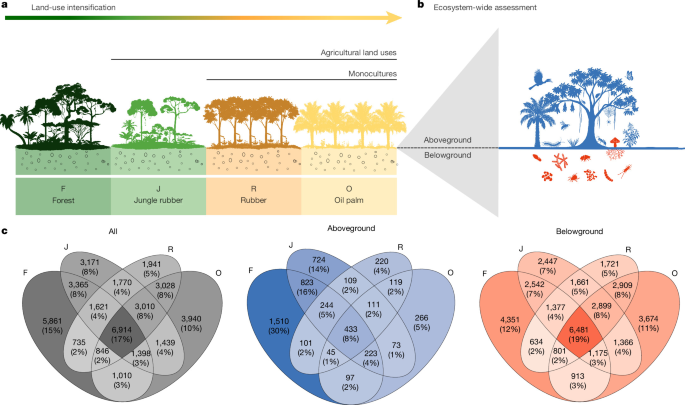
a,所研究的土地利用集约化梯度从低地森林(F)到三种集约化程度递增的农业土地利用类型:低强度丛林橡胶农林(J),以及集约化管理的小农橡胶(R)和油棕(O)单一栽培。b,我们的生态系统范围评估涵盖了印度尼西亚苏门答腊的24个地上和地下分类群。c,土地利用对物种或微生物OTU数量及比例的影响。Venn图中的阴影强度反映物种数量和比例,无论是将所有分类群合并考虑还是分开地上和地下分类群,较深的阴影表示较高的值。图标由Ira Taliki(a)和Milena Sampaio(b)提供。
各分类群生物多样性的广泛丧失
我们发现该地区仅存的少数热带森林构成了不可替代的生物多样性储库。总体而言,5,861个物种仅出现在森林中(占我们研究中所有记录物种的15%;包括物种、形态种和操作分类单元(OTU)或扩增子序列变体——以下统称为物种),包括1,510个地上物种(占所有地上物种的30%)和4,351个地下物种(占所有地下物种的12%)(图1)。森林依赖性在树木、林下植物和中气门螨中最为显著,每个类群中至少有40%为严格森林关联物种(扩展数据图2和3)。这些估计是保守的,因为我们的采样设计包含的农业样地数量是森林样地的三倍(补充图1–3),而我们在所有四种土地利用类型中的采样努力是相等的。此外,我们研究景观中剩余的森林已面临退化。因此,数据可能低估了完整森林的生物多样性潜力,而是反映了当前森林退化的轨迹26。综合来看,这些结果表明很大比例的物种库依赖于森林,凸显了恢复剩余森林栖息地、同时保护和防止进一步农业扩张16,27以及持续森林退化28的紧迫性。
生物多样性的相当大一部分持续存在于农业小农户景观中:记录到的物种中有近40%可被视为森林泛化种——即同时出现在森林和一种或多种农业土地利用中的物种(15,889种,其中地上1,966个分类单元、地下13,923个分类单元)。然而,森林地上泛化种(1,966种)中几乎一半未出现在单作中,仅出现在森林和 jungle rubber 中(823种;图1)。至少60%的地上生物多样性(3,057种)局限于森林和 jungle rubber,因而易受持续发生的(农)林丧失的影响13。这一趋势在冠层蝽(半翅目)、膜翅目寄生蜂、蜘蛛和树木(其物种中有超过20%仅在这两种土地利用之间共享)以及蝙蝠(40%在这两种土地利用之间共享;扩展数据图2)中尤为明显。在所有地下物种中,19%(6,481种)在所有土地利用之间共享,7%的物种仅在森林和 jungle rubber 之间共享(2,542种;扩展数据图3)。地上森林与 jungle rubber 群落之间的巨大重叠提供了强有力的经验证据,表明混农林比单作能为数量多得多的依赖森林的物种提供适宜栖息地29,30。尽管混农林不能替代完整森林,但传统农业系统的生物多样性价值应得到认可,这些系统缓冲了该农业景观中的生物多样性损失。混农林还代表了增强人类改造景观中生物多样性的潜在杠杆点28,例如通过用本地树木丰富现有单作3,4。
总体而言,土地利用集约化驱动了从物种丰富的地上依赖森林物种库向与单作相关的较小物种集合的显著转变。这一转变伴随着γ-多多样性的显著丧失——γ-多多样性定义为每种土地利用内各分类群1的标准化物种丰富度值的平均值。相对于森林(γ-多多样性 = 0.91),γ-多多样性在 jungle rubber 中下降了20%(0.73),在单作中下降了约78%(0.20)(图2;地上和地下γ-多多样性分别见扩展数据图4)。因此,我们的结果表明集约化带来了明显的生物多样性丧失,尤其是对地上物种。
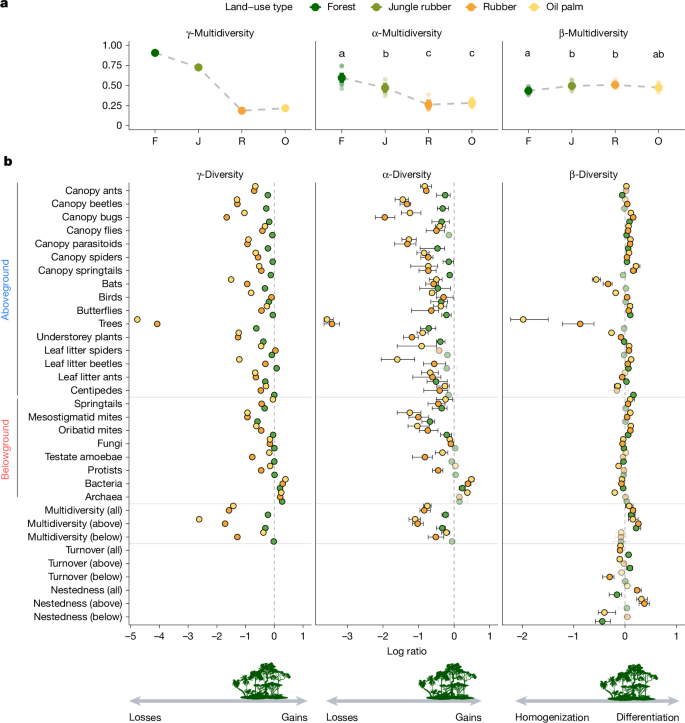
a,使用双侧方差分析(ANOVA)II型,土地利用对α-多多样性(样地水平上各分类群标准化物种丰富度的平均值;R2 = 0.81,F = 38.68,P < 0.001)和β-多多样性(每个样地基于Jaccard的各分类群标准化β-多样性的平均值,R2 = 0.30,F = 4.06,P = 0.016)有显著影响。使用ggeffect进行线性模型拟合(边际均值与95%置信区间,n = 32个样地)。字母表示基于Tukey对比法的均值多重比较得出的统计显著成对差异(P < 0.05),P值经错误发现率校正。b,点和线(均值与95%置信区间,使用10,000次bootstrap重复)表示以森林为对照时与土地利用集约化相关的多样性对数比值。置信区间不重叠于零表示与森林存在差异(彩色点;黑色置信区间;颜色较浅表示95%置信区间包含零)。负值和正值分别表示与森林均值相比物种丰富度或同质化的下降(物种丰富度丧失或同质化),或物种丰富度和分异的增加。对于β-多多样性组分,负值和正值同样表示相对于森林的周转或嵌套性下降或增加;单个分类群的值见扩展数据图6。
β-多样性响应呈现特异性
我们假设土地利用集约化会一致地降低各分类群的α-多样性并促进生物同质化,从而使得某种农业土地利用类型所包含的群落比森林更为相似(β-多样性更低)。相反,当农业土地利用下的群落在物种组成上变得比森林更加不相似时,则发生生物分异。为检验这一假设,我们将α-多样性量化为局部物种丰富度和α-多多样性。α-多多样性定义为使用min–max缩放方法(方法)在每个土地利用类型中样地水平上各分类群标准化物种丰富度的平均值1。为评估每种土地利用类型内群落组成的变化,我们将β-多样性量化为每个样地聚合的成对不相似性,并将β-多多样性量化为使用min–max缩放方法每个样地各分类群标准化β-多样性的平均值。
我们观察到α-多多样性随土地利用集约化而大幅下降(R2 = 0.81,F = 38.68;P < 0.001;图2、扩展数据表1以及扩展数据图4和5),从森林中的0.59(95%置信区间:0.54–0.65)降至丛林橡胶中的0.47(95%置信区间:0.42–0.52),以及橡胶园和油棕园中的0.26和0.28(95%置信区间分别为0.21–0.32和0.23–0.34;图2和扩展数据表1)。这相当于从森林到单一种植园α-多多样性损失约50%(图2)。相对于森林,在丛林橡胶、橡胶园和油棕园中分别有15、21和21个分类群出现显著下降,分别对应地上分类群的75%、94%和100%,以及地下分类群的38%、75%和63%(图2)。树木表现出最大的变化,因为它们直接受到森林砍伐、种植和当前管理实践(除草剂施用、人工除草、施用石灰和肥料)的影响,以及种植园中小气候和土壤相关立地条件的改变13,30。单一种植园中的此类生物多样性丧失可能通过改进管理31以及多样化、可持续的生产系统3,4在局部得到部分缓解。
在农业土地利用类型中的土壤细菌以及油棕种植园中的古菌,是唯一观察到相对于森林出现显著物种增加的类群(Fig. 2)。这些类群的物种增加可能出现,例如由于石灰施用和施肥等管理措施,这些措施提高土壤 pH32 和生物有效氮的可利用性,改善特定细菌和古菌类群33的生长条件。然而,这些类群在群落组成和生物同质化方面表现出明显变化(详情见下文;Fig. 2 和 Supplementary Fig. 4),突出表明仅凭物种丰富度的变化无法捕捉土地利用集约化对整个生态系统的影响。
β-Multidiversity 在土地利用类型间仅表现出细微但显著的变化(基于标准化 Jaccard;R2 = 0.30,F = 4.06,P = 0.016;Fig. 2 和 Extended Data Table 2)。这种不那么明显的多多样性丧失,部分可由生物同质化或分化的类群特异性模式解释(Fig. 2)。在丛林橡胶、橡胶和油棕中,分别有 5、6 和 9 个分类群发现显著的生物同质化——农业土地利用类型中的 β 多样性低于森林中的 β 多样性;而有 9、13 和 12 个类群表现出显著分化——农业土地利用类型中的 β 多样性高于森林。其余类群既没有显著同质化也没有显著分化。24 个分类群中只有 10 个在农业系统中表现出一致响应——要么同质化(林下植物、真菌和细菌),要么分化(冠层蝽类、蝇类、拟寄生物、蜘蛛、蝴蝶、枯落物甲虫和甲螨;Fig. 2)。
特异性响应可能反映了土地利用类型对生境的特定影响,以及干扰与环境异质性之间的相互作用19,34(Supplementary Fig. 5)。例如,生物和非生物过滤可能通过管理直接导致森林专性种丧失,从而驱动树木群落的同质化。影响也可通过资源同质化间接起作用——例如,通过施肥或植物资源在组成和季节性上的同质化,影响跨营养和非营养相互作用的生态位分离。进一步的间接影响通过种子传播、补充、生长和存活起作用34。类似地,土壤微生物群落中的同质化可能源于通过植物–真菌关联变化35的过滤,以及通过被动扩散36,37,38降低的扩散限制。相比之下,生物分化可能源于溢出和偶见种,正如先前在节肢动物19中观察到的那样,并得到我们对冠层节肢动物基于丰度的相异指数的结果支持(Supplementary Results)。生物同质化和分化不仅可由群落组成变化引起,还可由空间聚集、物种丰度分布和单位面积个体密度变化引起39。这些生态机制具有生物学相关性,受土地利用集约化改变,并被我们的方法捕获39。
热带土地利用集约化重塑生物多样性
周转
Tropical land-use intensification restructures biodiversity
不同土地利用类型在物种组成上差异显著,这一点可由跨所有分类群聚合的平均成对群落相异性的排序分析(图3)以及相似性分析(ANOSIM;R = 0.92;P < 0.001)所显示。从森林到单一种植园的组成变化主要与微气候和植被结构的变化相关(图3)。这些结果得到了多因子分析的佐证,该分析可在不假设因果关系的前提下识别两个或多个数据矩阵之间的共同结构44。跨分类群和环境变量的共同结构与土地利用相一致(第一维解释了18%的方差,并与土地利用类型相关),且主要由真菌、原生生物、细菌、甲螨以及冠层蜘蛛和蝽类的组成变化所驱动(补充表1和补充图6)。一项使用相同样地的先前研究表明,随着土地利用集约化,组成变化表现为植物共生菌的丧失和病原真菌的增加35,尽管不同土地利用类型之间真菌丰富度几乎未发生变化。因此,理解土壤群落的组成变化具有高度相关性,因为它们会影响生态系统功能——例如,通过地上-地下相互作用和养分循环33,35。
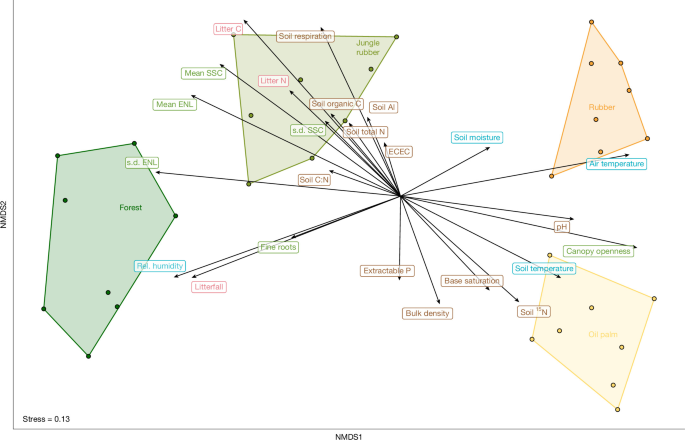
跨样地平均成对相异性(Jaccard指数)的非度量多维尺度(NMDS)排序,聚合了全部24个分类群。多边形勾勒出土地利用类型。向量表示环境变量,按类别分组。类别包括微气候(蓝色:air temperature,平均气温;rel. humidity,平均相对空气湿度(%);soil moisture,平均土壤湿度(vol%);soil temperature,平均土壤温度);植被(浅绿色:canopy openness,冠层开阔度;fine roots,细根生产力;mean ENL,平均有效植被层数;mean SSC,平均林分结构复杂度;s.d. ENL,有效植被层数的标准差;以及 s.d. SSC,林分结构复杂度的标准差);凋落物(粉色:litter C,凋落物碳含量;litterfall;以及 litter N,凋落物氮含量);以及土壤性质(棕色:bulk density,容重;ECEC,有效阳离子交换量;base saturation,盐基饱和度;extractable P,Bray可提取磷;pH,土壤pH;soil 15N,土壤15N自然丰度特征;soil Al,铝饱和度;soil C:N,土壤C:N比;soil organic C,土壤有机碳;soil respiration,土壤呼吸;以及 soil total N,土壤全氮)。
识别生物多样性变化的主要驱动因素对景观管理至关重要。β多样性研究常常比较生态中性过程与基于生态位的群落构建的作用45,46,47。地理距离对β多样性的强烈贡献表明中性、扩散相关过程占主导,而环境变量的强烈贡献则表明生境过滤发挥重要作用48。为厘清地理距离、环境差异和景观背景对β多样性的相对贡献,我们进行了广义相异模型(GDM)分析49。GDM解释了林下植物、真菌、细菌、原生生物、冠层蜘蛛、甲虫、蝽类、寄生蜂和跳虫,以及乔木、古菌、蝴蝶和甲螨β多样性的大量变异(>50%)(图4)。成对β多样性的变异与环境变量密切相关,尤其是植被和凋落物可获得性,二者均随土地利用类型而变化42。相比之下,地理距离对大多数分类群β多样性的贡献较弱(图4)。这表明在所研究的景观镶嵌体中,生境过滤而非扩散在构建物种集合方面发挥更强作用。
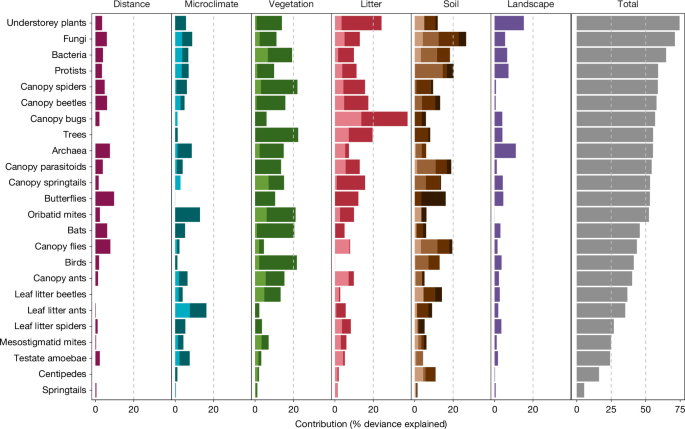
GDM结果。对于每一组环境变量,计算并选取主成分,直至累计解释方差达到80%;这些主成分被用作GDM的预测变量。颜色深浅表示各个主成分维度。变量载荷见扩展数据图7。使用250次置换的Monte Carlo抽样得到的模型统计量和预测变量重要性见补充表2和3。景观背景由每个样地周围200 m同心缓冲区内平均森林覆盖率表示。
解释力最强的三个分类群——林下植物、真菌和细菌——在农业土地利用中也表现出均质化(图2)。这一模式表明,均质化在很大程度上由与土地利用引起的环境变化相关的确定性过程驱动,包括土壤扰动和施肥的直接影响,以及有意用单一(通常为非本地)目标作物替代森林物种、通过建立同龄林结构改变植被结构的间接影响。此外,生物均质化还受周围景观特征驱动(补充表3)。导致生物分化的过程也可能源于植被结构变化,如大多数冠层栖息类群中所观察到的那样。因此,对许多类群而言,均质化和分化可与土地利用集约化30后生境结构的剧烈变化以及剩余周围森林的变化相联系。尽管如此,生物分化也可能与环境条件和周围景观关系较弱,如凋落物蜘蛛、中气门螨和跳虫。因此,生物分化可能更具随机性,并可能由本研究中未量化的扰动、遗留效应或集合种群和集合群落动态驱动。
结论
我们的结果提供了详细见解,说明热带土地利用集约化如何通过物种丰富度和群落组成的同步变化重塑生物多样性。我们记录到从低地森林到单一种植,γ 和 α 多维多样性显著下降,且主要由地上类群驱动。研究区域内不断减少的热带(退化)森林和传统农林复合系统构成了不可替代的生物多样性库,但其生物多样性正陷入危机,需要紧急保护和恢复行动。地上与地下部分之间的差异化响应,凸显了整合跨越体型和移动能力的多个分类群的必要性。我们没有发现土地利用集约化会导致一致的群落均质化的证据。相反,与以往研究一致,我们发现了分类群特异且看似特殊的生物均质化和分化模式19,20,22,50,但我们也揭示了单一种植中从周转向嵌套性的系统性转变。我们的结果要求谨慎解读群落均质化和分化的空间格局,并进行长期监测,因为均质化—分化趋势可能具有尺度依赖性(符合景观分异假说),并且可能在小农种植园和工业化种植园之间存在差异,而这些种植园未纳入我们的研究。此外,群集简化的早期阶段可能掩盖通向生物均质化的轨迹。总体而言,我们的结果表明,土地利用集约化会在不同空间尺度上改变多维多样性,并对生物群落及其非生物环境产生全生态系统层面的后果,还表明栖息地过滤的作用强于中性或扩散过程。有效的保护将受益于认识到传统农业系统的保护价值;在我们的研究区域,这些系统缓冲了多种广适森林物种的丧失,并表现出高水平的 β 多样性。这些传统农业系统目前面临用途转换的压力,并且不在保护重点和景观规划范围之内。此外,在常规单一种植中实施可持续管理实践2,3,4,可能有助于缓解生物多样性丧失,并促进这些农业景观中的景观分化。多个分类群之间的分化不应掩盖关键分类群内部正在发生的均质化,例如蝙蝠、鸟类、树木和林下植物。因此,越来越需要为重点分类群确立保护优先事项,包括量身定制的景观尺度解决方案,以最大化森林相关生物多样性的 γ 多样性,例如保护这一生物多样性热点中不可替代的特有种。
方法
研究区域和研究设计
我们的研究在印度尼西亚苏门答腊岛上的 Jambi 省开展。这一热带低地地区自20世纪以来经历了广泛的土地利用变化,是印度尼西亚小农农业的一个展示案例13,42。在 Jambi 省内选择了两个采样景观,“Harapan”和“Bukit Duabelas”(分别对应壤质和黏质 Acrisol 土壤)。在每个景观中,针对该地区常见的四种土地利用类型各建立四个 50 m × 50 m 的重复样地:原生退化森林(参照文献51的定义)、jungle rubber(一种传统混农林业系统,通过在次生林内种植橡胶树建立)、小农单一橡胶种植园和小农单一油棕种植园——总计32个样地。每种土地利用类型的重复样地数量与热带低地地区的其他生态学研究相当52。诸如微气候等各种测量在样地水平进行。其他测量,例如大多数生物多样性采样,在每个样地内建立的五个永久性 5 m × 5 m 子样地中进行。所有样点均于2012年选定。此时,橡胶种植园建立于7–16年前,油棕种植园建立于8–15年前。对于 jungle rubber,所选样地包含较老的非橡胶树,单株橡胶树年龄不一且未成行种植13。
Jungle rubber、橡胶和油棕样地为小农所有并由其管理,而森林样地位于 Bukit Duabelas National Park 和 Harapan 雨林恢复特许经营区(PT REKI)。在我们的研究区域,小农通常不会在此处考察的目标经济作物旁种植粮食作物,仅有少数例外8,42,43。我们的油棕样地在1 km缓冲区内平均被约13.6%的森林和约61%的油棕种植园环绕,而工业化油棕种植园分别为约0.45%和约96%41。此外,与工业化油棕种植园41(1.12 l ha−1 year−1和141 kg N ha−1 year−1)相比,我们的油棕样地接受的除草剂(0.73 l ha−1 year−1)和肥料(6.6 kg N ha−1 year−1)更少。橡胶和油棕小农种植园代表了本研究纳入系统中土地利用强度的最高水平。然而,大规模工业化种植园的土地利用强度甚至更高。关于研究区域、研究设计、土地利用类型以及小农系统的管理实践的更多信息见其他文献8,13,42。这些研究中的数据汇编也为本研究提供了基础,但近年来已大幅扩展。例如,参考文献42针对3个分类群提供了多分类群视角,参考文献13针对9个分类群,参考文献8针对14个分类群。
物种数据
我们研究了从冠层到土壤分布的24种不同的生物多样性指标,即:(1) 蚂蚁(膜翅目:蚁科),(2) 甲虫(鞘翅目),(3) 真蝽(半翅目),(4) 蝇(双翅目)53,(5) 寄生蜂(寄生性膜翅目),(6) 蜘蛛(蛛形目),以及(7) 跳虫(弹尾目),来自冠层;(8) 蝙蝠(翼手目),(9) 鸟类(鸟纲),(10) 蝴蝶(鳞翅目),(11) 树木(管状植物门),(12) 林下植物(管状植物门),(13) 蜘蛛,(14) 甲虫,以及(15) 蚂蚁,来自枯枝落叶层;(16) 蜈蚣(唇足纲),(17) 跳虫,(18) 中气门螨(中气门目),以及(19) 甲螨(甲螨目),来自枯落物和土壤;以及(20) 真菌,(21) 有壳变形虫,(22) 原生生物,(23) 细菌,以及(24) 古菌,来自土壤(补充表4)。这些生物多样性指标代表了广泛的分类群,涵盖了所有生命领域、各种营养级,以及多样的生态策略、扩散能力和体型大小。这一综合数据集建立在长期合作努力的基础上,产生了对各个分类群的详细见解,包括物种描述54,55,56,57,58,59、野外指南60,61,62,63以及功能和营养相互作用53,64,65,66——还有生态系统范围的分析和连接生态与社会经济维度的综合研究8,13,42。
冠层节肢动物
冠层节肢动物(蚂蚁、甲虫、蝽、蝇、寄生蜂、蜘蛛和跳虫)通过冠层喷雾法在2013年5月至10月的旱季采集。在32个样地中的每一个,选择了3个代表性的冠层位置,避开冠层空隙和过于密集的冠层。在这3个位置中的每一个,16个矩形陷阱(1米×1米)配备装有100毫升乙醇的瓶子,用绳索悬挂在所选冠层下方约1.50米处。将50毫升DECIS EC 25(活性成分:溴氰菊酯25克/升)溶解在4升石油白油中,使用Swingtec Swingfog SN 50从地面施用于目标冠层。在所有四个土地利用系统中,目标冠层由不同树木的叶子组成。在完全施用喷雾混合物后最多2小时内,从陷阱中收集被击晕和死亡的节肢动物。冠层喷雾在清晨日出后立即进行,以最小化会驱散雾气的空气流动。这仅在干燥条件下进行,确保小型节肢动物不会被困在树叶和树枝上的水滴中。总体而言,通过这种方式收集了372,146只冠层节肢动物个体53,并对选定的分类群分类为形态种。本研究包括以下分类群的数据:蚂蚁(膜翅目:蚁科)179个形态种67;甲虫(鞘翅目)4科(叶甲科、象甲科、叩甲科和隐翅虫科)397个形态种68;真蝽(半翅目)2亚目(头喙亚目和异翅亚目)301个形态种;蝇(双翅目)2亚目(短角亚目和长角亚目,包括真双翅类)483个形态种69;寄生蜂(膜翅目:“寄生类”)6科(茧蜂科、分盾细蜂科、跳小蜂科、姬小蜂科、缘腹细蜂科和广腹细蜂科)1,012个形态种70;蜘蛛(蛛形目)445个形态种71;以及跳虫(弹尾目)60个形态种72。跨分类群记录的(形态)种保存在http://ecotaxonomy.org数据库和参考文献60,61,62中。
蝙蝠
2015年4月至8月期间,使用雾网和竖琴陷阱对蝙蝠进行了调查。我们使用伸缩铝杆在推测的蝙蝠飞行通道上安装了总长度为48米的雾网,以及两个竖琴陷阱(1.35米×1.75米)。雾网高3米,网眼尺寸为19毫米,根据样地条件安装在地面或高达3米的高度。每个样地在连续两晚的17:30至22:00进行采样,平均采样努力量为1,296 m2雾网小时。我们每15分钟检查一次网和陷阱,直到20:00,之后每30分钟检查一次。竖琴陷阱留在现场直到第二天早上检查。捕获的蝙蝠被放在组织袋中,直到网关闭。然后测量蝙蝠形态,根据最新的苏门答腊蝙蝠物种清单73进行鉴定。我们用指甲油颜色代码标记蝙蝠的指甲以识别重捕个体,随后释放它们。本研究包括20种蝙蝠的数据。在样地HJ3中,没有捕获到个体(总丰度 = 0)。
鸟类
2013年5月至7月,通过样点计数74以及自动录音对鸟类进行采样。样点计数和自动录音持续20分钟,在6:00至10:00之间从每个样地的中心进行。样点计数的时间在清晨和上午晚些时候交替进行,所有样地共访问三次。自动录音机(SM2+,配备两个SMX-II麦克风,Wildlife Acoustics)安装在约2米高度,以44.1 kHz的采样率进行立体声录音,同时跨土地利用类型进行;每个样地使用一次从日出开始的录音。排除对在林冠上方飞行的个体的样点计数检测,并使用Sennheiser ME-66定向麦克风记录不熟悉的鸟鸣。自动录音被上传到ecoSound-web(一个生态声学在线平台75),由两位独立的鸟类学家识别估计35米半径内的所有鸟鸣。只有两位鸟类学家在每个样地的录音中都识别出的鸟类物种被使用,并随后与从样点计数获得的物种列表合并。听觉检测通过Xeno-Canto在线鸟鸣数据库(https://xeno-canto.org/)的交叉检查进行确认。本研究涵盖114种鸟类的数据。对于鸟类,BO1_5数据不可用。因此,当分析需要非缺失值时,通过使用同一景观(即Bukit)内相同土地利用类型的样地平均值进行插补。然而,鸟类的γ多样性值可能被低估。
蝴蝶
2017年旱季的8月至10月期间,在所有32个研究样地中记录了蝴蝶(鳞翅目:凤蝶科、粉蝶科、灰蝶科和蛱蝶科)。使用扫网法在每个样地的三条平行50米样带上采集蝴蝶,两条样带在外边界,第三条穿过中心。扫网在上午(8:00−11:00)进行一次,下午(13:00−16:00)重复一次。除每个采集物种保留两个凭证标本外,所有蝴蝶个体在采样当天傍晚释放。本研究包括基于219种蝴蝶标本的数据76。记录的形态种保存在http://ecotaxonomy.org数据库和参考文献63中。
树木和林下植物
Tropical land-use intensification restructures biodiversity
植物编目于2013年2月至2014年8月期间进行,对大型乔木和维管林下植物采用了不同的采样方案30。每个样地中所有胸径≥10 cm(在1.3 m高度处测量)的乔木均被鉴定。维管林下植物在每个样地的五个5 m × 5 m子样方中进行普查,包括所有植物个体,如陆生植物(草本、灌木、攀援植物和幼树)以及生长至地面以上3 m的附生植物。两次普查(大型乔木和林下植物)中均出现的281个乔木物种。为避免虚增物种丰富度,这些物种仅保留在包含大型乔木的矩阵中。物种鉴定尽可能在野外进行,否则基于野外照片和存放于BIOT、BO、GOET以及Jambi大学和Harapan Rainforest标本馆的腊叶标本进行鉴定(缩写遵循Index Herbarium:http://sweetgum.nybg.org/science/ih/)。分析中使用每个物种在每个样地中的全部个体数。总体而言,本研究包括林下层的443个乔木物种和976个维管植物物种。
凋落物节肢动物(蜘蛛、甲虫和蚂蚁)
从每个研究样地的五个子样方中的三个采集凋落物。在每个子样方中,用粗网(孔径2 cm)筛取1 m2地面的凋落物。从过筛样品中手工采集所有肉眼可见的大型无脊椎动物,保存于65%乙醇中并运送至实验室进行鉴定12。记录的(形态)物种存放于http://ecotaxonomy.org数据库。本研究包括135个蚂蚁形态种、170个甲虫形态种以及来自132个形态种的蜘蛛标本数据。对于凋落物蜘蛛和凋落物甲虫,分别在样地HO2和BO4中未检测到个体(总丰度 = 0)。
蜈蚣
2013年10月至11月期间,从每个样地的三个5 m × 5 m子样方中随机取样(共96个样品)。采样点距离最近的树木或枯木堆积至少2 m。每个样品为16 cm × 16 cm,包括完整的凋落物层及其下方深至5 cm的表层土壤,用铁锹获取。动物通过加热提取并保存于70%乙醇中77。本研究包括12个形态种的数据。在样地BR2中未检测到个体(总丰度 = 0)。
跳虫
样品于2013年10月采集。在每个样地中,随机取一个土芯(16 cm × 16 cm),深至矿质土壤5 cm处。凋落物层和土壤层在野外分离并分别提取。动物通过加热提取5–10天直至基质完全干燥78,收集于二甲基乙二醇–水溶液(1:1)中并保存于70%乙醇中79。本研究包括58个形态种的数据。
中气门螨和甲螨
2013年10月和11月从32个样地中各取三个土芯。土芯(16 cm × 16 cm)从凋落物层及其下方土壤采集至5 cm深度。动物在热梯度下提取78,收集于二甲基乙二醇–水溶液(1:1)中,之后保存于70%乙醇中。土壤螨的鉴定在显微镜玻片上进行至(形态)种水平。记录的(形态)物种存放于http://ecotaxonomy.org数据库。更多细节见参考文献80。本研究包括110个中气门螨形态种和219个甲螨形态种的数据。
真菌
热带土地利用集约化重塑生物多样性
土壤样品于2016年10月和11月采集。在每块样地内的三个子样方(5 m × 5 m)中,各取五个土芯(深15 cm、直径4 cm)并混合,每块样地共得到三份样品。样品经筛分(50 × 50 mm 网孔)后冷冻干燥。DNA提取、测序及OTU的归属已有描述81。数据已存入Dryad数据库82。本研究包含来自12,309个OTU的数据。
有壳变形虫
凋落物和上层矿质土壤样品(深度至50 mm)于2013年10月和11月用直径50 mm的取样器采集。有壳变形虫通过将1 g干重样品经500-µm网孔冲洗、再将滤液反筛过10-µm网孔的方式从样品中提取。更多细节见参考文献83。本研究包含190个有壳变形虫形态种的数据。
原生生物
从每块研究样地采集土壤样品并进行处理(筛分、冷冻干燥和研磨),以提取DNA用于原生生物群落分析84。本研究包含5,204个原生生物OTU的数据。
细菌和古菌
在子样方水平采集土壤样品,提取DNA,并用靶向细菌和古菌16S核糖体RNA基因的引物对生成扩增子,分别用于评估细菌和古菌的群落组成33。本研究包含16,413个细菌OTU和448个古菌扩增子序列变体的数据。对于古菌,HF3数据不可用。因此,当分析需要非缺失值时,采用同一景观内(即Harapan)相同土地利用类型样地的平均值进行插补。然而,古菌的γ多样性值可能被低估。
环境数据
我们考虑24个环境变量,分为4组:微气候、植被、凋落物和土壤(补充表5)。
微气候
在每块样地中心设立气象站,于2013年6月至2014年10月间每小时测量2 m高度处的冠层下空气温度和相对湿度。此外,使用土壤传感器测量0.3 m深度处的土壤温度和湿度(参考文献85)。
植被
2016年9月和10月,利用地面激光扫描在全部32块样地中测量了结构复杂性的不同方面。基于单次扫描方法,我们计算了有效层数(量化垂直分层86)和林分结构复杂性指数87(描述植被对空间三维占据的复杂性)。我们在每块样地内均匀分布地采集了九次单次扫描,并在样地水平上用均值和标准差进行汇总,后者描述植被结构的空间异质性88。此外,在每块样地内32个位置距地面1.2 m处拍摄半球照片,以推算冠层开阔度42。细根产量通过每块样地安装16个生长芯来估算8。
凋落物
地上凋落物量通过每块样地放置16个凋落物收集器(75 cm × 75 cm)来评估。收集器于2013年3月至2014年4月每月清空一次。对于油棕,对修剪的叶片进行计数,并取一个子样品干燥后称重。对于凋落物养分,将全部32块样地凋落物–发酵层的材料分装后在65 °C下干燥72 h,研磨,并使用元素分析仪89(Carlo Erba Instruments)分析总C和N浓度。
土壤
土壤采样于2013年进行。在每个样点50 m × 50 m的区域内,选取十个网格点(包括五个子样地),并采集0–0.1 m表层土壤样品。十个子样地取平均以代表每个样点。土壤生化特征(即pH、土壤有机碳(kg C m−2)、全氮(g N m−2)、15N自然丰度特征(‰ 15N)、有效阳离子交换量(ECEC;mmolc m−2)、盐基饱和度(%)、铝饱和度(%)和可提取磷(g P m−2))在风干并过筛(2 mm)的土壤样品上测定。有机碳和全氮使用CN分析仪(Vario EL Cube, Elementar Analysis Systems)分析,15N通过同位素比质谱法(Delta Plus, Finnigan MAT)测定。ECEC通过用无缓冲的1 mol l−1 NH4Cl渗滤土壤测定,渗滤液中的阳离子(Ca、Mg、K、Na、Al、Fe和Mn)使用电感耦合等离子体原子发射光谱仪(iCAP 6300 Duo VIEW ICP Spectrometer, Thermo Fisher Scientific)测定。盐基饱和度和铝饱和度按ECEC上交换性盐基或铝的百分比计算。可提取磷采用适用于酸性热带土壤的Bray 2法测定。每个样点的土壤物理特征包括容重(g cm−3;环刀法)32,90。2013年每月使用位于每个样地四个子样地上的气室测定土壤呼吸。气体样品使用配有电子捕获检测器和火焰离子化检测器的气相色谱仪(GC 6000 Vega Series2, Carlo Erba Instruments)91分析。
分析
数据清理
物种矩阵。在子样地水平获得的物种观测数据汇总为样地水平观测数据。
环境数据。我们对每组变量进行了主成分分析,变量在需要时进行变换并标准化。我们选择前几个主成分,直到累计解释方差达到80%。这些所选主成分的变量贡献见Extended Data Fig. 7。
景观数据。我们使用根据2016年卫星影像(ref. 92)人工分类的土地利用图,在样地中心周围200 m缓冲区内计算景观指标。我们使用R包landscapemetrics93计算平均森林覆盖率。
生物多样性和多多样性计算
物种出现情况分别针对每个分类群计算。
α-和γ-多样性。我们使用Hill数框架量化多样性,将其表示为有效物种数,其中q0不考虑物种丰度,因此对稀有种更敏感(物种丰富度),q1按物种丰度对物种加权,既不偏向稀有种也不偏向优势种(即常见种的有效数量;Shannon多样性)94。此外,我们使用iNEXT R包95,96计算了24个分类群在样地水平(即α-多样性;Supplementary Figs. 1 and 2)和每个土地利用类型水平(即γ-多样性;Supplementary Fig. 3)的稀疏化–外推曲线。
α-和γ-多维多样性。为评估全部24个分类群的多维多样性,首先,我们采用最小–最大缩放方法对样地或土地利用类型水平上观测到的有效物种数进行归一化,方法如下:y = (x − min(x))/(max(x) − min(x)),其中x为观测到的有效物种数集合。归一化后的有效物种数(y)介于0和1之间,0表示各分类群在样地或土地利用类型中观测到的最低值,1表示最高值。该方法确保所有分类群权重相等,尽管其多样性范围存在差异,是多类群研究中常用的方法1,97。为获得单一的α多样性指数,我们对归一化值取平均——即样地水平上所有分类群的总体多样性(α-多维多样性)。对于γ-多维多样性,我们同样对归一化值取平均——即基于土地利用类型中观测到的最低和最高多样性值。此外,我们分别计算了地上和地下分类群的α-和γ-多维多样性。
β多样性和β-多维多样性。对于每个分类群,我们使用成对相异性矩阵(存在–缺失数据;index family = jaccard;补充图7)计算β多样性。样地间的Jaccard成对相异性(βjacc,总β多样性)计算为βjacc = βjtu + βjne,其中βjtu代表周转,βjne代表嵌套性(以Jaccard相异性的嵌套性结果相异分数衡量),在0到1的归一化尺度上测量。计算使用betapart v1.6包中的beta.pair进行。在数学上,在生物多样性完全丧失的情况下——即检测到零个体——样地的总β多样性为1,因为它们与其他样地不共享物种;在这些情况下,我们假设周转为0,嵌套性为1,考虑到β多样性源于物种丧失;此操作手动实现,因为它不包含在betapart98,99的输出中。我们还使用Sørensen及其组分以及基于丰度的指数Bray–Curtis(对丰度的绝对差异赋予相等权重,因此丰度高的物种对相异性贡献最大)100和Morisita–Horn(偏向常见和优势物种,且对样本量稳健)101计算了β多样性。这些基于丰度的相异性指数使用vegan R包102计算(Bray–Curtis:method = “bray”,binary = F;Morisita–Horn相异性:method = “horn”,binary = F;补充图8)。对于Morisita–Horn,当群落丰度为零时无法计算相异性。因此,对于Morisita–Horn,排除了至少有一个分类群丰度为零的样地(BO4、BR2、HJ3、HO2和HR4)。我们将成对相异性聚合为每个分类群在每个样地的平均成对相异性(24个分类群共n = 32个样地)。为计算β-多维多样性,我们采用最小–最大缩放方法1,97对样地水平的聚合成对相异性进行归一化,即y = (x − min(x))/(max(x) − min(x)),其中x为样地水平的成对相异性集合。归一化后的成对相异性(y)介于0和1之间,0表示各分类群在样地中观测到的最低值,1表示最高值。我们对样地水平上各分类群的归一化β多样性值取平均(包括所有分类群,或仅包括地上和地下分类群)。
土地利用类型对α-和β-多维多样性的影响
我们使用 II 型 ANOVA 检验评估土地利用对 α 和 β 多多样性的影响。此外,我们使用 III 型 ANOVA 评估土地利用、区室(地上和地下)及其交互作用的影响。该分析在 car 包103 中实现。我们使用 Shapiro–Wilk 检验检查残差的正态性,并使用 Levene’s 检验检查方差齐性。进一步,我们使用 Tukey 多重均值比较检验统计上的成对差异,并使用 stats R 包中的 p.adjust 函数(fdr)以错误发现率——即在被拒绝的假设104中错误发现的期望比例——调整 P 值。
与森林相比 α 和 β 多样性的变化
对于每个分类群,我们通过计算对数比值和 95% 调整 bootstrap 置信区间,确定当前土地利用与森林相比在多样性(α 或 β)上的显著差异,如下所示:
其中,‘agricultural land use’ 是农业土地利用中的多样性值,‘\(\overline{\mathrm{forest}}\)’ 是森林中多样性的均值。负值和正值分别表示与森林相比多样性下降和上升。对于 α 多样性,对所有物种计数值添加 1 的伪计数以处理零值,同时对称地保留类计数数据的相对差异——即 \(\log [({\rm{a}}{\rm{g}}{\rm{r}}{\rm{i}}{\rm{c}}{\rm{u}}{\rm{l}}{\rm{t}}{\rm{u}}{\rm{r}}{\rm{a}}{\rm{l}}\,{\rm{l}}{\rm{a}}{\rm{n}}{\rm{d}}\,{\rm{u}}{\rm{s}}{\rm{e}}+1)/(\bar{{\rm{f}}{\rm{o}}{\rm{r}}{\rm{e}}{\rm{s}}{\rm{t}}}+1)]\)。对于周转和嵌套(0–1 缩放数据),零值通过在计算对数比值前加上最小非零值的 50% 来处理105,具体而言,对周转添加 0.0357 的伪计数(最小非零值 = 0.0714),对嵌套添加 0.00256(最小非零值 = 0.0051)。然后,我们使用 10,000 次 bootstrap 重复(R 包 boot106,调整百分位 bootstrap(bca 型))计算对数比值的 95% 置信区间。如果 95% 置信区间不包含零,则表明土地利用与森林之间存在显著差异。由于多样性变化的结果在 q0 和 q1 之间大体一致(补充图 9),我们仅展示 q0 的结果。此外,我们进行 t 检验以评估对数比值与零(以森林为参照)之间的显著差异
两两观测之间的相异性按每个分类群和土地利用类型分别计算。两两 Jaccard 相异性使用 R 包 vegan102,107 中的 vegdist 函数(method = jaccard 和 binary = TRUE)计算。随后,我们计算了每个样点组合在全部类群上的平均两两相异性。接着,我们通过对每个样地组合的平均两两相异性进行非度量多维尺度(NMDS)分析,来可视化群落组成的格局。我们使用 R 包 vegan102,107 中的 envfit 函数将环境向量拟合到相异性排序上。得到的 NMDS 尺度上的样地坐标按土地利用类型分组。此外,我们使用 R 包 vegan102,107 中的 ANOSIM 函数(permutations = 9999)对两两 Jaccard 相异性矩阵进行相似性分析(ANOSIM),以检验不同土地利用类型之间的显著差异。为了检验土地利用是否在生态系统水平上产生影响(包括生物和非生物变量),我们进行了多因子分析。该分析能够识别两个或多个数据矩阵之间的共同结构,而不假设因果关系44,其中典范排序方法是在多变量背景下检验生态关系最有力的方法之一44。为了量化多因子分析中分类群之间的整体相似性(矩阵相关性),我们使用了 RV 系数,其中 0 表示无相似性,1 表示完全相似(Supplementary Table 1)。我们实施这一附加指标以检验结论的稳健性。
Generalized dissimilarity modelling
对每个分类群应用了 GDM 模型。我们使用各自的物种矩阵、为每组环境变量选择的主成分(见“Environmental data”一节)以及地理样地坐标来运行该模型。GDM 的执行使用 gdm R 包108 完成。环境变量(主成分;Extended Data Fig. 7)和距离的贡献通过提取最大样条值来估计(Supplementary Table 3)。变量的显著性检验使用 Monte Carlo 抽样进行,在 gdm.varImp 函数中实现,置换次数为 250(Supplementary Table 2)。所有分析均在 R v4.5.1(ref. 109)中完成。
Reporting summary
有关研究设计的更多信息,请参见与本文关联的 Nature Portfolio Reporting Summary。