 Newshot
主要
岛屿对于研究生物多样性在时间和空间上的格局至关重要1,7。偏远岛屿的隔离性以及有限的定殖机会,促成了进化上独特且高度特有的动植物区系5,8,9。因此,岛屿长期以来一直是宏生态学、进化、群落生态学和物种保护中基本问题的核心10。然而,尽管岛屿具有生态和进化上的重要性,我们对动物类群——尤其是节肢动物——的岛屿定殖、进化和多样化的理解仍存在重大空白。
昆虫是所有动物类群中多样性最高的,但在全球生物地理学研究和保护评估中仍然代表性不足3。这一空白在很大程度上反映了在地理和政治上碎片化的岛屿之间汇编标准化、高分辨率昆虫数据所面临的后勤和分类学挑战,这导致对物种分布的理解不充分11。因此,岛屿生物地理学理论的检验不成比例地集中于脊椎动物(尤其是鸟类)和陆地维管植物,而针对昆虫和其他无脊椎动物的跨多个群岛的系统研究仍然稀少12,13,14(但关于陆生蜗牛见 Proios et al.15)。
确实存在针对其他昆虫类群的值得注意的全球性努力,例如 Global Ant Biodiversity Informatics (GABI) 数据库16,以及由害虫和病原体传播所推动的努力,例如全球蚊虫分布清单17,以及甲虫在岛屿上的入侵格局18。在区域尺度上,鳞翅目也取得了可比进展,包括最近对热带亚洲岛屿蝴蝶生物地理学的大规模分析19。然而,关于岛屿系统中昆虫多样性和特有性的综合性全球汇编——如同植物方面已有的汇编20——几乎不存在。
全世界约有 21,000 个已描述的蜜蜂物种21。它们在全球生态系统中发挥重要作用,为许多野生开花植物22和农作物23传粉。在大陆上,蜜蜂呈现出双峰的纬度多样性分布,丰富度峰值出现在季节性干旱的中纬度地区——这些地区支持地中海气候生态系统(以下简称地中海型生态系统)——以及邻近的沙漠和山地生境2,4,24。这一格局偏离了大多数其他动植物类群的纬度多样性梯度,后者通常在热带达到峰值25。尽管大陆尺度的蜜蜂生物地理学和生态学格局正得到更好的理解,但这些格局如何转化到岛屿系统仍未被充分探索。
迄今为止,关于岛屿蜜蜂生物地理学的概括在性质上仍相当定性。例如,Michener2 指出,虽然非常小的蜜蜂可能被风携带到很远距离,但木巢蜜蜂可能通过浮木跨洋扩散:这一漂流假说得到了定量证据的支持,即木巢蜜蜂在岛屿动物区系中占比过高26。Michener 还提出,某些到达一些最偏远海洋群岛(如夏威夷群岛)的木巢蜜蜂类群是由波利尼西亚航海者携带的。因此,即使是首批欧洲发现航行所采集到的蜜蜂,也不能假定为本地种。
近期系统发育证据表明,若干蜜蜂谱系在晚第三纪(Neogene Period,约2300万至260万年前)通过岛屿跳板的方式殖民了新的生物地理区域,表明踏脚石式扩散可能塑造了蜜蜂的组成。例如,Apidae、Megachilidae 和 Halictidae 科可能通过从亚洲大陆跨越 Indomalayan Archipelago 的迁移而殖民了澳大利亚27。类似的过程也被提出来解释现代中美洲的间断分布,在那里,古老的群岛链在南北美洲连接之前充当了两者之间的踏脚石2。
相反,其他蜜蜂类群中的间断分布模式似乎反映了它们扩散并随后殖民岛屿的能力更为有限。例如,在 Gondwana 解体之后,无刺蜂(Apidae,Meliponini 族)似乎无法跨越所出现的巨大海洋屏障,它们目前在 Indomalaya 的分布可能反映的是海平面波动和短暂陆桥的反复出现,而非长距离越洋扩散28。
这些例子表明,准确记录岛屿蜜蜂多样性对于更完整、更细致地理解全球蜜蜂生物地理学与保护工作具有重要意义。然而,尽管有这一需求,全面的数据仍然稀少。仅有542种蜜蜂被纳入全球 International Union for Conservation of Nature (IUCN) 红色名录的评估,其中仅240种记录于岛屿,68种为岛屿特有种。在这些被评估的物种中,26种被认为受到威胁,且其中许多物种的分布数据无法公开获取29。岛屿类群在全球保护名录中的代表性有限,并未反映出岛屿生物区系早已确立的脆弱性:例如,美国联邦列入濒危物种名录的蜜蜂物种中,大多数是夏威夷本土特有种30。
我们在此呈现一项关于岛屿本土蜜蜂多样性的全球评估。具体而言,我们研究:(1) 本土蜜蜂丰富度与特有性的全球格局;(2) 岛屿特征(面积和隔离度)、地形(海拔)和气候变量对本土蜜蜂丰富度和特有性的影响;(3) 特有性如何随丰富度变化;(4) 岛屿蜜蜂多样性与被子植物丰富度之间的关系。我们预期岛屿蜜蜂丰富度和特有性格局会受到面积和隔离度的塑造,正如岛屿生物地理学理论7所预测的那样,但也会受到生物和气候限制及关联的影响,包括与开花植物的互利共生关系22。
通过解决这些问题,我们的分析填补了知识空白,为研究岛屿蜜蜂的进化与生物地理历史、生态学和脆弱性提供了全球基线,同时突出了在群岛和单岛尺度上未来研究与保护的优先区域。更广泛地说,这一基线使得能够利用这一分类多样、且在生态和经济上重要的类群,对岛屿生物地理学和(元)群落构建1中的主要假说进行严格检验。
蜜蜂在岛屿上的全球分布
我们的最终数据集由 11,065 个独特的岛屿本土蜜蜂物种组合构成,代表 305 个岛屿上的 4,128 个本土物种(该分类的详细信息见方法)(图1a)。因此,在全球已描述的约 21,000 种蜜蜂中,我们的数据表明有 20% 出现在岛屿上。其中,42%(1,742 种)仅局限于岛屿,约占所有已描述蜜蜂物种的 8%。尽管这一比例低于维管植物的报道值——全球植物区系中有 21% 为岛屿特有种,其中 14.5% 为单岛特有种(SIEs)9——也低于陆生哺乳动物(约 12% 为单岛特有种31),特别是啮齿动物(约 17% 为岛屿特有种32),但相对于岛屿在全球范围内约占 5–6% 的全球陆地面积1,它仍然表明岛屿对全球蜜蜂多样性的贡献略高。尽管我们在此关注的是本土蜜蜂丰富度,我们也记录了引入种,以区分真正的本土多样性与非本土物种的累积。我们在 143 个岛屿上识别出至少 54 个引入种,其中西方蜜蜂(Apis mellifera)是迄今为止分布最广的,在我们数据集中被引入到 127 个岛屿(扩展数据表1)。人为驱动因素导致的入侵是岛屿多样性的主要威胁33,并且至少有证据表明,对于 A. mellifera,入侵蜜蜂对岛屿本土生物多样性存在负面影响(例如,见参考文献34)。
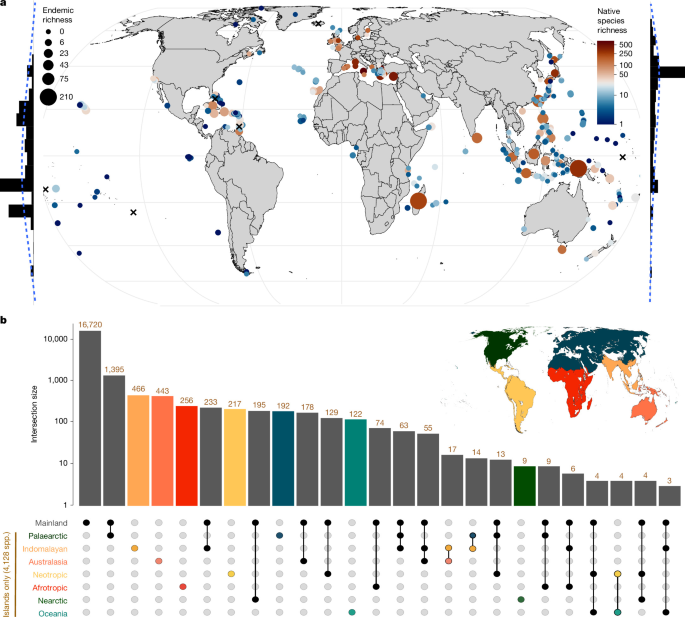
a,岛屿蜜蜂多样性的全球分布图(n = 305 个岛屿)。每个圆圈代表一个有本土蜜蜂物种记录的岛屿。颜色梯度采用对数标度,表示每个岛屿记录的本土蜜蜂物种总数;点或圆圈的大小与每个岛屿发现的特有种总数成正比。特有性以岛屿(或岛屿群;方法)特有种总数衡量。左图:按纬度显示特有种蜜蜂总数量的直方图。右图:按纬度显示岛屿蜜蜂总数量的直方图(纬度步长 5°;本土丰富度最大值 = 3,552 种(35° 至 40° N),特有性最大值 = 298 种(−10° 至 −5° N))。请注意,该格局未控制岛屿数量和大小分布随纬度的变化(但见图2)。标有 X 的岛屿记录的蜜蜂物种仅由非本土物种组成。b,UpSet图显示不同动物地理界62和大陆中岛屿特有种及岛屿间共享种的全球分布。在岛屿上发现的 4,128 个本土蜜蜂物种中,有 1,742 个仅记录于岛屿,占全球蜜蜂多样性中岛屿独有部分的 8.4%。每个柱显示该地理组合独有的物种数。彩色柱和彩色界名表示该界内岛屿特有种的数量。彩色圆圈表示仅岛屿的比较。灰色柱表示跨岛屿各界的或与大陆共享的物种。a中的岛屿底图改编自参考文献63。
文章标题:Global patterns and drivers of bee richness and endemism on islands
正文: 蜜蜂物种丰富度在西部古北界达到峰值,而特有性(仅在这些界的岛屿上发现的物种)在印度马来界(466种)和澳大拉西亚界(443种)岛屿上最高(图1b)。岛屿蜜蜂丰富度在不同生物群系之间也表现出明显差异(图2),但这一格局受到岛屿面积变化的影响。物种丰富度在地中海型生物群系中最高:西西里岛(约25,000 km2,636种)是全球物种丰富度最高的岛屿,塞浦路斯(约9,300 km2,384种)则是海洋性岛屿中物种丰富度最高的。东爱琴海岛屿(约5,000 km2,589种)也拥有丰富的蜜蜂区系,以广泛分布的大陆物种为主,反映了其有限的隔离程度。与高丰富度形成对比的是,这些岛屿的特有性较低,仅有克里特(14种)和塞浦路斯(23种)表现出相对较高的岛屿特有性水平。尽管塞浦路斯靠近黎凡特地区,且其构造抬升的起源复杂,但因其历史上缺乏与大陆的陆桥连接,本文将其视为海洋性岛屿。严格源于火山的地中海型海洋性岛屿中,物种最丰富的是特内里费岛(2,000 km2,57种)。
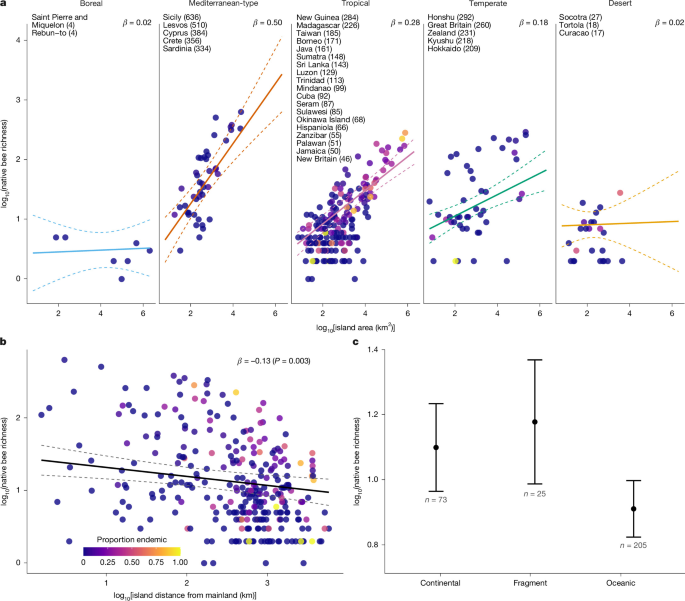
a,各生物群系特异的ISAR。实线表示混合效应模型拟合的平均回归线,虚线表示95%置信区间。每个生物群系报告了斜率(β)。点颜色表示每个岛屿的特有物种比例。标注的岛屿是每个生物群系中物种丰富度前10%的岛屿;括号中的数值显示本地蜜蜂总丰富度。b,岛屿隔离度(到大陆距离的log10)与本地蜜蜂物种丰富度之间的关系。隔离效应使用双侧t检验及Satterthwaite近似评估(β = −0.13,95%置信区间[−0.21, −0.04],t(208.0) = −2.96,P = 0.003)。实线表示混合效应模型拟合的平均回归线,虚线表示95%置信区间。点颜色表示SIE的比例。c,根据完整混合效应模型,按岛屿类型(大陆性、碎片或海洋性)预测的蜜蜂物种丰富度,其他预测变量保持不变(预测值代表中位面积(约445 km2)、中位隔离度(距大陆约605 km)和中位采样覆盖度(样本量调整后为35%,原始中位数为79%)的岛屿)。圆圈和线条表示模型预测均值 ± 95%置信区间,每个类别下方显示岛屿数量。
相比之下,热带岛屿的本地物种总体丰富度中等,与地中海型岛屿相当,但特有性水平明显更高。新几内亚有284种,其中210种(73%)为特有种,使其成为澳大拉西亚界物种最丰富的岛屿。附近的马鲁古群岛(34,000 km2)有102种,包括62个特有种(61%),其中包括塞兰岛(18,000 km2),这是蜜蜂物种最丰富的热带海洋性岛屿(87种)。
在新热带区,Hispaniola 是物种最丰富的海洋性岛屿,共有 66 个物种。在新北区,以海洋性岛屿为主的 California Channel Islands(约 910 km2)总体丰富度较高(154 个物种),但特有化程度较低(5%)。在非洲热带区,Madagascar 尤为突出,有 226 个物种,其中 201 个(89%)为特有种。在仅由海洋性岛屿组成的 Oceania 内,Hawaiian islands(17,000 km2)是主要热点,全部 65 种原生野生蜂均属于 Hylaeus(Nesoprosopis)的一个单一谱系,且为该群岛特有6。在其他海洋性岛系中,地中海气候的 Canary Islands(约 5,400 km2)拥有同样多的特有物种(128 个物种中有 57 个),尽管其群岛特有化比例(AE)较低(45%)。
全球范围内,岛屿上的蜂类丰富度在北半球中纬度达到峰值(图 1a),这与在大陆上观察到的蜂类丰富度中纬度峰值相一致4。这一模式与其他多样性丰富的昆虫类群(如蚂蚁,其全球丰富度主要在热带达到峰值35)所呈现的纬度多样性梯度形成对比。缺乏与大陆2,4所发现的可比的岛屿特有双峰多样性模式,可能是南半球地中海型岛屿数量有限的结果。这种不对称反映了全球岛屿的真实分布36,而不仅仅是采样偏差;我们的全球数据集证实了这些区域的数据可获得性和足够的覆盖度(图 3)。这一模式在大陆性岛屿和海洋性岛屿上均出现,尽管地中海型生物群系内许多较大的岛屿在大陆性或成因上较为复杂。此类环境通过进化历史与生态条件的共同作用,有利于形成多样的野生蜂群落。蜂类被认为起源于 West Gondwana 的干旱环境2,27,那里降雨有限但可预测,从而产生短暂而强烈的开花期以及开阔生境中较高的开花植物多样性2,4,37。这些条件促进了蜂类活动期与花卉资源之间的时间同步,推动了特化程度和资源分配的增强,从而减少竞争。这种同步促进了本地物种形成,进而提高了丰富度,使这些区域得以突破传统的纬度多样性梯度2。我们的全球结果支持这些结论,但仍需针对岛屿上蜂类生境与食性特化的生物群系特异性模式开展基于性状的研究,以直接检验这些论断。
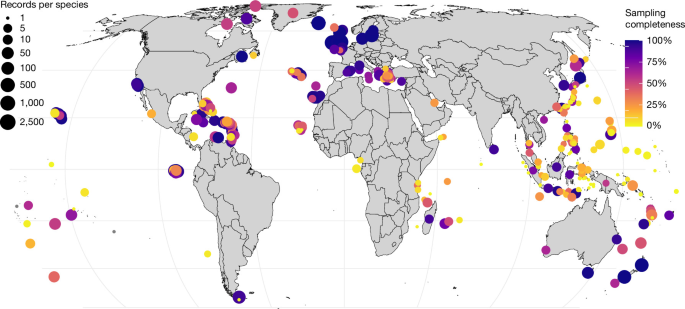
地图展示了全球岛屿蜜蜂采样投入与完整性的地理分布。圆圈大小表示每个岛屿上每种物种平均采集到的个体记录数(标本或观察记录;见方法“岛屿蜜蜂出现记录与全球名录”),圆圈越大表示采样投入越高。圆圈颜色表示采样完整性,以样本量调整后的样本覆盖率衡量(范围从 0%(黄色)到 100%(紫色))。该指数将 Chao–Jost 样本覆盖率64 与按采样投入加权相结合,权重基于出现记录总数。深紫色且点较大的岛屿代表采样良好、丰富度估计置信度高的区域。黄色和橙色点代表采样不足的岛屿,其真实多样性很可能被低估。覆盖率使用所有记录构成的物种/岛屿丰度矩阵(每个岛屿每种物种的所有出现记录计数)计算,以估计每个岛屿中属于已观测物种的个体占全部个体的比例,所用非参数估计量考虑了稀有种(单次记录种和双次记录种)的频率。由于覆盖率会随样本量变化(例如,基于极少数记录时可能显得很高),我们还应用了样本量调整,按出现记录总数对覆盖率进行缩放。n = 303 个岛屿。岛屿底图改编自参考文献 63。
岛屿蜜蜂丰富度的预测因子
为了检验 MacArthur 和 Wilson 的岛屿生物地理学理论7 中关于蜜蜂多样性的基本方面,我们使用了以群岛身份为随机效应的混合效应模型。最终最佳模型基于样本量校正的赤池信息准则(AICc)选出,包含经 log10 转换的岛屿面积(km2)及其与生物群系的交互作用,以及隔离度(经 log10 转换的至大陆本土距离,km)作为固定效应。该模型通过固定效应(面积、隔离度、岛屿类型和生物群系)解释了物种丰富度 66% 的方差,纳入群岛身份后解释 75% 的方差(条件 R2)。R2 值的这一中等差异表明,本地丰富度强烈受宏观生物地理变量支配,并存在一些未解释的区域结构。
岛屿面积对本地蜜蜂丰富度表现出一致的正向效应,但岛屿物种–面积关系(ISAR)斜率在不同生物群系间差异显著(图 2a 和补充表 1)。地中海型生物群系表现出最强的物种–面积响应(β = 0.50),显著陡于所有其他生物群系(补充表 2)。热带岛屿表现出中等效应(β = 0.28),与温带岛屿(β = 0.18)无法区分。相比之下,荒漠(β = 0.02)和寒温带(β = 0.02)岛屿的斜率更平缓,表明在这些生物群系中岛屿大小不是蜜蜂多样性的主要限制因素。生物群系对物种–面积斜率的影响在海洋岛上观察得更清楚(扩展数据图 1 和补充表 3),具体而言,地中海型岛屿的 ISAR 斜率显著大于其他岛屿。大陆岛则并非如此,这些 ISAR 斜率差异远不明显(扩展数据图 2 和补充表 3)。
岛屿上蜜蜂丰富度和特有性的全球格局与驱动因素
物种丰富度随岛屿隔离度增加而下降(β = −0.13,P < 0.003)(图2b和补充表1),相当于与大陆距离每增加十倍,物种丰富度约减少15%。这种隔离效应在所有生物群系中是一致的,支持了这样一个基本原理:偏远岛屿接收到的殖民者更少,因而按其面积维持较低的丰富度7。我们还观察到岛屿类型对丰富度有明确影响。大洋岛支持的物种数显著少于大陆岛(β = −0.19,P = 0.01)和碎片岛(β = −0.27,P = 0.01;补充表2),这与它们过去缺乏与大陆的陆地连接、历史物种库更有限以及地质年龄通常更年轻相一致;而很高比例的大陆架岛仅在几千年前还与大陆相连,从而形成更“和谐”的生物区系1。替代模型(ΔAICc < 2)还包含与温度季节性和年降水量的正相关关系。这两个气候变量均无统计学显著效应(补充表4)。
我们的结果支持这一结论:ISARs可随岛屿地质环境属性而显著变化12,38。具体而言,蜜蜂可能受益于地中海型生物群系中生物群系特有的生态复杂性增加,这是由于栖息地可获得性的时间差异,这种差异即使在较小尺度上也能允许丰富度增加,从而导致面积对丰富度的影响比在热带或温带生物群系中更强2,4。我们的模型中地中海型岛屿具有最陡的ISAR斜率和最高的丰富度值,这一发现与地中海气候特有的气候高季节性和开花植物多样性相一致39,全年提供多样的巢址和花卉资源。
尽管生物群系解释了岛屿上丰富度的相当大变异,但它们只是气候和栖息地多样性的宽泛替代指标。地中海型系统的陡峭ISAR斜率表明,明确测量更细尺度的变量,如资源可获得性和微栖息地多样性,可能为岛屿蜜蜂生物地理学背后的机制提供更深入见解。栖息地多样性和环境异质性,以及可能相关联的互利共生伙伴多样性,可以构成物种丰富度的重要预测因子40。在我们的全球模型中,当通过结合面积和生物群系在岛屿之间进行比较时,这些因素很可能被隐含地纳入。然而,单一生物群系分类会掩盖岛屿内部变异;对于许多海拔范围大的大岛屿,如马达加斯加、特内里费、新几内亚或夏威夷(大岛),将岛屿表示为单一生物群系不可避免地低估其显著的环境异质性,而环境异质性被认为是高物种多样性和特有性的驱动因素40。此外,区域地理背景是一个重要考虑因素,正如莱斯沃斯岛和塞浦路斯岛所示,它们相对于其面积表现出较高的物种丰富度值(来自地中海型ISAR的正残差;在地中海型岛屿中排名前5%)。这些岛屿位于欧洲蜜蜂区系与异常丰富的西亚区系之间的边界,因而其面积所对应的较高比较物种丰富度可能源于蜜蜂可从中定殖的双重物种库41。
采样强度在不同地区之间并不均衡,正如全球数据集所预期的那样(图 3),大洋洲、印度马来亚和澳大拉西亚的部分地区采样相对不足。为考虑这种异质性,我们将采样完整性作为固定效应纳入本地丰富度模型(补充表 1),其衡量方式为属于已观察物种的个体比例并按样本量加权。完整性对本地蜜蜂丰富度有正向影响(β = 0.21,P < 0.001;扩展数据图 3)。采样完整性更高的岛屿往往具有更高的估计丰富度。然而,控制采样完整性并未削弱上述核心结果。在调整采样完整性后,岛屿–生物群系–面积效应仍然很强,证实这些模式并非采样强度不均的结果。这表明面积、隔离度与丰富度之间的关系,特别是中纬度丰富度与热带高特有性之间的对比,反映了真实的生态差异(图 3)。未来对博物馆藏品42,43进行数字化并提供开放获取、对历史上难以采样的岛屿2,44开展有针对性的考察,以及利用 iNaturalist45 等公民科学平台,对于解决岛屿蜜蜂多样性的知识空白至关重要;鉴于全球蜜蜂多样性的预计缺口46,这是一项重要任务。
岛屿蜜蜂特有性的预测因子
为识别特有性的生物地理和气候预测因子,并评估丰富度能否解释特有性模式,我们测试了与本地丰富度相同的线性混合效应模型(图 4a,b)。在能够支持 SIE 的岛屿中(SIE ≥ 1,n = 113),面积与 SIE 丰富度增加相关(图 4a 和补充表 5),并且这种关系随生物群系显著变化,正如在丰富度中观察到的那样。然而,与丰富度不同,SIE 的生物群系特定面积斜率在热带和温带岛屿之间差异显著,热带岛屿的关系更陡峭(Δ = 0.27,P = 0.01),而热带与地中海型岛屿之间的差异处于边缘显著水平(Δ = 0.28,P = 0.06;图 4a 和补充表 6)。隔离度(到最近大于 1,000 km2 的陆地的距离,经 log10 转换)仅具有微弱且不显著的正向影响(β = 0.09,P = 0.11;图 4a,b)。温度季节性对 SIE 有显著正向影响(β = 0.28,P = 0.018),采样完整性和海拔范围分别在 ΔAICc < 2 内的替代模型中表现为显著正向预测因子(补充表 7)。我们注意到,采样完整性可能从两个方向使特有性估计产生偏差:在研究充分的岛屿上高估特有性,因为同一物种尚未在其他地方记录到;而在未发现的特有物种仍然存在的地方低估特有性。
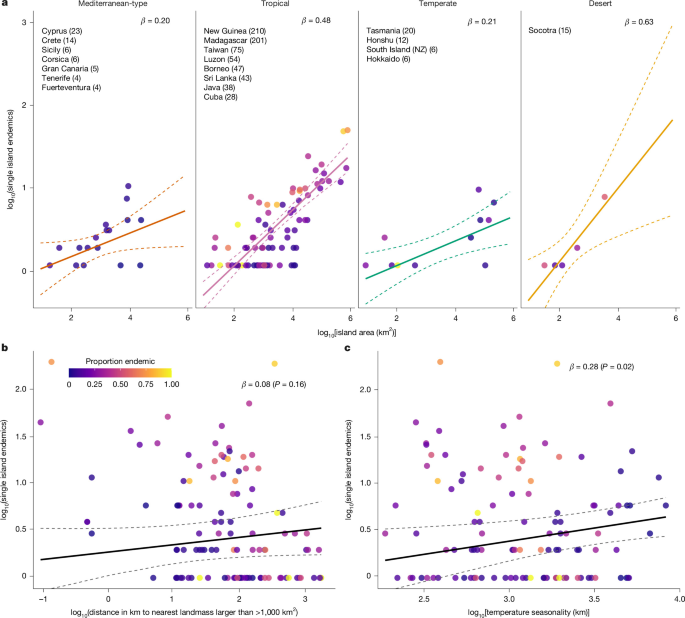
a,岛屿面积与 SIE 物种丰富度之间的生物群系特异性关系。各生物群系的斜率(β)已报告。实线表示混合效应模型拟合的平均回归线,虚线表示 95% 置信区间。点的颜色表示每个岛屿特有种的比例。标注的岛屿是每个生物群系内 SIE 物种丰富度最高的前 10% 岛屿(括号中的数值表示 SIE 数量;最少 4 个物种)。b,岛屿隔离度与 SIE 丰富度之间的关系。实线表示混合效应模型拟合的平均回归线,虚线表示 95% 置信区间。隔离度的效应采用 Satterthwaite 近似的双侧 t 检验评估(β = 0.08,95% 置信区间 [−0.03, 0.19],t(113) = 1.41,P = 0.16)。实线表示混合效应模型拟合的平均回归线,虚线表示 95% 置信区间。圆点颜色同 a。c,温度季节性与 SIE 丰富度之间的关系。实线表示混合效应模型拟合的平均回归线,虚线表示 95% 置信区间。温度季节性的效应采用 Satterthwaite 近似的双侧 t 检验评估(β = 0.28,95% 置信区间 [0.05, 0.52],t(113) = 2.40,P = 0.02)。实线表示混合效应模型拟合的平均回归线,虚线表示 95% 置信区间。圆点颜色同 a。n = 113 个岛屿。NZ,新西兰。
观察到的模式在各个数据子集中一致,但不存在面积与生物群系的交互作用。在拥有特有物种的海洋性岛屿(n = 69)上,面积仍是最强的预测因子(β = 0.32,P < 0.001,R2 = 0.38;扩展数据图 4 和补充表 5)。在 SIE 丰富的岛屿(>5% 的原生丰富度;n = 96)中,SIE 丰富度随面积增加(β = 0.36,P < 0.001,R2 = 0.66),并随采样完整性边际增加(β = 0.16,P = 0.02)(扩展数据图 4 和补充表 5)。这些结果与岛屿维管植物特有性的全球模式47相似。主要在北半球岛屿上出现的蜜蜂物种丰富度2的中纬度峰值,并未转化为蜜蜂特有性的增加。相反,蜜蜂特有性在热带最高(扩展数据图 5)。AE 的模式大体相似。在拥有 AE 的岛屿(n = 217)中,面积再次是主要预测因子,并与生物群系发生交互作用(补充表 5)。然而,AE 与面积的斜率在热带、温带和地中海型生物群系中一致,只有沙漠岛屿显示出显著低于热带岛屿的速率(Δ = 0.35,P = 0.01;补充表 6)。隔离度(距大陆的距离)不显著(β = −0.04,P = 0.48),采样完整性也作为一个显著效应纳入,表明 AE 数量多的岛屿也是研究得最充分的岛屿(β = 0.14,P = 0.01)。此外,海拔具有显著正效应(β = 0.18,P = 0.01),表明地形复杂的岛屿在群岛尺度上支持更高的特有物种多样性(扩展数据图 6)。
仅用岛屿本地物种总丰富度预测 SIE 的模型显示出明显相关性(R2 = 0.44),并且纳入生物群系后显著改善(ΔR2 = 0.15,χ2 = 33.1,P < 0.001;补充表 8)。尽管加入交互项使模型显著改善(ΔR2 = 0.02,χ2 = 8.15,P = 0.04),但事后两两比较显示,经多重检验校正后,各生物群系之间的斜率无显著差异(补充表 8)。这表明,SIE 随丰富度增加的全球速率实际上是一致的,但基线存在明显差异;具体而言,地中海型岛屿的基线 SIE 显著少于其他所有生物群系(扩展数据图 7)。相反,对于 AE(R2 = 0.55),完整交互模型给出最佳拟合(ΔR2 = 0.14,χ2 = 72.54,P < 0.001;扩展数据图 7 和补充表 8),表明特有物种随丰富度增加的累积速率依赖于生物群系。两两比较表明,地中海型生物群系的斜率(0.42 ± 0.10)显著平缓于沙漠(0.83 ± 0.12,P = 0.02)、热带(0.96 ± 0.03,P < 0.001)和温带(0.75 ± 0.06,P = 0.01)生物群系,表明丰富度与 AE 之间存在部分解耦(补充表 9)。尽管在整个丰富度梯度上,地中海型岛屿的 AE 通常少于预期,但 Canary Islands 是一个例外,其 AE 丰富度高,与其总体丰富度高相一致,不过这可能因其与主要地中海来源库相对隔离而增强(扩展数据图 6)。这一背离还凸显出,与 SIE 模型相比,AE 模型可能捕捉到更古老的多样化过程48,49。这种部分解耦与维管植物形成对比:在维管植物中,最丰富的岛屿往往也拥有最多的特有物种,尤其是在大型热带岛屿的情况下9。我们的结果与先前的宏观生态学研究50一致,表明丰富度与特有性之间的关系并不简单,并因类群而异。
综合来看,这些发现表明,蜜蜂特有性集中于大型热带岛屿和某些海洋性群岛,而不是全球物种丰富度最高的地区。New Guinea 和 Madagascar 尤为突出,既拥有大量特有种,也拥有高比例的特有种。相比之下,包括加勒比、菲律宾和夏威夷群岛在内的某些其他岛屿系统,仅以高比例的特有种为特征。丰富度格局与特有性格局之间的这种明显分化表明,塑造岛屿物种组装的定殖因素与进化多样化因素之间存在区别。湿润的热带条件,加上许多海洋性热带岛屿更强的隔离,对蜜蜂定殖2构成环境障碍。因此,成功定殖者获得了更大的生态机会,这可能导致高水平的原位多样化1。这些格局提示了不同的进化历史:Madagascar 的高特有性可能反映了多次独立辐射51,而在其他系统中,单一辐射造就了高比例的特有性,例如 New Guinea 的 Palaeorhiza52、夏威夷群岛的 Hylaeus (Nesoprosopis)6,以及 Samoa 和 Fiji 等太平洋岛屿上的 Lasioglossum (Homalictus)53,54。相反,支持地中海型岛屿高丰富度的因素可能包括:(1)对干旱环境的适应;但也包括(2)来自附近大陆源池的频繁迁入,提供足够的基因流以抑制原位多样化,从而导致较低的特有性55。在全球范围内,蜜蜂提供了证据,表明特有性以及进而的灭绝风险并非与总体物种丰富度密不可分地联系在一起,而常常分化到高特有性但低丰富度或高丰富度但低特有性的地区56。
蜜蜂丰富度与被子植物丰富度
在这些发现的基础上,我们进一步考察植物多样性作为潜在生物驱动因子如何与蜜蜂丰富度协变,因为蜜蜂在食物和筑巢资源上强烈依赖开花植物22,24。在我们同时拥有被子植物丰富度数据和原生蜜蜂丰富度的175个岛屿中,我们观察到正相关:仅被子植物丰富度就解释了岛屿间蜜蜂丰富度变异的49%(R2 = 0.49),该关系在考虑岛屿面积和隔离度后仍然存在(β = 0.64,P < 0.001;图 5a 和补充表 10)。被子植物与蜜蜂丰富度之间关系的斜率在各生物群系间基本一致(似然比检验:χ2 = 7.02,P = 0.06)。然而,与热带基线相比,温带岛屿的关系略陡(β = 0.55,P = 0.015;图 5a 和补充表 10)。此外,我们观察到地中海型岛屿在所能支持的蜜蜂总丰富度方面与基线存在差异:在植物丰富度、面积和隔离度相当的情况下,它们支持的蜜蜂物种数是热带岛屿的5.6倍(P < 0.001;图 5b 和补充表 11)。
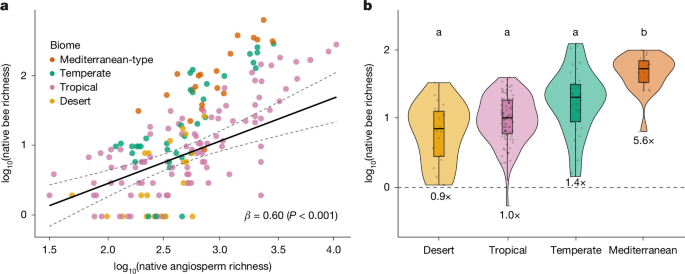
a,在考虑岛屿面积和隔离度后,原生被子植物丰富度与原生蜂类物种丰富度之间的关系(n = 175 个岛屿)。数据点按生物群系着色(荒漠、热带、温带和地中海型;boreal 岛屿因样本量小(n = 3 个岛屿)而被排除)。实线表示包含被子植物丰富度和生物群系的混合效应模型拟合的平均回归,其中群岛作为随机截距,虚线表示 95% 置信区间。原生被子植物丰富度使用双侧 t 检验评估,自由度采用 Satterthwaite 近似(β = 0.60,95% 置信区间 [0.36, 0.84],t(126) = 5.00,P = 1.89 × 10⁻⁶)。b,每个岛屿(n = 175 个岛屿)的蜂类物种丰富度已校正至全球平均被子植物丰富度、面积和隔离度。小提琴图显示各生物群系内校正后丰富度的分布(按中位数递增排序),并叠加箱线图和单个岛屿(抖动点)。叠加的箱线图表示中位数(中心线)以及第 25 和第 75 百分位数(箱体边界,四分位距);须线延伸至 1.5× 四分位距范围内的最小值和最大值。字母表示基于估计边际均值的双侧事后成对比较而存在显著差异的组(错误发现率(FDR)校正,P < 0.05)。箱线图下方的数值显示校正后蜂类丰富度相对于热带岛屿的估计倍数变化(补充表 10)。
被子植物丰富度与蜂类丰富度之间的关系可能反映了共享生物地理驱动因素(如面积和气候)以及生态依赖性的共同作用,尽管此处无法区分这些因素的贡献。然而,在被子植物丰富度相当的情况下,地中海型岛屿的基线蜂类丰富度明显更高,这与温度季节性促进蜂类特化的假说一致57。季节性气候可通过时间上的资源分配促进蜂类特化,而常年湿润的热带系统尽管植物丰富度更高,却可能形成限制蜂类多样性的生态过滤器。因此,获取关于野生蜂类与原生植物形成的复杂网络及其如何随岛屿隔离度和定殖事件减少而变化的更详细信息,对于开发更完整的岛屿生物多样性模型至关重要58,59(综述见参考文献 1)。然而,近期证据强调,当蜂类丰富度相对较低时,开花植物群落可能依赖蜂类传粉者60。因此,对于生物群系、隔离度和面积不同的岛屿,我们不应期望植物丰富度与蜂类丰富度之间存在简单且可预测的关系。
结论与未来研究
岛屿蜜蜂丰富度和特有性的全球格局与驱动因素
我们的研究表明,岛屿占全球蜜蜂多样性的很大一部分,包括许多在岛屿上演化且特有的物种。我们发现物种丰富度和特有性部分脱节,凸显这两个指标捕捉了岛屿蜜蜂多样性的不同方面。丰富度在北半球中纬度地中海型岛屿达到峰值,而特有性峰值出现在大型热带岛屿,这些差异在海洋岛屿上最强。这些格局进一步得到被子植物与蜜蜂丰富度之间依赖生物群系的关系的支持,表明尽管花卉丰富度是跨岛屿蜜蜂多样性的强预测因子,但它不能完全解释各生物群系之间观察到的蜜蜂丰富度差异。只有小部分岛屿蜜蜂物种已评估灭绝风险29,30,而且这一风险可能与进化独特性相关,而非丰富度55。因此,我们的结果表明,保护岛屿蜜蜂需要优先考虑具有独特进化历史的区域,从马达加斯加等大型大陆碎片到夏威夷群岛等偏远海洋群岛,而非仅考虑物种丰富度。
蜜蜂特别适合作为研究岛屿生物地理动态的模型分类群。它们是关键传粉者,与植物繁殖和生态系统功能密切相关22,并代表一个分类上离散的类群,其分布和系统发育数据日益可得。然而,在理解定殖和物种形成格局背后的机制以及新发现的潜力方面,仍有很多有待探索。分子系统发育数据日益可得,为研究蜜蜂进化历史开辟了新研究途径27。结合详细的分布和性状数据61,这些资源使得重建岛屿上的定殖、灭绝和物种形成历史格局成为可能。以此处建立的基线为基础,我们为更广泛地理解岛屿昆虫多样性的定殖、多样化和脆弱性奠定了基础。
方法
岛屿蜜蜂全球名录
我们根据 Discover Life(https://www.discoverlife.org/)上可用的信息以及更详细和最近更新的信息,验证了蜜蜂在岛上的存在,特别是从该资源的源文件21中提取的模式产地和采集事件数据。这些经过专家审核的列表按岛屿记录进行了筛选,并与空间数据结合,以使物种存在与岛屿标识符对齐。Discover Life 上的名录数据来自多种来源,包括分类学修订、原始物种描述(包括异名)、经过验证的人类观察以及未数字化的博物馆记录。为避免历史边界变化带来的复杂问题,物种记录在当前州或国家层面进行。数据以国家层面的矩阵形式在线提供,并在更精细的地理尺度上提供物种特定细节。有关名录来源的更多细节,见参考文献4。对于未明确关联到特定国家或州/省的岛屿,使用额外来源基于更广泛的政治区域来确认物种存在。然后,我们将标本与已发表文献中针对岛屿的动物区系名录进行交叉核对;例如,当某个物种仅已知于一个群岛时,我们试图确定其在群岛内特定岛屿上的存在。这些研究包括来自 Socotra Archipelago65 的 Abd al Kuri 和 Socotra、Azores 包括 Corvo、Faial、Flores、Graciosa、Pico、Santa Maria、São Jorge、São Miguel 和 Terceira66、Balearic Islands 包括 Ibiza、Mallorca 和 Menorca67、Bonaire68、Cabo Verde 包括 Boa Vista、Brava、Sal、Santiago、Santo Antão、São Nicolau 和 São Vicente69、Cuba 和 East Grand Bahama70、Fiji52,71、Isla de Juventud72、Juan Fernández Islands73、Madeira Archipelago 包括 Madeira、Porto Santo 和 Deserto Grande 以及 Selvagens Islands 包括 Selvagem Grande74 和 Madagascar75,76。欧洲岛屿名录提取自 Reverte 等人77 的欧洲物种最新名录,包括 Åland islands、Great Britain、Ireland、Iceland、Faroe Islands、Malta、Corsica、Sardinia、Sicily、Crete、Cyprus 和 Isle of Man。我们还纳入了来自初始名录的所有岛屿的经过验证(Research Grade)iNaturalist 记录(截至2024年12月)。尽管这些条目提供了有价值的数据,但仍存在一定程度的分类学疑问,因此,在最终数据集中它们被标记为不确定,待进一步验证。希腊岛屿 Corfu 和 Rhodes 的名录通过来自 Rhodes78,79、Corfu80 以及 T. J. Wood 个人收藏的记录进行了扩展。还添加了 Corsica 和 Sardinia 的最近新增记录81,以及 Canary Islands 的最新名录82。最后,由于最近对 Parasphecodes 亚属的分类学工作83,Tasmania 的蜜蜂区系进行了显著调整。名称使用 Orr 等人4 和 Dorey 等人84 的异名列表进行了清理。在某些情况下,无法将群岛级数据分离为岛屿记录,因此一些群岛被保留在数据集中(例如,Solomon Islands)。
为了对非本地物种进行分类并计算最终的岛屿本地物种丰富度,我们使用 Russo85 作为基线,并辅以现有的名录信息和 J.S.A. 的专家意见。利用这些名录,我们计算了岛屿上野生蜜蜂丰富度和特有性的三项指标。它们包括:(1)本地物种丰富度,计算为每个岛屿(或群岛,视情况而定)名录中包含的独特本地物种总数;(2)单岛特有性,计算为名录中仅已知于该岛屿的物种总数;(3)AE,计算为仅在该群岛发现的物种总数:这包括所有 SIEs。
岛屿的空间信息和岛屿选择
利用上述清单,我们通过将清单中的名称与 Sayre et al.63 的全球岛屿数据库(面积大于 1 km2)中的名称进行匹配,提取了一个空间显式的岛屿数据库。我们提取了所有有野生蜜蜂清单信息的岛屿的矢量 shapefile。大多数情况下,我们努力将每份清单与单个岛屿实体关联。在蜜蜂数据库中的单个名称与多个陆块关联的情况下,我们提取所有陆块用于后续计算(例如,Sao Tome and Principe、Saint Vincent and Grenadines、Wallis and Futuna、Antigua and Barbuda、Saint Pierre and Miquelon、Saint Kitts and Nevis 和 Solomon Islands)。重复的岛屿名称和空间不匹配经过人工检查。此后,我们将岛屿名称与 Global Inventory of Floras and Traits (GIFT) 数据库中包含的岛屿进行统一,并从 GIFT 提取岛屿面积、隔离度(与大陆的距离)、岛屿类别(海洋岛、碎片岛或大陆岛)、群岛和被子植物丰富度信息(更多细节见参考文献 20)。GIFT 数据库中的岛屿按地质起源分为海洋岛(火山岛和环礁)、大陆架(陆桥)和复杂起源/大陆碎片。将岛屿划分为三种离散类型是一种必要的简化。某些情况,例如 Cyprus 的构造抬升,或 Rhodes、New Caledonia 和 Seram 等曾经历完全淹没时期的大陆碎片,代表了中间状态,其中生物隔离优先于严格的地质起源。具体而言,缺乏历史陆桥连接被用来将岛屿归类为海洋型。在最终 305 个岛屿中,有 207 个海洋岛、25 个碎片岛和 73 个大陆岛(按生物群系的完整分类见 Supplementary Table 12)。
350,707 种维管植物在 1,967 个岛屿和 1,010 个大陆区域的物种分布数据取自 Schrader et al.9,然后与我们拥有蜜蜂物种清单的岛屿关联。这些数据最初使用 R package GIFT86 从 GIFT v.3.2 数据库获取,并根据 World Checklist of Vascular Plants9,20 进行了分类学标准化。在少数情况下,我们拥有的岛屿或群岛蜜蜂清单数据与 GIFT 数据库中的岛屿或群岛不对应——例如,数据在一个数据库中按群岛层面汇总而在另一个数据库中没有——我们直接从上述岛屿空间地图63计算面积和隔离度,并使用岛屿特定文献确定岛屿类别和群岛。
我们将岛屿 shapefile 与全球生态区空间 shapefile62 叠加,纳入了额外的岛屿级环境信息;该数据集是 Olson 等87 原始 WWF 生物地理区划的更新版。该数据集提供了陆地生态区、生物群系和生物地理界的全球标准化分类,之所以选择它,是因为它提供了基于 GIS 的一致边界,并明确包括海洋岛屿,使得仅基于空间重叠即可可重复地分配岛屿。尽管它是作为一般陆地生物多样性分类而非针对特定类群开发的,但定义这些界的潜在气候、植物区系和演化间断预计也与蜜蜂相关,因为蜜蜂的分布与植被结构和气候状况密切相关。使用 R 包 sf(v1.0-2188)中的 intersect 函数,将每个岛屿分配到陆地生物群系和生物地理界。为便于比较,生物群系分类被聚合为更广泛的类别(北方、荒漠、地中海、温带和热带)(补充表 13),最终选定的生物群系为岛屿上发现的优势生物群系。界分类为非洲热带界、澳新界、印度马来界、新北界、新热带界、大洋洲界和古北界之一。这为各岛屿提供了一致的生态背景,并便于按生物群系类型和界分析本地蜜蜂丰富度。
我们还计算了额外的隔离指标:通过计算每个研究岛屿到最近陆块的边到边距离(km),覆盖三个大小类别(>1 km2、>1,000 km2 和 >10,000 km2),以及每个岛屿周围 10 km、100 km 和 1,000 km 缓冲区内累计周边陆地面积(km2)。为此,我们将全球岛屿数据库与来自 rnaturalearth v1.0.189 的全球大陆图层合并。在模型拟合前,我们检验了所有隔离变量之间的相关性(r > 0.7)(补充图 1)。在最终用于模型选择的变量集中,我们选择到最近 >1,000 km2 陆块的距离和 10 km 缓冲区内总陆地面积来代表隔离,同时保留到大陆的距离(km)。气候数据提取自 CHELSA v2.190 的生物气候栅格,分辨率为 30 角秒。变量包括年平均温度(BIO1)、温度季节性(BIO4;定义为月平均温度的标准差乘以 100)、年降水量(BIO12)和降水季节性(BIO15;定义为月降水量的变异系数)。使用 elevatr 包(v0.99.1)91 提取每个岛屿的局部海拔指标。气候变量按每个岛屿取平均值,海拔记录为每个岛屿的海拔范围。
为确保可比性以及生态和生物地理相关性,我们将最终数据集限制为面积至少 5 km2 且距离大陆至少 1 km 的岛屿。这些阈值有助于去除具有强边缘效应和栖息地异质性有限的岛屿,同时确保与大陆之间具有有意义的生物地理间断。
岛屿蜜蜂出现记录与全球名录
为了探索岛屿上蜜蜂采样的全球格局,我们使用 Dorey et al.84 中概述的 BeeBDC 协议提取岛屿上蜜蜂的所有全球记录。具体而言,我们从 Global Biodiversity Information Facility92、Atlas of Living Australia93 和 iDigBio 下载了 Anthophila 的所有记录。我们如上使用 Dorey et al.84 和 Orr et al.4 的同物异名列表校正了同物异名。作为清理过程的一部分,数据被取子集,仅包含岛屿名录数据集中发现的物种名称,从而确保剔除那些不太可能出现在该岛屿上的有效种的错误记录。为了在空间上将蜜蜂出现记录与岛屿关联,我们将所有坐标重新投影以匹配岛屿 shapefile,并执行空间连接,仅保留与名录数据集中定义的岛屿多边形相交的记录。为确保出现数据和名录数据之间的一致性,将岛屿名录中列出的所有物种作为补充记录添加到公共数据库,从而统一不同来源的物种丰富度值。最终数据集包含 663,189 条地理参考记录,随后用于评估分析中所包含岛屿的采样努力度和空间覆盖度。该数据集用于计算采样努力度和采样完整性的替代指标。为了衡量采样完整性,我们通过 iNEXT3D R 包(v1.08)94 中的 coverage 函数,使用 Chao & Jost64 方法计算了各岛屿的采样覆盖度。我们使用所有记录的物种/岛屿丰度(每个岛屿每个物种的所有出现次数)矩阵,通过一种考虑稀有物种(单次出现种和双次出现种)频率的非参数估计器,估计每个岛屿中属于已观测物种的个体数占总个体数的比例。为了考虑采样努力度的巨大差异,我们还根据出现记录总数对覆盖度进行加权,以下称为样本量校正的采样完整性度量。
我们通过 BeeBDC 工具84 使用 Discover Life 全球名录,作为全球蜜蜂物种丰富度的基线来源。为了生成仅大陆物种丰富度的估计值,我们通过与上述名录比较,并从全球名录中移除所有岛屿级记录,排除了所有已知出现在岛屿上的物种。全球名录还用于补充特有性和岛屿仅有种数据,方法是从名录中筛选出仅在岛屿上记录的物种,并与岛屿数据集交叉核对。大陆名录还用于检验岛屿出现格局,以将所有物种划分为在岛屿上出现或不出现两类。
原生蜜蜂丰富度的预测因子
我们使用岛屿级名录来检验岛屿上物种丰富度的关键预测因子。我们使用 lme4 R 包(v1.1-37)95 中的 lmer 函数拟合线性混合效应模型,以原生物种丰富度作为响应变量。我们在将所有值加 1 后对原生物种丰富度进行 log10 转换,以纳入原生蜜蜂物种数为零的岛屿(n = 4),同时将其保留在分析中。
我们构建了包含全套生态预测因子的全模型,然后测试了所有可能的模型子集(dredge 函数,R 包 MuMIn v1.48.1196)。在所有模型中,log10 转换后的岛屿面积和岛屿隔离度度量被保留为固定效应,因为这些变量代表了岛屿生物地理学理论的核心预测。我们在单独的全模型中评估了三种替代隔离度指标:到最近大陆距离的 log10 转换值、到面积超过 1,000 km2 的最近陆块距离的 log10 转换值,以及岛屿周围 10 km 缓冲区内的周边陆地面积。
全模型还包括生物群系(5个类别)、海拔范围(log10)、年平均温度(标准化)、温度季节性(log10)、年降水量(log10)、降水季节性(log10)、岛屿类型(大陆性、碎片化或海洋性)以及采样完整性(样本量调整覆盖率,log10)。我们还评估了 Area × Biome 交互作用和 Isolation × Biome 交互作用。我们使用方差膨胀因子(VIF;R 包 car,vif 函数97)评估预测变量之间的共线性;在所有数据集中,年平均温度与生物群系及其他气候变量均显示出高共线性(VIF > 5),将其从全模型中移除后,所有剩余预测变量均低于该阈值。因此,我们从全模型中排除了年平均温度。在所有模型中,群岛身份作为随机截距纳入,以考虑同一群岛内岛屿之间的空间非独立性,并允许基线物种丰富度在群岛间变化98。模型通过最大似然拟合,并按 AICc 排序;包含所有三种隔离度量的模型随后被合并为一个单一的排序模型集。当有多个模型的 ΔAICc < 2 时,我们选择自由度最少的最简单模型(补充表4)。最佳支持模型包括:
log10(NativeSpeciesRichness)ij = β0 + β1 × log10(Area)ij + β2 × Biomeij + β3 × (log10(Area)ij × Biomeij) + β4 × log10(Isolation)ij + β5 × IslandTypeij + β6 × SamplingCompletenessij + uj + εij
NativeSpeciesRichnessij = 岛屿 i 在群岛 j 上观察到的本地蜜蜂物种数
Areaij = 岛屿面积(km2)
Biomeij = 生物群系分类
Isolationij = 到最近大陆的距离(km)
IslandTypeij = 岛屿类型(大陆性、碎片化、海洋性)
SamplingCompletenessij = 样本量调整覆盖率
β0 = 截距
β1 = log10(area) 的效应
β2 = 生物群系的效应
β3 = log10(area) 与生物群系之间的交互作用
β4 = log10(isolation) 的效应β5 = 岛屿类型的效应
β6 = 采样完整性的效应
uj = 群岛 j 的随机截距
εij = 残差误差
最终模型包括面积与生物群系之间的交互作用,表明面积对物种丰富度的影响因生物群系而异。岛屿类型和采样完整性被保留为固定效应。两个无法计算覆盖率的岛屿组被从最终模型中剔除(Wallis and Futuna、Pitcairn Islands,n = 303)。我们使用边际 R2 量化仅由固定效应解释的方差,
我们聚焦于至少支持一种单岛特有物种(SIE ≥ 1;n = 113 座岛屿)的岛屿。在这一岛屿子集中,除北方针叶林外,所有生物群系均有代表,因为北方岛屿不包含特有物种。我们采用了与本土丰富度分析相同的模型拟合流程。所有 ΔAICc < 2 的模型见补充表 7。支持度最高的模型包括:
log10(Endemism)ij = β0 + β1 × log10(Area)ij + β2 × Biomeij + β3 × (log10(Area)ij × Biomeij) + β4 × log10(TemperatureSeasonality)ij + β5 × log10(Isolation)ij + uj + εij
Endemismij = 在群岛 j 的岛屿 i 上观测到的单岛特有蜂类物种数
Areaij = 岛屿面积(km2)
Biomeij = 生物群系分类
TemperatureSeasonalityij = 温度季节性
Isolationij = 到最近大于1,000 km2 陆块的距离
β0 = 截距
β1 = log10(面积)的效应
β2 = 生物群系的效应
β3 = log10(面积)与生物群系之间的交互作用
β4 = log10(温度季节性)的效应
β5 = log10(隔离度)的效应
uj = 群岛 j 的随机截距
εij = 残差误差
为评估特有性模式的普适性,我们在三个子集上重复了分析:(1) 仅海洋岛屿(n = 69),在这些岛屿上特有性更可能由新特有演化驱动,而非陆桥古特有物种的留存;(2) 特有性丰富的岛屿(SIE > 总丰富度的5%;n = 96),聚焦于特有性已充分确立的系统。我们还对所有 AE(整个群岛特有的物种;AE ≥ 1;n = 217)重复了全部分析,以确认模式在不同特有性定义下均稳健(补充表 5 和 7)。群岛层面的方法捕捉了群岛范围内的多样化过程,同时揭示了群岛内哪些单个岛屿是特有性热点(参见例如参考文献 48)。对于 SIE ≥ 1 和海洋岛屿子集,群岛随机效应的方差被估计为零;但为保持所有模型间的一致性,仍予以保留。
此外,为正式检验丰富度与特有性之间的关系如何在不同生物群系间变化,我们比较了 SIEs 和 AEs 的三个嵌套模型:
- (1) 仅由丰富度预测特有性:log10(SIE/AE) ~ log10(Richness) + (1|Archipelago);
仅由丰富度预测特有性:log10(SIE/AE) ~ log10(Richness) + (1|Archipelago);
- (2) 生物群系在丰富度之外提供额外信息:log10(SIE/AE) ~ log10(Richness) + Biome + (1|Archipelago);以及
生物群系在丰富度之外提供额外信息:log10(SIE/AE) ~ log10(Richness) + Biome + (1|Archipelago);以及
- (3) 丰富度效应的斜率随生物群系变化:log10(SIE/AE) ~ log10(Richness) × Biome + (1|Archipelago)
丰富度效应的斜率随生物群系变化:log10(SIE/AE) ~ log10(Richness) × Biome + (1|Archipelago)
我们使用似然比检验依次比较这些嵌套模型。如果将生物群系作为固定效应能显著改善模型拟合,这表明具有相似丰富度的岛屿根据生物群系不同而支持不同的特有性基线水平。如果纳入生物群系与丰富度之间的交互作用能改善模型拟合,则特有物种随丰富度增加而累积的速率也随生物群系而变化。随后我们使用 emmeans 包(V1.11.1)101 通过截距的估计边际均值与斜率的估计边际趋势的两两比较(FDR 校正100)检验了生物群系间的具体差异。
蜂类丰富度与被子植物丰富度
为评估蜜蜂多样性在多大程度上跟随岛屿上被子植物多样性的变化,我们拟合了一个线性回归模型,以原生蜜蜂丰富度作为响应变量,以原生被子植物丰富度及其与生物群系的交互作用作为预测变量。我们额外将岛屿面积和隔离度作为协变量纳入模型,以控制影响被子植物和蜜蜂丰富度的混杂地理效应。方差膨胀因子表明预测变量之间多重共线性较低(所有 VIF < 2.4),支持将被子植物丰富度、岛屿面积和隔离度纳入同一模型。我们针对175个岛屿拟合了该模型,这些岛屿同时具备蜜蜂原生丰富度数据和来自 GIFT 数据库20的可靠被子植物丰富度数据。群岛身份作为随机截距纳入模型,以考虑同一群岛内岛屿的空间非独立性。为纳入与生物群系的交互作用,我们从分析中移除了寒带岛屿,因为可用于检验该交互作用的岛屿数量太少(3个)。
为了(1)比较各生物群系相对于单一基线的基线偏移(截距),以及(2)对生物群系与被子植物丰富度之间交互作用的显著性进行似然比检验,我们额外拟合了包含和不包含被子植物丰富度 × 生物群系交互项的模型。包含交互作用的完整模型为:
log10(NativeSpeciesRichness)ij = β0 + β1 × log10(AngiospermRichness)ij + β2 × Biomeij + β3 × (log10(AngiospermRichness)ij × Biomeij) + β4 × log10(Area)ij + β5 × log10(Isolation)ij + uj + εij
NativeSpeciesRichnessij = 群岛 j 中岛屿 i 的原生蜜蜂物种丰富度
AngiospermRichnessij = 原生被子植物物种丰富度
Areaij = 岛屿面积(km2)
Biomeij = 生物群系分类
Isolationij = 距最近大陆的距离(km)
β0 = 截距
β1 = log10(被子植物丰富度)的效应
β2 = 生物群系的效应
β3 = log10(被子植物丰富度)与生物群系之间的交互作用
β4 = log10(面积)的效应
β5 = log10(隔离度)的效应
uj = 群岛 j 的随机截距
εij = 残差误差
利用该模型的系数,我们通过从观测值中减去被子植物丰富度、岛屿面积和隔离度的中心化贡献,计算了每个岛屿的调整蜜蜂丰富度。该调整对数据进行了标准化,显示每个岛屿在具有全球平均植物丰富度、陆地面积和隔离度条件下的蜜蜂丰富度。最后,我们使用 emmeans 包(V1.11.1)101计算了每个生物群系的估计边际均值,并进行了事后成对比较(FDR 校正)100。
所有统计分析、数据处理和可视化均在 R(v4.5.0)103中完成。除已引用的包外,数据处理、事后检验和图形格式化使用以下包完成:broom.mixed(v0.2.9.6)104、ComplexUpset(v1.3.3)105、corrplot(v0.95)106、cowplot(v1.2.0)107、ggnewscale(v0.5.1)108、ggrepel(v0.9.6)109、ggtext(v0.1.2)110、kableExtra(v1.4.0)111、lmerTest(v3.1-3)112、maps(v3.4.2.1)113、mgcv(v1.9-4)114、multcomp(v1.4-28)115、multcompView(v0.1−10)116、patchwork(v1.3.0)117、performance(v0.13.0)118、scales(v1.4.0)119、scico(v1.5.0)120、tidyverse(v2.0.0)121和 UpSetR(v1.4.1)122。
Reporting summary
有关研究设计的更多信息,请参阅与本文链接的 Nature Portfolio Reporting Summary。