 Newshot
主要
同类相食,即食用同种个体,在动物界中广泛存在,通常被认为是由生态或社会压力驱动的适应性行为1,2。然而,其发生高度依赖情境,且潜在的调控机制仍知之甚少。在人类中,同类相食随着文化演化而基本消失,部分原因是朊病毒疾病3。同样,蟋蟀等昆虫在正常条件下很少发生同类相食,但禁闭或营养剥夺可触发这种行为4。这些观察强调了环境压力对同类相食的影响,尽管其内在调控机制仍不清楚。
蝗虫为同类相食研究提供了引人注目的模型,因为其在集体动态中具有重要作用5,6。在幼年迁徙群体中,来自后方的同种捕食威胁促使个体向前移动,降低同类相食风险并促进群体凝聚力5,6。同类相食还提供营养益处,使蝗虫能够补偿食物不足,并可能增强生存和移动能力7,8。这种行为受密度依赖性相变多型现象的强烈影响。在低密度下,散居型蝗虫避开同种个体,而种群密度增加会促进群居行为和同类相食的遭遇5,7。营养缺乏进一步加剧同类相食。对南美蝗虫(Schistocerca cancellata)的野外研究表明,碳水化合物剥夺会促进同类相食9,而对沙漠蝗虫(Schistocerca gregaria)的实验室研究表明,蛋白质偏向的饮食会减少运动并增加同类相食的相互作用7。尽管这些发现确立了同类相食的生态重要性,但其分子和遗传调控仍知之甚少。
化学线索调控多种蝗虫行为,包括聚集10,11、产卵12、交配13和同类相食14。我们之前的工作发现苯乙腈(PAN)是一种密度依赖性的反同类相食信息素,可激活特定的嗅觉受体并减少拥挤种群中的同种捕食14。然而,化学线索是否主动诱导同类相食仍不清楚。野外和实验室观察表明,受伤的蝗虫优先成为同种个体的目标15,提示损伤诱导的化学信号可能吸引个体并促进同类相食行为。
愈创木酚,一种在植物消化过程中由肠道微生物群产生的挥发性化合物,已被确定为沙漠蝗虫的聚集信息素16。在此,我们表明损伤诱导的微生物群衍生的愈创木酚协调迁徙蝗虫(Locusta migratoria)的免疫防御和同类相食,并阐明了潜在机制,这些机制涵盖微生物生物合成、嗅觉检测、免疫调控和行为反应。总之,我们的发现确定了一种连接免疫和同类相食的微生物信号机制,揭示了宿主-微生物相互作用如何介导免疫保护与易受同种捕食之间的权衡。
损伤信号诱导群居型若虫的同类相食
文章标题:Injury-induced signalling coordinates immunity and cannibalism in locusts
正文: 飞蝗(L. migratoria)的同类相食行为表现出相位多型性,独居若虫通常避免捕食同种个体,而群居若虫更倾向于发生同类相食,尤其是在拥挤或食物匮乏的条件下14。初步观察显示,受伤个体会被附近的同种个体迅速包围并攻击(图1a),这表明受伤本身作为一种线索,增加了其被同种个体捕食的易感性。为验证这一假设,我们对群居的四龄和五龄若虫进行了双选择实验,这两个发育阶段是同类相食最为普遍发生的时期14。由于受伤可能改变运动能力,从而独立于受伤来源信号影响捕食者选择,我们通过固定两个猎物个体来控制这一潜在混杂因素。该实验设计使我们能够专门评估受伤相关线索对捕食者偏好的贡献。在每次实验中,将一对固定的完整和受伤的四龄若虫分别置于含有十只饥饿五龄捕食者的实验腔两端(图1b)。损伤通过机械方式或先前同种个体的咬伤造成。在所有实验中,捕食者始终表现出对受伤猎物相较于完整猎物的显著捕食偏好,表明受伤在增加同种捕食易感性方面发挥重要作用(图1c)。
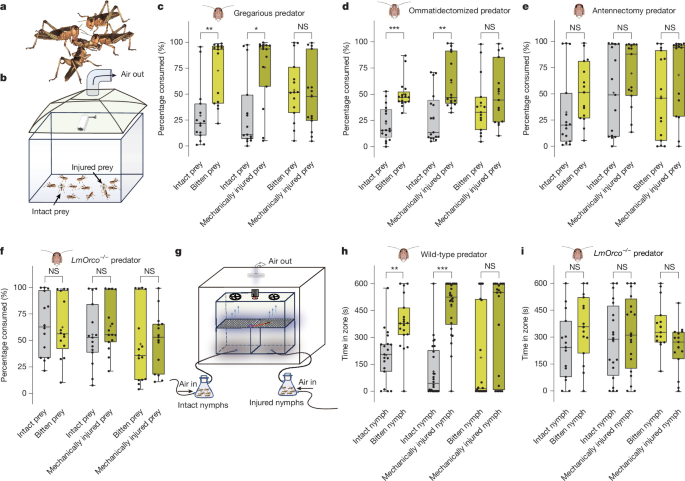
a,五龄群居若虫攻击一只受伤的四龄群居若虫的代表性图像。b,双选择捕食实验示意图。将十只饥饿的五龄群居若虫与分别固定在实验场两端的完整和受伤四龄若虫一同放置。c–f,完整(c;n = 15;组1,P = 0.009;组2,P = 0.012)、去复眼(d;n = 15;组1,P = 0.001;组2,P = 0.006)、去触角(e;n = 15)和 LmOrco−/−(f;n = 14)若虫的捕食偏好。测试了三种猎物配对:组1,完整对咬伤;组2,完整对机械损伤;组3,机械损伤对咬伤。g,双选择嗅觉仪实验示意图,测试完整和受伤四龄若虫的挥发物。h,i,野生型(h;n = 19;组1,P = 0.010;组2,P < 0.001)和 LmOrco−/−(i;n = 15)若虫对上述三种配对的嗅觉偏好。在c–f中,偏好以从每个猎物个体消耗的猎物总身体质量百分比表示。所有行为数据以箱须图呈现(箱体表示中位数和上下四分位数;中心线表示中位数,加号表示均值,须线从最小值延伸至最大值)。统计分析采用双侧配对样本Wilcoxon符号秩检验。P < 0.001;P < 0.01;P < 0.05;NS,不显著。
为确定损伤类型是否影响捕食偏好,我们比较了捕食者对机械损伤猎物和咬伤猎物的偏好。未观察到显著差异(图1c),表明仅损伤本身,无论其来源如何,就足以诱导偏好性捕食。为探究受伤诱导的易感性在不同发育阶段是否一致,我们将实验扩展至以一龄至五龄若虫作为猎物。在所有测试阶段中,五龄捕食者均一致偏好受伤猎物而非完整猎物,与损伤类型无关(扩展数据图1a)。这些发现表明,受伤驱动的同类相食是群居蝗虫发育过程中一个稳健且一致的特征。
接下来,我们研究了介导受伤诱导捕食的感觉线索。为评估嗅觉和视觉输入的作用,我们进行了触角切除(破坏主要嗅觉输入)、敲除嗅觉共受体 LmOrco(破坏嗅觉受体功能)(扩展数据图 1b)或去除复眼(破坏视觉输入)。去除复眼的捕食者仍保留对受伤猎物的偏好(图 1d),表明视觉线索并非介导该行为所必需。相比之下,缺乏触角或 LmOrco 功能的捕食者对受伤猎物与完好猎物没有表现出偏好(图 1e,f)。值得注意的是,尽管切除触角的捕食者不再表现出统计学显著的偏好,但仍保留了一种微弱的、对受伤猎物的残余偏向(图 1e)。这一观察与蝗虫嗅觉系统的解剖组织相一致:其中触角构成主要但并非唯一的嗅觉器官。因此,去除触角可能大幅降低但不会完全消除嗅觉感知。相比之下,破坏 LmOrco——其广泛损害气味受体功能——导致辨别行为完全丧失(图 1f)。总之,这些发现确定依赖 LmOrco 的嗅觉是介导受伤诱导的同类相食捕食的主要感觉模态。
最后,我们评估了挥发性化学线索是否促成了观察到的捕食偏向。收集受伤和完好若虫的顶空挥发物,并在双向选择嗅觉仪中呈现(图 1g)。饥饿的五龄捕食者强烈偏好含受伤个体挥发物的区域,而非含完好猎物挥发物的区域(图 1h)。对来自机械损伤猎物与咬伤猎物的挥发物,偏好未观察到显著差异(图 1h),表明受伤诱导的挥发物释放增强了对捕食者的吸引力,从而增加受伤个体被同类相食的易感性。相比之下,LmOrco−/− 捕食者对含受伤个体挥发物的区域没有偏好(图 1i),表明依赖 LmOrco 的嗅觉介导了该捕食偏好。
愈创木酚诱导群居若虫的同类相食
为研究 L. migratoria 中受伤诱导的同类相食背后的化学信号,我们分析了完好、机械损伤和被咬伤的蝗虫若虫释放的顶空挥发物(图 2a)。在检测到的化合物中,愈创木酚成为最主要的受损伤影响的气味物质(图 2b 和扩展数据表 1),与完好对照和群居成虫相比,受伤若虫中的释放水平约高十倍(图 2b,c 和扩展数据图 2a,b)。这种愈创木酚释放的增加在所有发育龄期(一龄至五龄)中均一致(扩展数据图 2c),表明愈创木酚产量的增加是群居若虫对损伤的一致生理反应。相比之下,其他化合物——包括此前已被认为与抑制同类相食14有关的 PAN——在不同损伤条件下没有显著变化(图 2b,c 和扩展数据图 2d),表明愈创木酚是一个关键的损伤线索。
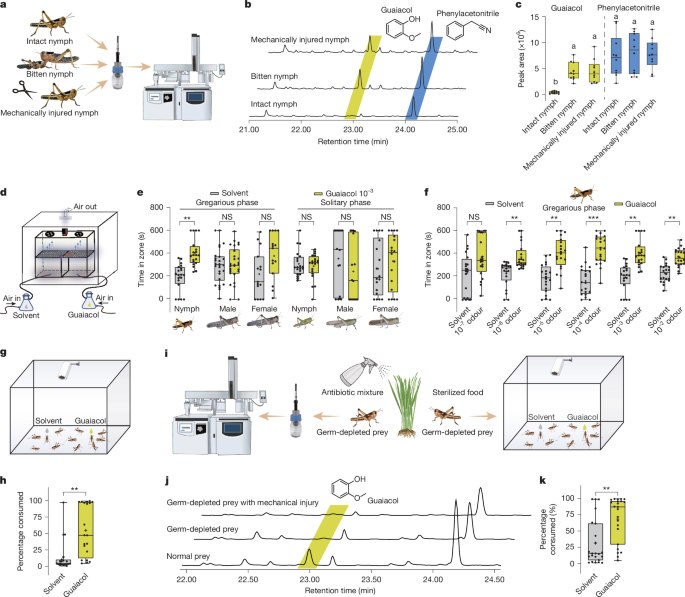
a,对完整、机械损伤和咬伤的四龄群居型若虫进行挥发性物质分析的示意图。b,三组若虫释放的挥发性物质的代表性气相色谱图,其中愈创木酚和 PAN 已标出。c,愈创木酚和 PAN 释放量的相对定量(每组 n = 10 个重复;愈创木酚:组 1,P < 0.001;组 2,P < 0.001)。d,测试合成愈创木酚对溶剂的双选择嗅觉仪实验示意图。e,不同型、性别和发育阶段的蝗虫对 10−3 愈创木酚的行为反应(n = 15;群居型若虫,P = 0.001)。f,群居型若虫对愈创木酚的剂量依赖性反应(每个浓度 n = 20;10−6,P = 0.008;10−5,P = 0.004;10−4,P < 0.001;10−3,P = 0.001;10−2,P = 0.002)。g,使用用 2 µl 10−4 愈创木酚或溶剂处理的完整若虫进行双选择捕食实验的示意图。h,对愈创木酚处理若虫相对于对照若虫的捕食偏好(n = 20;P = 0.006)。i,用于生成去除肠道菌群的若虫以进行化学和行为实验的流程示意图。j,完整未处理、完整去除肠道菌群和损伤去除肠道菌群若虫的代表性气相色谱图,其中愈创木酚已标出。k,对愈创木酚处理相对于对照的去除肠道菌群若虫的捕食偏好(n = 23;P = 0.009)。g、h 和 k 中的猎物可自由移动。所有数据均以箱线图呈现(箱体表示中位数和上/下四分位数;中心线表示中位数,加号表示均值,须从最小值延伸至最大值)。统计显著性采用双侧配对样本 Wilcoxon 符号秩检验评估,但 c 中采用单因素方差分析(ANOVA)及 Tukey 事后检验。不同字母表示 P < 0.05。P < 0.001;P < 0.01;P < 0.05。e 中群居型若虫暴露于 10−3 愈创木酚的数据与 f 中 10−3 浓度所示数据相同。
为评估愈创木酚的行为学意义,我们对来自群居型和散居型的五龄若虫以及雄性和雌性成虫进行了双选择嗅觉仪试验,测试浓度为 10−3 的合成愈创木酚(扩展数据表2)的效果(图2d)。只有群居型若虫对愈创木酚表现出强烈的吸引性;散居型个体和群居型成虫没有显著偏好(图2e和补充视频1)。这表明愈创木酚选择性地吸引群居型若虫。我们随后研究了受伤群居型若虫自然释放的愈创木酚水平是否足以引发吸引。定量顶空分析显示,受伤群居型若虫的释放量相当于合成愈创木酚 10−5 至 10−4 稀释液的浓度(扩展数据图2e)。为确定这些自然释放的愈创木酚是否足以诱导吸引,我们在双选择嗅觉仪中用完整的浓度系列(10−7 至 10−2)测试了群居型若虫的行为反应(图2d)。对愈创木酚的吸引在 10−6 处急剧出现,在更高浓度下依然明显,但在 10−7 处消失(图2f)。这与受伤若虫自然释放量的生理范围相符,证实受伤个体释放的愈创木酚浓度具有行为学相关性。由于此前所有行为学试验均使用单独测试的蝗虫进行,我们接下来检验了愈创木酚的吸引性在群居种群所特有的社会条件下是否仍然保持。为解决这一问题,我们使用五只群居型若虫组成的群体进行双选择嗅觉仪试验,并量化群体在场地每一侧的平均停留时间。与单独测试动物所得结果一致,群居型若虫群体在含 10−3 愈创木酚一侧的停留时间显著长于对照侧(扩展数据图2f和补充视频2)。这些发现表明,愈创木酚的吸引效应在群体情境下依然存在,因此很可能在生态相关的社会条件下发挥作用。
文章标题:Injury-induced signalling coordinates immunity and cannibalism in locusts
正文: 由于单纯被吸引并不一定意味着决定进行同类相食行为,我们接下来研究了愈创木酚是否能直接触发同类相食的捕食行为。我们进行了双选择捕食实验,将成对的完整四龄群居若虫——一只用 2 µl 的 10−4 愈创木酚处理(代表受伤若虫的自然释放水平)(Extended Data Fig. 2e),另一只用溶剂油处理——提供给 10 只饥饿的五龄群居捕食者(Fig. 2g)。经愈创木酚处理的若虫优先被取食,而经溶剂处理的若虫很少受到攻击(Fig. 2h),证实愈创木酚是同类相食捕食的有力诱发物。随后我们试图排除内源性愈创木酚对捕食者偏好的潜在影响。此前研究表明,在蝗虫中愈创木酚主要由肠道微生物群在消化植物过程中合成16。为消除这一混杂因素,我们通过在饲料中投喂三种抗生素(四环素、链霉素和环丙沙星)的混合物17,18,19,培育出无菌群居若虫(Fig. 2i)。该方法有效消除了完整若虫和受伤若虫的愈创木酚释放,为后续行为实验提供了化学上干净的背景(Fig. 2j)。随后我们用 2 µl 的 10−4 愈创木酚(模拟受伤若虫的自然释放)(Extended Data Fig. 2e)或溶剂油处理无菌群居若虫,并将其作为猎物用于双选择捕食实验(Fig. 2i)。与此前观察一致,经愈创木酚处理的若虫优先受到攻击,而经溶剂处理的若虫基本被忽视(Fig. 2k 和 Extended Data Fig. 2g)。最后,为评估愈创木酚介导的同类相食在更接近自然条件下的生态相关性,我们在大型户外网笼(1.8 m × 1.2 m × 1.5 m)中进行了半野外实验。每个网笼内放置 500 只五龄群居捕食者,以及 100 只四龄猎物,这些猎物分别用 10−4 愈创木酚或仅用溶剂加香(Extended Data Fig. 2h)。24 h 后,经愈创木酚处理的网笼中剩余的四龄若虫数量显著少于对照网笼,表明在愈创木酚存在时同类相食互作频率显著更高(Extended Data Fig. 2h)。与直接行为观察一致,存活个体的减少归因于同种捕食的增加而非逃逸,因为所有蝗虫都被限制在网笼内。这些发现表明,愈创木酚介导的同类相食促进在种群水平上于半自然条件下持续存在,支持了这一损伤相关信号的生态相关性。总体而言,这些发现确立了愈创木酚作为一种关键的化学线索,既能传递损伤信号,又能诱导同种捕食。
LmOR34 和 LmOR36 介导若虫对愈创木酚的反应
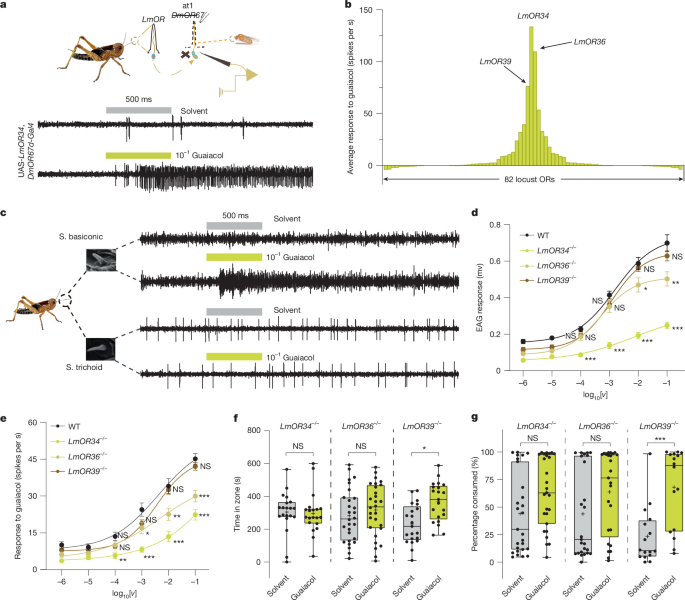
为阐明飞蝗(L. migratoria)检测愈创木酚的分子基础,我们试图鉴定所涉及的具体嗅觉受体。在此前的研究中,我们基于 49 个飞蝗嗅觉受体的功能表征,鉴定出 LmOR34、LmOR36 和 LmOR39 为对愈创木酚有响应的受体20。为确认是否有其他嗅觉受体参与该化合物的检测,我们将分析扩展到约 140 个已鉴定飞蝗嗅觉受体中的 82 个(Fig. 3a)。与此前发现一致,LmOR34、LmOR36 和 LmOR39 在异源表达系统中对愈创木酚表现出强烈响应(Fig. 3a,b),而其他受体未表现出可比拟的敏感性。
损伤诱导信号协调蝗虫的免疫与同类相食
a,果蝇 at1 异源表达系统示意图,以及表达 LmOR34 的 at1 神经元经溶剂或愈创木酚刺激后的代表性记录(黄色条表示刺激持续时间)。b,表达 82 种 LmOR 的果蝇解码神经元对 10−1 愈创木酚的反应(每种受体 n = 5 次记录)。所有受体反应数据均在本研究中产生。c,蝗虫锥形感器(S. basiconic)和毛形感器(S. trichoid)对 10−1 愈创木酚反应的代表性 SSR 记录。两种感器类型的扫描电子显微照片展示于14;黄色条表示刺激持续时间。d,野生型(WT;n = 15)、LmOR34−/−(n = 20;10−4 至 10−1,均 P < 0.001)、LmOR36−/−(n = 18;10−1,P = 0.002;10−2,P = 0.031)和 LmOR39−/−(n = 15)若虫中愈创木酚的 EAG 剂量-反应曲线。e,野生型(n = 30)、LmOR34−/−(n = 30;10−3 至 10−1,均 P < 0.001;10−4,P = 0.001)、LmOR36−/−(n = 30;10−1,P < 0.001;10−2,P = 0.005;10−3,P = 0.040)和 LmOR39−/−(n = 28)若虫中的 SSR 剂量-反应曲线。f,突变若虫对 10−3 愈创木酚的行为反应(n = 20;LmOR39−/−,P = 0.024)。g,突变若虫在经 2 µl 10−4 愈创木酚或溶剂处理的自由活动生殖细胞耗竭若虫之间的捕食偏好(n = 16;LmOR39−/−,P < 0.001)。数据为平均值 ± 标准误(d 和 e)或箱线图(f 和 g;箱体为四分位距;中心线为中位数;加号表示均值;须线为最小值和最大值)。统计显著性使用双尾非配对 Student t 检验(d 和 e)或双侧配对样本 Wilcoxon 符号秩检验(f 和 g)评估。P < 0.001;P < 0.01;P < 0.05。c 中两种感器类型的扫描电子显微照片转载自参考文献 14,美国科学促进会。
表达不同嗅觉受体的嗅觉感觉神经元定位于飞蝗触角上不同的感器中。为鉴定负责愈创木酚检测的感器,我们对锥形感器和毛形感器进行了单感器记录(SSR),这些感器含有表达共受体 Orco21,22 的神经元。锥形感器容纳较大数量的感觉神经元(20–50),而毛形感器仅含 2 或 3 个神经元14。由于锥形感器中神经元密度较高,无法根据动作电位幅度区分单个反应。因此,我们测量了感器内整个神经元群体的总体反应。在锥形感器中检测到对愈创木酚的强烈神经元反应,而在毛形感器中未观察到反应(图 3c)。
关于愈创木酚的活性浓度,电生理学和行为学测试之间结果不一致,电生理实验中的阈值
为了在体内评估 LmOR34、LmOR36 和 LmOR39 基因的功能贡献,我们利用 CRISPR–Cas9 介导的基因组编辑生成了靶向功能缺失突变体。靶向这些基因第一个外显子的指导 RNA(扩展数据表 3)产生了 235 bp(LmOR34)(扩展数据图 3b)、262 bp(LmOR36)(扩展数据图 3b)和 8 bp(LmOR39)(扩展数据图 3b)的移码缺失,导致预测的编码蛋白截短。触角电图(EAG)记录显示,与野生型若虫相比,LmOR34−/− 和 LmOR36−/− 突变体中愈创木酚诱导的反应显著降低,而 LmOR39−/− 突变体中的反应保持不变(图 3d)。此外,来自锥形感器的 SSR 记录表明,与野生型若虫相比,LmOR34
值得注意的是,尽管共享受体组分,配体特异性的行为分化已在昆虫中被广泛记录,包括模式物种 Drosophila melanogaster23,24,其中差异性的外周调谐25和下游回路整合使得能够区分化学相关的线索26。为检验蝗虫中是否存在类似机制,我们比较了 LmOR34 和 LmOR36 对愈创木酚和 2,4,6-TMP 的响应特性。尽管两种配体均激活两种受体,但愈创木酚引发的响应比 2,4,6-TMP 明显更强、更敏感(Extended Data Fig. 3f,g)。此外,LmOR34 和 LmOR36 对愈创木酚与 2,4,6-TMP 的响应动力学差异很大(Extended Data Fig. 3h,i),表明这些配体在受体水平施加不同的时间激活模式,可被下游回路差异解码。除受体内在差异外,配体特异性行为可能由触角叶中不同的群体水平编码塑造。与此观点一致,我们先前的研究显示,愈创木酚和 2,4,6-TMP 引发的触角叶激活模式仅部分重叠27,提示存在其他受体输入。例如,LmOR46 对 2,4,6-TMP 有响应(Extended Data Fig. 3d),而 LmOR39 对愈创木酚有响应(Fig. 3b)。此外,由于预测的 140 个 L. migratoria 嗅觉受体中仅 82 个已完成功能鉴定,其他受体可能仍未被识别。尽管这些受体对气味检测的贡献可能不大,但即使微弱输入也可能重塑触角叶中的集群编码,从而使下游回路激活偏向不同的生态和行为结局。综合来看,差异性的受体调谐(敏感性和动力学)以及其他受体的配体特异性招募,可能解释了为何愈创木酚和 2,4,6-TMP 在作用于共享受体的同时产生不同的行为后果。
愈创木酚的生物合成及其在同类相食中的作用
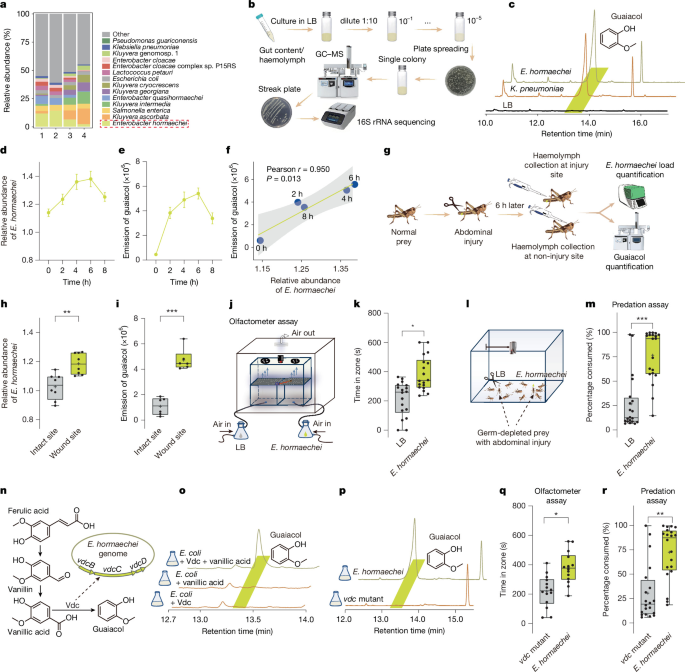
愈创木酚先前已被鉴定为 S. gregaria 肠道中 Pantoea agglomerans 产生的一种挥发性物质,并被认为与蝗虫行为有关16。为鉴定 L. migratoria 中产生愈创木酚的细菌,我们进行了肠道微生物群宏基因组测序,但未检测到 P. agglomerans(Fig. 4a),提示存在其他微生物来源。随后,我们从四龄群居若虫的肠道和血淋巴中分离了可培养细菌(Fig. 4b)。对 50 多个菌落进行筛选,从两种组织中鉴定出一株产生愈创木酚的分离株(Fig. 4b,c),全基因组测序将其鉴定为 Enterobacter hormaechei,一种优势肠道细菌(Fig. 4a)。宏基因组分析进一步证实该细菌在肠道和血淋巴中均丰度很高(Fig. 4a 和 Extended Data Fig. 4a)。尽管先前一项关于 L. migratoria 微生物组的研究28未报道 E. hormaechei,但宏基因组测序和定量 PCR(qPCR)在所检测的全部六个地理上不同的野外种群中均检测到该菌,且相对丰度各异(Extended Data Fig. 4b)。对其他分离株的筛选还鉴定出 Klebsiella pneumoniae 为愈创木酚产生菌,其释放水平与 E. hormaechei 相当(Fig. 4c)。然而,我们选择 E. hormaechei 进行后续机制分析,因为它在不同样本和种群中均能稳定检测到,并表现出稳定的愈创木酚产生能力。
蝗虫中损伤诱导的信号协调免疫与同类相食
a,群居若虫的肠道微生物丰度(1–4,个体;红框表示优势种)。b,产愈创木酚细菌的分离。c,E. hormaechei 和 K. pneumoniae 挥发物的色谱图(黄色条表示愈创木酚)。d,e,伤口相关 E. hormaechei 滴度(d;n = 3)和愈创木酚释放量(e;n = 6)随时间的变化。f,细菌滴度与愈创木酚释放量之间的 Pearson 相关性(y = 1.9 × 10⁷x − 2 × 10⁷;阴影表示 95% 置信区间;显示了 r 值和双侧 P 值)。g,损伤后 6 h 从伤口部位和完整部位采集血淋巴。h,i,两个部位的细菌滴度(h;n = 8,P = 0.025)和愈创木酚浓度(i;n = 6,P = 0.028)。j,k,嗅觉仪实验(j)以及对细菌挥发物(105 CFU ml−1)相对于 LB 的响应(k;n = 18,P = 0.014)。l,m,捕食实验(l)以及对接种 E. hormaechei 的受伤无菌若虫相对于 LB 的偏好(m;n = 20,P < 0.001)。n,从阿魏酸30生物合成愈创木酚(vdc 簇高亮显示)。o,表达 vdc 的 E. coli 产生愈创木酚。p,野生型和 vdc 突变型 E. hormaechei 的色谱图。q,对野生型与突变型挥发物的嗅觉偏好(n = 14,P = 0.022)。r,对接种野生型与突变型若虫的捕食偏好(n = 20,P = 0.005)。猎物可自由移动(l、m 和 r)。数据为平均值 ± s.e.m.(d–f)或箱线图(箱体,四分位距;线,中位数;加号,均值;须,范围)。除 f(Pearson 相关)外,均使用双侧 Wilcoxon 符号秩检验。d–f 中各时间点使用独立个体。血淋巴(每只蝗虫约 5 μl)在每个生物学重复中从 20 个个体混合采集。P < 0.001;P < 0.01;P < 0.05。
我们接下来研究了损伤与细菌丰度和愈创木酚释放量之间的关系。损伤后,血淋巴细菌载量(图 4d)和愈创木酚释放量(图 4e)均随时间增加,在损伤后约 6 h 达到峰值,并在约 8 h 时趋于稳定(图 4d,e),且二者的时间变化呈正相关(图 4f)。为评估局部细菌富集情况,我们在损伤后 6 h 从同一个体的伤口部位和完整区域采集等体积血淋巴(图 4g)。伤口部位血淋巴的细菌载量(图 4h)和愈创木酚水平(图 4i)显著更高,表明 E. hormaechei 发生局部积累并增强了愈创木酚产生。由于种群密度可影响蝗虫肠道微生物群29,我们还比较了不同相位间 E. hormaechei 的丰度,发现散居型和群居型若虫之间无显著差异(扩展数据图 4c)。
为确定 E. hormaechei 是否影响蝗虫行为,我们首先在双选择嗅觉仪中测试了其挥发物(图 4j)。相对于对照培养基,群居若虫显著被细菌挥发物吸引(图 4k)。随后,我们使用双选择捕食实验检验这些挥发物是否促进同类相食(图 4l)。将两只机械损伤的无菌猎物若虫(损伤大小和位置匹配)同时呈现给十只饥饿的五龄群居捕食者,其中一只猎物用 E. hormaechei 重新定殖,另一只不作处理。捕食者优先攻击并取食携带 E. hormaechei 的猎物,而无菌对照很少被攻击(图 4m)。
为确定愈创木酚生物合成的遗传基础,我们对 E. hormaechei 基因组进行了测序,并鉴定出一个由三个香草酸脱羧酶(vdc)基因组成的基因簇,这些基因此前被认为参与微生物将香草酸转化为愈创木酚30(Fig. 4n)。该基因簇在 Escherichia coli 中的异源表达(Extended Data Fig. 4d 和 Supplementary Fig. 1)证实了其在体外催化香草酸生成愈创木酚的能力(Fig. 4o)。相反,在 E. hormaechei 中敲除 vdc 基因(Extended Data Fig. 4e 和 Supplementary Fig. 1)完全消除了愈创木酚的产生,这一点经气相色谱–质谱联用(GC–MS)确认(Fig. 4p)。这些发现确立了该基因簇在愈创木酚生物合成中的关键作用。
最后,我们评估了微生物的愈创木酚生物合成是否是蝗虫受到吸引以及同类相食所必需的。在双选择嗅觉仪实验中,群居若虫被野生型 E. hormaechei 的挥发性物质吸引,而不被 vdc 缺陷突变体吸引(Fig. 4q)。同样,在双选择捕食实验中,饥饿的群居捕食者优先攻击机械损伤、菌群清除并重新定植野生型 E. hormaechei 的猎物,而携带 vdc 突变体的猎物尽管损伤大小和位置相同,却很少成为攻击目标(Fig. 4r)。综合来看,这些结果表明,E. hormaechei 与损伤相关的愈创木酚产生,是将宿主损伤转化为促进同种个体吸引和同类相食的嗅觉线索所必需的。
愈创木酚为受伤若虫提供免疫益处
受伤的群居若虫释放更高水平的愈创木酚,尽管同种同类相食的风险增加。这提出了一个问题:为何这种看似代价高昂的反应得以维持。我们认为,愈创木酚释放可能为受伤个体提供补偿性益处。为探索这一可能性,我们首先考虑了愈创木酚的抗微生物特性。先前研究表明,愈创木酚能够抑制或杀死包括细菌和真菌在内的广泛微生物;这些活性归因于其酚类结构,该结构破坏微生物膜并干扰代谢过程31,32,33。基于这些特性,我们提出,E. hormaechei 产生的愈创木酚可能通过抑制病原体入侵,为受伤的群居若虫提供免疫益处。
为检验这一假设,我们选择了两种常与蝗虫死亡相关的病原体:蝗虫内源性细菌病原体 Proteus mirabilis34(Extended Data Fig. 5a)和市售真菌杀虫剂 Metarhizium anisopliae35(Extended Data Fig. 5b)。为确定愈创木酚是否能在受伤后提高对病原体入侵的抵抗力,我们使用去除菌群的群居若虫,分别饲喂愈创木酚或不作处理,并用野生型 E. hormaechei 或其 vdc 敲除突变体感染它们(Fig. 5a)。在人工损伤若虫后,我们在伤口部位接种 M. anisopliae 和 P. mirabilis,并监测数天内的存活情况(Fig. 5a)。我们发现,与未饲喂或感染 vdc 突变型 E. hormaechei 的若虫相比,饲喂愈创木酚或感染野生型 E. hormaechei 的若虫存活率显著更高(Fig. 5b,c)。这些结果表明,由 E. hormaechei 产生的愈创木酚可能在暴露于病原体感染时提高受伤若虫的存活率。为确认这种保护作用是由于愈创木酚抑制病原体增殖的能力,我们量化了饲喂和未饲喂愈创木酚的若虫,以及感染野生型或 vdc 突变型 E. hormaechei 的若虫血淋巴中的病原负荷。我们观察到,与饲喂愈创木酚和感染野生型 E. hormaechei 的若虫相比,未饲喂愈创木酚以及感染 vdc 突变型 E. hormaechei 的若虫血淋巴中的病原负荷显著更高(Fig. 5d,e)。这些发现支持以下观点:E. hormaechei 产生愈创木酚可抑制 M. anisopliae 和 P. mirabilis 的入侵和增殖,从而为受伤蝗虫提供免疫益处。最后,为确定产生愈创木酚的 E. hormaechei 的保护作用是病原体特异性的还是广泛适用的,我们用另一种机会致病菌 Enterococcus faecalis34 感染受伤蝗虫(Extended Data Fig. 5c)。正如对 P. mirabilis 和 M. anisopliae 所观察到的那样,补充愈创木酚和野生型 E. hormaechei 定植显著抑制了病原感染(Extended Data Fig. 5d)并提高了宿主存活率(Extended Data Fig. 5e)。这些结果共同表明,愈创木酚作为一种具有广泛保护作用的微生物代谢物,可增强宿主受伤后对多种病原体的防御。
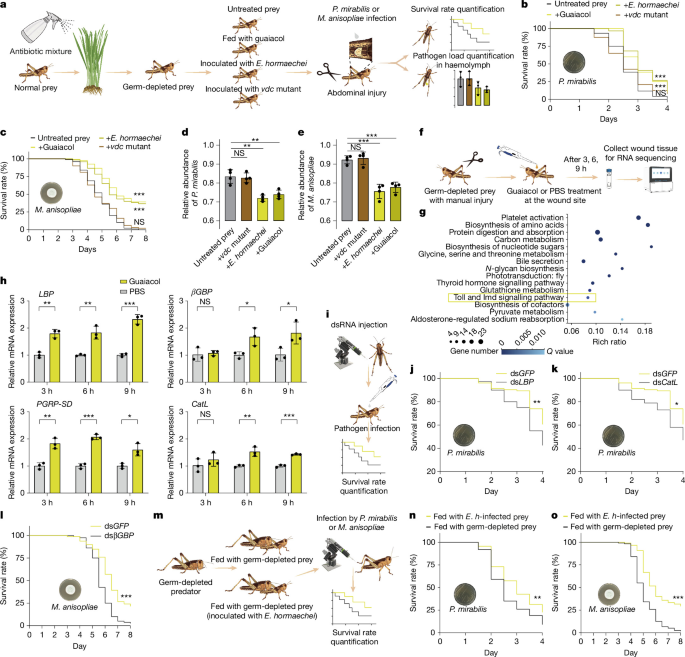
损伤诱导信号协调蝗虫的免疫与同类相食
a,评估 E. hormaechei 来源的愈创木酚是否增强损伤后病原体抗性的流程。b,c,用愈创木酚或野生型或 vdc 突变体 E. hormaechei 处理的去除共生菌若虫,随后感染 P. mirabilis(b;n = 120)或 M. anisopliae(c;n = 100)后的生存率(愈创木酚或野生型细菌相对于未处理组,均 P < 0.001)。d,e,血淋巴病原滴度:感染 P. mirabilis 后 2 天(d;n = 4;细菌,P = 0.001;愈创木酚,P = 0.004)和感染 M. anisopliae 后 4
为验证这些基因在病原体抗性中的作用,我们使用 RNA 干扰(RNAi)(图 5i)逐一敲低每个基因(扩展数据图 5g-i),并评估了它们对 M. anisopliae 或 P. mirabilis 感染的抗性贡献。我们发现,敲低 LBP 和 CatL(扩展数据图 5g,h)促进了 P. mirabilis 的入侵和增殖(扩展数据图 5j,k),导致死亡率显著高于对照 GFP RNAi 组(图 5j,k)。另一方面,敲低 βGBP(扩展数据图 5i)促进了 M. anisopliae 的入侵和增殖(扩展数据图 5l),同样导致死亡率显著高于 GFP RNAi 对照(图 5l)。这些结果表明,愈创木酚通过上调 LBP 和 CatL 增强对 P. mirabilis 感染的抗性,同时通过上调 βGBP 增强对 M. anisopliae 的抗性。因此,愈创木酚通过刺激免疫反应保护受伤的若虫免受病原体感染。
由于愈创木酚激活了受伤蝗虫的免疫反应,我们接下来探究这种免疫激活是否也可能限制产生愈创木酚的共生菌自身的增殖。为探讨这一可能性,我们将去除共生菌的群居型若虫暴露于愈创木酚或不予处理,随后接种等量的 E. hormaechei。在这些条件下,与未处理对照相比,愈创木酚暴露并未降低 E. hormaechei 的丰度(扩展数据图 5m),表明愈创木酚诱导的免疫激活不会实质性损害其微生物产生者的定殖。我们随后检验了愈创木酚释放量升高是否是病原体感染的直接结果。将群居型若虫感染 P. mirabilis,并在感染后定量愈创木酚释放量。与未感染对照相比,仅病原体感染并未显著改变愈创木酚释放(扩展数据图 5n),提示愈创木酚产量升高并非对感染的一般性反应,而是与 E. hormaechei 的损伤依赖性增殖特异性相关。
在确定愈创木酚既不抑制其微生物产生者,也不由病原体感染直接诱导之后,我们接下来探究愈创木酚暴露是否增强宿主对后续病原体攻击的响应能力。将去除共生菌的群居型若虫喂食愈创木酚,随后在伤口部位进行 P. mirabilis 局部感染。愈创木酚处理导致 Toll 和 Imd 信号通路中多个基因的上调,包括此前鉴定的免疫效应基因(扩展数据图 5o)。这些结果表明,愈创木酚可能增强宿主在后续细菌感染期间的免疫响应能力。
最后,我们探究了群居捕食性若虫是否从取食受伤的群居若虫中获益,因为这些受伤若虫体内携带有大量 E. hormaechei。在实验组中,我们向五龄群居捕食性若虫提供感染了 E. hormaechei 的无菌四龄群居若虫作为食物(图 5m)。在对照组中,我们提供未感染 E. hormaechei 的无菌四龄群居若虫(图 5m)。在两组中,我们确保所有捕食性若虫取食等量的猎物若虫。我们发现,与取食未感染若虫的捕食者相比,取食感染 E. hormaechei 若虫的捕食者在随后感染病原体时表现出显著更好的存活率(图 5n,o)。为了直接追踪同类相食过程中的微生物传播,我们用携带 E. hormaechei 的猎物饲喂无菌五龄捕食性若虫(扩展数据图 5p)。饲喂数天后,在捕食性若虫的血淋巴中检测到大量 E. hormaechei,并伴随愈创木酚的产生(扩展数据图 5q,r)。相比之下,取食不含细菌猎物的捕食者既未检出 E. hormaechei 载量,也未检测到可测量的愈创木酚释放(扩展数据图 5q,r)。这些发现表明,通过同类相食获得的 E. hormaechei 能够成功在捕食者血淋巴中定植,并在传播后保留其产生愈创木酚的代谢能力。
综合来看,这些结果表明捕食性蝗虫可能从取食受伤若虫中获益,这很可能归因于积累的 E. hormaechei 所提供的微生物和免疫支持。
免疫防御与同类相食之间的权衡
我们的研究结果表明,愈创木酚在群居蝗虫中同时充当内部和外部信号,在内部发挥增强免疫防御的作用,在外部则促进同类相食。这种双重作用可能代表一种进化适应,在应对波动的生理条件(如损伤严重程度)时,平衡病原体抵抗与同种捕食的风险。为了探究损伤严重程度如何影响这些相反效应,我们使用钢针制造了尺寸递增的标准化损伤(等级 1–6)(图 6a 和扩展数据图 6a)。愈创木酚释放在损伤等级 1–3 时保持较低水平,但在等级 4–6 时显著增加(图 6b)。与这一模式一致,饥饿的群居捕食者在等级 1–3 时对完整猎物和受伤猎物没有偏好,但在等级 4–6 时优先攻击受伤若虫(图 6a,c)。后者的损伤程度接近于后足跗节丢失或五龄蝗虫咬伤所致的损伤(扩展数据图 6a)。猎物的移动距离和速度在不同损伤等级间无显著差异(扩展数据图 6b,c);这使我们能够排除活动能力差异作为捕食偏好的解释。这些结果表明,与严重损伤相关的高愈创木酚释放促进了同类相食攻击。
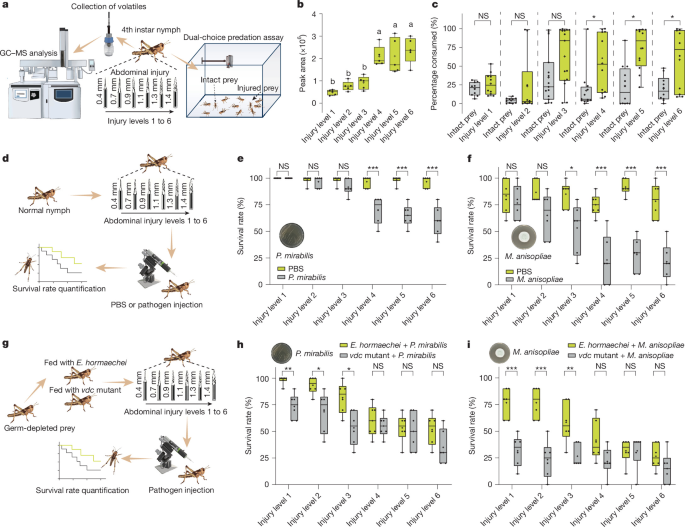
a,用于化学分析和双选择捕食实验的不同损伤尺寸的生成流程。b,不同损伤尺寸的若虫的相对愈创木酚排放量(每组 n = 5)。c,完整猎物与不同伤口尺寸的受伤猎物之间的捕食偏好(n = 10;4级,P = 0.041;5级,P = 0.019;6级,P = 0.013)。两种猎物被固定在竞技场的相对两端。d,评估损伤尺寸对PBS或病原体处理后存活率影响的流程。e,f,PBS处理后或感染P. mirabilis(e;4级,P < 0.001;5级和6级,P < 0.001)或M. anisopliae(f;3级,P = 0.015;4级,P < 0.001;5级和6级,P < 0.001)后的存活率,分别在3天和5天时量化(每组 n = 6 个重复;每个重复10只若虫)。g,评估在PBS或病原体处理前,接种野生型或vdc突变体E. hormaechei的去除共生菌若虫存活率的流程。h,i,注射PBS后或感染P. mirabilis(h;1级,P = 0.003;2级,P = 0.016;3级,P = 0.010)或M. anisopliae(i;1级和2级,P < 0.001;3级,P = 0.005)后的存活率(每组 n = 6 个重复;每个重复10只若虫)。数据为箱线图(箱体,四分位距;中心线,中位数;加号,均值;须线,最小值和最大值)。统计显著性采用单因素方差分析后接Tukey事后检验(b;不同字母表示P < 0.05)、双侧配对Wilcoxon符号秩检验(c)或双侧非配对Student t检验(e、f、h、i)进行评估。P < 0.001;P < 0.01;P < 0.05。
我们接下来研究了损伤严重程度如何影响病原体抗性(图6d)。感染P. mirabilis后,损伤程度为1-3级的若虫存活率与未感染对照组相当,而4-6级的若虫死亡率显著增加(图6e)。类似地,感染M. anisopliae后,损伤程度为1-2级时存活率与对照组相当,但在3-6级时显著下降(图6f)。这些结果表明,随着损伤严重程度增加,免疫保护变得不足。为了进一步评估微生物愈创木酚的贡献,我们感染了重新定植野生型或vdc缺陷型E. hormaechei的去除共生菌若虫(图6g)。在损伤程度1-3级时,携带野生型细菌的若虫在病原体攻击后的存活率显著高于携带vdc突变体的若虫(图6h,i)。然而,在损伤程度4-6级时,无论细菌基因型如何,死亡率仍然很高(图6h,i),表明在严重损伤条件下,愈创木酚介导的保护不足。
总之,这些结果揭示了免疫防御与同类相食风险之间依赖于损伤严重程度的权衡。轻微损伤后,微生物愈创木酚增强病原体抗性而不吸引同类捕食者,而严重损伤导致愈创木酚排放增加和同类相食吸引力增强,同时削弱了愈创木酚对感染的保护益处。
讨论
损伤诱导的信号协调蝗虫的免疫与同类相食
化学信号,无论是内源性还是外源性,都可能被窃听者利用以获得生态优势44。例如,应激相关的皮质类固醇和捕食者气味会诱导小鼠产生防御反应45,46,而昆虫信息素可以吸引拟寄生物或促进其回避47,48。在这里,我们证明微生物挥发性愈创木酚将蝗虫的免疫防御与同类相食行为联系起来。肠道和血淋巴共生菌 E. hormaechei 产生愈创木酚的量在受伤后迅速增加,同时伴随细菌在伤口部位积聚和局部免疫激活。这种反应类似于先天免疫的一个基本特征,即组织损伤会触发针对微生物入侵的快速防御49。然而,这种微生物相互作用会带来相当大的代价。适度产生愈创木酚会增强免疫防御,而严重损伤会使愈创木酚释放量升高到超过某一阈值,从而吸引同种个体并促进同类相食。因此,尽管愈创木酚来源于微生物,它仍作为一种种内类利他素线索发挥作用,使接收者受益而以受伤个体为代价。愈创木酚也可能作为一种损伤相关线索发挥作用,使受伤蝗虫能够预判感染并增强免疫防御,尽管这仍有待验证。对同类相食者而言,取食受伤的同种个体可能既提供营养益处,也提供有益的 E. hormaechei,从而可能增强免疫能力。严重受伤的个体也可能更容易被捕获。从细菌的角度看,愈创木酚介导的吸引可能通过同类相食相互作用促进向新宿主的传播,提示存在一种潜在微生物优势,值得进一步研究。
愈创木酚介导的吸引所具有的相特异性,可能反映蝗虫社会生态学的基本差异14。散居型蝗虫通常回避同种个体,很少发生同类相食,因此通过此类相互作用获得营养或有益微生物的机会有限14。它们相对较低的免疫能力36也可能增加接触受伤个体所带来的风险。因此,在散居型阶段,回避而非吸引可能更有利。
我们先前的工作确定 PAN 是一种抗同类相食信息素14。由于同类相食和 PAN 产生都随蝗群密度增加而增加,PAN 与愈创木酚的相反作用提示抑制性信号与吸引性信号之间存在动态平衡。在昆虫中,吸引性和厌恶性的气味通过不同的触角叶通路50进行处理,并在包括侧角51在内的高级中枢中整合。我们提出,PAN 介导的抑制通常限制同类相食,而受伤后愈创木酚释放升高可能使这种平衡转向吸引。这些相互竞争的信号如何被整合仍是一个重要问题。
我们确定 LmOR34 和 LmOR36 是愈创木酚检测的关键受体,破坏任一受体几乎完全消除嗅觉吸引和愈创木酚诱导的同类相食行为。值得注意的是,两种受体也能检测 2,4,6-TMP,后者诱导吸引但不引发同类相食。类似的配体依赖性行为分化在 D. melanogaster 中已有报道23,24,其中外周调谐和中枢回路整合参与气味辨别25,26。因此,愈创木酚和 2,4,6-TMP 可能产生不同的激活模式或招募其他受体,从而实现配体特异性的行为输出。此外,强烈的愈创木酚吸引仅限于群居若虫,提示嗅觉处理受发育阶段、性别和相态的调节。尽管蝗虫发育过程中触角叶的气味表征大体保守27,但状态依赖的中枢处理——如 D. melanogaster 中所示20,52——可能促成这些差异。触角叶肾小球的发育性扩张可能进一步影响气味编码。
我们的发现也有助于调和此前关于愈创木酚释放与行为功能之间的分歧。早期研究报告完整群居蝗虫和粪便中释放大量愈创木酚27,53,而我们实验中的基线释放量则低得多。这一差异可能反映采样条件的不同:早期研究中长时间的集体饲养可能促进了咬伤、损伤相关的微生物激活和挥发性物质积累20,而我们较短的收集时间避免了同类相食的相互作用。因此,密集群体中愈创木酚释放升高可能部分反映了社会性诱导的损伤,而非组成性产生。
早期研究还将愈创木酚描述为行为抑制剂10,与本文观察到的吸引作用相反。然而,嗅觉反应可随生理和生态背景而变化16,53。我们仅在饥饿的群居若虫中观察到显著的愈创木酚吸引,这与营养应激和蝗虫同类相食之间的强关联一致14。气味效价的状态依赖性变化在昆虫中已有充分记载;例如,饥饿逆转了 D. melanogaster 对乙酸的厌恶反应54。嗅觉回路中类似的生理调节可能解释愈创木酚的背景依赖性行为效应。
若干问题仍未解决,特别是 E. hormaechei 如何从血淋巴被招募到伤口部位,以及愈创木酚是否直接告知受伤宿主组织损伤。理解这些过程,结合愈创木酚和抗同类相食信号的神经整合,将进一步阐明微生物通讯如何协调免疫和行为反应。
Methods
Insects
群居型和散居型 L. migratoria 最初采集于中国广西,随后保存于中国农业科学院 Shenzhen 农业基因组研究所。为建立稳定的相品系,飞蝗在实验前至少在严格受控的密度条件下饲养三个实验室世代。群居型飞蝗以高种群密度饲养在通风笼(35 cm × 35 cm × 50 cm)中,每个笼内饲养 400–500 头一龄若虫。散居型飞蝗则单独饲养在圆柱形容器(高 10.8 cm,直径 8 cm)中,容器配有独立通风,以防止其接触与拥挤相关的视觉、触觉或嗅觉线索。所有飞蝗均饲养在标准化环境条件下,包括 14 h:10 h 光/暗周期、温度 30 ± 2 °C 和相对湿度 50 ± 5%。在整个饲养和实验期间,自由提供新鲜小麦幼苗作为食物。对于涉及将飞蝗或生物样本分配到不同处理组的实验,在适用情况下,个体或样本被随机分配到实验组。实验动物选自同一相、发育阶段和饲养条件,并且相关实验变量(包括取食状态、环境条件和实验程序)在各处理组之间保持标准化。对于双选择行为实验,在连续试验之间交替处理刺激和对照刺激的位置,以尽量减少位置偏差。在组别本质上由基因型、损伤状态或严重程度、微生物状态、病原体处理、发育阶段、时间点或其他实验施加条件定义的实验中,无法对定义条件进行随机分配。在这些实验中,比较使用在相关生物学特征上匹配、并在其他方面相同实验条件下饲养的动物或样本进行。无需进行基于协变量的额外分配,因为与每项实验相关的主要潜在协变量已由实验设计控制。
飞蝗捕食实验
写成 {{NAME_ab12cd34}} 这样的值是真实值的占位符。在回复和工具调用中,都完全按原样使用它们:在运行任何内容之前,它们会被填入真实值。不要要求验证它们,也不要用示例替换它们。
在通风良好的实验室条件下,于矩形亚克力实验场(20 cm × 10 cm × 10 cm)中进行双选择捕食实验,以量化群居型 L. migratoria 若虫的捕食偏好。以五龄群居型若虫作为捕食者,以特定发育阶段(根据实验为一龄至五龄)的群居型猎物若虫作为猎物。每次实验前,捕食者若虫饥饿处理 24 h,以标准化取食动机。为评估对完整猎物与受伤猎物的捕食偏好,将十只五龄群居型若虫作为捕食者引入实验场。将两只猎物若虫置于实验场相对两端:一只猎物个体保持完整,另一只受伤。损伤通过无菌手术刀机械致伤或受控同种攻击产生,并在腹表皮标准化位置形成大小相当的伤口。为消除运动能力差异可能带来的混杂效应,用胶带将猎物个体固定在固定位置。捕食实验所用捕食者或为完整个体,或接受过感觉操作,包括切除触角以破坏主要嗅觉输入、敲除嗅觉共受体 LmOrco 以损害气味受体介导的嗅觉,或去除复眼以破坏视觉输入。为检验损伤相关化学线索是否影响捕食决策,使用愈创木酚处理与溶剂处理的猎物进行双选择实验。在这些实验中,同时向 10 只捕食者呈现两只猎物若虫,一只涂抹 2 μl 的 10−4 愈创木酚,另一只仅用溶剂处理作为对照。为评估肠道微生物群对捕食偏好的贡献,我们使用菌群耗竭猎物进行了进一步双选择实验。为比较感染 E. hormaechei 的猎物与对照猎物,向十只捕食者呈现两只受伤猎物若虫,一只感染 E. hormaechei,另一只用无菌 LB 培养基处理。为确定细菌愈创木酚生物合成的作用,我们进一步比较了感染野生型 E. hormaechei 的受伤猎物与感染 vdc 突变株的受伤猎物之间的捕食偏好。所有微生物群相关实验均如上所述进行,不同之处在于实验期间允许猎物个体自由活动。在所有实验中,猎物个体均在引入实验场前立即称重。捕食 1 h 后,取出剩余猎物并重新称重。捕食偏好表示为每个猎物个体被消耗的猎物总身体质量的百分比。所有实验均进行视频记录,并使用 EthoVision XT 18.0 软件(Noldus Information Technology)分析。从记录中量化行为参数,包括攻击潜伏期、咬频和累计咬合持续时间,以及捕食者–猎物相互作用的空间分布。
双选择行为实验
损伤诱导信号协调蝗虫的免疫与同类相食
使用双选择嗅觉仪14,20评估 L. migratoria 对挥发性化合物的行为反应。该装置由两个顶部开口的塑料气味源容器(28 cm × 28 cm × 18 cm)组成,每个容器均与中央玻璃行为观察室(60 cm × 30 cm × 30 cm)无缝连接。每个容器顶部覆盖带孔塑料板(孔径1 mm、孔间距1 cm),以使气流均匀进入观察室。洁净空气由压缩空气钢瓶供给每个气味源容器,并依次经过活性炭过滤器和分子筛过滤以去除污染物。实验场地每侧的气流由流量计调节,流速恒定为4 l min−1。玻璃室围住带孔板上方区域,作为行为观察区。安装在腔室顶部的两个风扇产生稳定的垂直气流,确保气味均匀分布。位于风扇之间的高清数码摄像机连续记录蝗虫行为。所有实验均在配备通风系统、并由天花板安装的白色灯板提供均匀照明的专用观察室(60 cm × 70 cm × 80 cm)中进行。每次实验前,单只蝗虫饥饿24 h。将单只蝗虫轻轻引入观察室中央,并允许其自由探索10 min。每次实验中,对照气味(完整四龄猎物、石蜡油或 LB medium,取决于实验)被输送至嗅觉仪一侧,而测试气味则通过垂直气流输送至对侧。测试气味源包括6只完整或受伤的四龄群居若虫释放的挥发物、以10−7至10−2(稀释度)浓度施加的愈创木酚,或浓度为105 CFU ml−1的细菌悬液(用15 ppm香草酸培养)。气味物质施加于放置在相应气味源容器内的一张滤纸(3 cm × 3 cm)上。为尽量减少位置偏差,我们在连续试验之间交替气味物质侧和对照侧的位置。在测试8–10只个体后,容器用75%乙醇彻底清洗并通风30 min以消除残留气味。蝗虫行为以每秒30帧记录,实验场地每侧的总停留时间经人工量化并作为行为反应指标。对于群体选择实验,将五只群居若虫同时释放到观察室中。行为记录使用 EthoVision XT 18.0 software (Noldus Information Technology) 分析,群体在嗅觉仪每侧的平均停留时间用于定量分析。在双选择行为实验中,蝗虫行为记录10 min(600 s)。在此期间,大多数蝗虫停留在气味处理侧或对照侧。因此,对大多数个体而言,气味处理侧和对照侧的停留时间之和为600 s,这解释了为何相应的原始行为数据经常合计为600 s。
半野外捕食实验
蝗虫损伤诱导信号协调免疫与同类相食
为评估愈创木酚在半野外条件下是否促进同类相食,在户外网状围栏(1.8 m × 1.2 m × 1.5 m)中进行了捕食实验。每个围栏内放置 100 只 4 龄群居若虫作为猎物,以及 500 只 5 龄群居若虫作为捕食者。每次实验前,捕食者若虫均饥饿处理 24 h,以标准化取食动机。对照组中,所有猎物若虫均以 2 μl 溶剂处理;而在愈创木酚组中,每只猎物若虫的背侧胸部施用 2 μl 稀释度为 10−4 的愈创木酚。24 h 后,回收并计数存活的 4 龄若虫。同类相食率按 24 h 后损失的猎物若虫数占初始释放数的比例计算。
化学分析
采用 SPME 结合 GC–MS 分析蝗虫虫体、血淋巴、肠道来源微生物培养物及细菌培养物释放的挥发性化合物。对于全虫挥发性分析,将确定数量的群居飞蝗(L. migratoria,1 龄至 5 龄及成虫)或去除肠道菌群的 4 龄若虫放入 100 ml 玻璃瓶中。将 65-µm 聚二甲基硅氧烷/二乙烯基苯(PDMS/DVB)SPME 纤维(Supelco)通过瓶盖上的 PEAK 导引件插入瓶内顶空,以防止与昆虫直接接触。顶空挥发物于 30 °C 收集 1 h。
对于肠道及血淋巴相关微生物群落来源挥发物的分析,无菌采集肠道内容物和血淋巴样品,于 30 °C、200 rpm 振荡条件下在 LB 培养基中培养 12 h。将所得富集培养物转移至 20 ml 顶空瓶中,使用相同的 PDMS/DVB SPME 纤维收集顶空挥发物 30 min。对于产愈创木酚细菌菌株的筛选,将分离株接种于含 15 ppm 香草酸的 LB 培养基中,于 30 °C、200 rpm 振荡培养 12 h。随后取各细菌悬液 5 ml 转移至 20 ml 顶空瓶中,收集挥发性化合物 30 min。缺乏 vdc 的对照菌株的挥发物以相同方法分析。
对于血淋巴挥发物的直接分析,从 20 只群居 4 龄若虫中采集约 100 µl 血淋巴,转移至置于 20 ml 玻璃瓶中的滤纸(2 cm × 5 cm)上。将 65-µm PDMS/DVB SPME 纤维插入瓶内顶空,于 30 °C 收集挥发物 30 min。对于表达 vdc 基因簇的大肠杆菌(E. coli)菌株挥发性释放的分析,将细菌培养物在 LB 培养基中于 37 °C、200 rpm 振荡培养至 600 nm 处光密度达到 0.6–1.0。随后加入异丙基 β-d-1-硫代吡喃半乳糖苷至终浓度 0.5 mM,以诱导 Vdc 表达。诱导 6 h 后,补充香草酸至终浓度 15 mg l−1,继续孵育 6 h。随后取诱导培养物 5 ml 转移至 20 ml 顶空瓶中,使用相同的 SPME 纤维收集挥发物 30 min。
除微生物相关样品外,所有样品的挥发物均使用配备 WAX 毛细管柱(30 m × 0.25 mm 内径,0.25-µm 膜厚)的 Thermo Scientific Orbitrap GC–MS 系统进行分析。柱温程序为:初始于 50 °C 保持 3 min,以 5 °C min−1 升至 150 °C,再以 10 °C min−1 升至 260 °C,最后于 260 °C 保持 5 min。挥发性化合物通过与合成标准品比对以及将质谱与 NIST 2020 质谱库匹配进行鉴定。合成参考化合物购自 Sigma-Aldrich。
文章标题:损伤诱导的信号协调蝗虫的免疫与同类相食
正文: 使用配备 DB-5 毛细管柱(30 m × 0.25 mm 内径,0.25 µm 膜厚)的 SHIMADZU Nexis GC-2030 系统对来自微生物相关样本的挥发物进行了分析,样本包括 E. hormaechei、K. pneumoniae 和 E. coli 培养物。柱温箱温度在 40 °C 下保持 3 min,以 5 °C min−1 升至 150 °C 并保持 1 min,然后以 10 °C min−1 升至 260 °C,最终保持 5 min。化学鉴定通过与合成标准品比对及 NIST 库匹配完成。
无菌若虫的制备
为制备无菌的四龄 L. migratoria 若虫,我们将抗生素混合物(四环素、链霉素和环丙沙星)17,18,19 施加于经高压灭菌的小麦幼苗上,随后将其作为食物提供给二龄若虫。经抗生素处理的幼苗持续供应,直至昆虫到达四龄。在此阶段,随机选取六只若虫进行 GC–MS 分析,以验证产愈创木酚微生物群已被清除。仅将愈创木酚释放不再可检测到的若虫视为无菌,并用于下游实验。
LmORs 的克隆
从群居型 L. migratoria 若虫(共 10–20 对触角)中解剖触角并合并用于 RNA 提取。总 RNA 使用 TRIzol 试剂(Invitrogen)按照制造商说明进行分离。使用 HiScript III 1st Strand cDNA Synthesis Kit(Vazyme Biotech)从 5 µg 合并总 RNA 合成第一链 cDNA。气味受体(LmOR)编码序列的基因特异性扩增使用 2× Phanta Max Master Mix(Dye Plus)进行,引物基于触角转录组数据集设计。PCR 产物经 1.0%(w/v)琼脂糖凝胶电泳分离,切胶纯化后亚克隆至平末端克隆载体(TransGen Biotech)。所有插入片段均通过 Sanger 测序确认。对于每个 LmOR 基因,对至少四个独立细菌克隆的序列进行比对,以区分真实的序列多态性与 PCR 引入的伪影。
在 D. melanogaster at1 神经元中转基因表达 LmORs
将完整的气味受体编码序列克隆到 pUAST.attB 表达载体(由 J. Bischof 惠赠)中,使用 XbaI 和 NotI 限制性位点(New England Biolabs)。携带整合于 II 号染色体的 UAS-ORX 构建体的转基因 D. melanogaster 品系由 CAS Center for Excellence in Molecular Cell Science(https://sjzx.sibcb.ac.cn/Cn/Index/pageView/catid/105.html)生成。为实现 ORX 在 at1 嗅觉神经元中的靶向表达,我们将每个转基因 UAS-ORX 品系与 Or67d-GAL4 驱动品系(由 B. J. Dickson 提供)杂交。通过连续的遗传筛选和选择,我们建立了稳定的纯合转基因品系,其中气味受体转基因在 at1 神经元中特异性表达。转基因的存在和序列完整性通过成虫基因组 DNA 提取和测序确认。
单感器记录
为了表征蝗虫嗅觉受体在果蝇空神经元系统中的功能特性,我们按照已建立的方案并稍作修改14,20,对成年果蝇T1感器进行了单感器记录(SSR)。简言之,将成年果蝇固定在移液器吸头中,并将第三触角节稳定放置在玻璃盖玻片上。在Olympus BX51WI显微镜下以×100放大倍数观察感器亚型,并使用扩展数据表2中详述的诊断气味剂明确鉴定。通过将钨微电极插入目标感器基部,并将参考电极置于复眼,获取嗅觉感觉神经元活动的细胞外记录。信号使用连接到计算机的智能数据采集控制器(Syntech)进行放大(Syntech Universal AC/DC Probe)、数字化(每秒96,000个样本)和滤波(500–3,000 Hz)。神经尖峰数据使用AutoSpike软件(v.32, Syntech)提取和分析。
合成气味化合物在石蜡油(Sigma-Aldrich)中新近稀释。对于每次刺激,将10 µl稀释的气味剂新近加载到1-cm2的滤纸上,并插入玻璃巴斯德吸管中。气味递送通过将吸管尖端引入恒定、加湿的气流(600 ml min−1)中实现,该气流流经内径8 mm的不锈钢管,距果蝇触角1 cm。记录神经活动10 s,包括3-s的刺激前基线期和随后的0.5-s气味脉冲。嗅觉感觉神经元反应量化为相对于刺激前基线的动作电位频率(每秒尖峰数)的倍数变化。原始轨迹通过AutoSpike中基于振幅的尖峰分类进行处理,随后在Microsoft Excel中进行数据分析,并使用Adobe Illustrator CS(Adobe Systems)进行可视化。
此外,使用在果蝇空神经元中鉴定的功能配体,对蝗虫的锥形和毛形感器进行了SSR。将蝗虫
文章标题:Injury-induced signalling coordinates immunity and cannibalism in locusts
正文: LmOrco、LmOR34、LmOR36 和 LmOR39 突变体品系通过 CRISPR–Cas9 介导的基因组编辑构建,对已有方案14,20作了少量修改。从新鲜产下的卵荚中收集受精卵,用 75%(v/v)乙醇进行表面消毒,并排列在 1%(w/v)琼脂糖凝胶上用于显微注射。将 Cas9 蛋白(150 ng μl−1)和基因特异性单导 RNA(400 ng μl−1;靶序列见 Extended Data Table 3)共注射到单个胚胎中(每胚胎约 27.2 nl),使用配备定制拉制硼硅酸盐玻璃毛细管的纳升显微注射仪(SYS-PV850,World Precision Instruments),在体视显微镜下操作。注射后的胚胎在 30 °C 下孵育至孵化(约 12 天)。
G0 若虫在标准化实验室条件下饲养于网笼(35 cm × 35 cm × 50 cm)中,光周期为 14 h:10 h 明/暗,在 30 °C 和 60% 相对湿度下自由取食新鲜小麦幼苗。基因组 DNA 通过碱裂解法从成虫腿部组织提取(45 μl 的 50 mM NaOH 与 0.2 mM EDTA 混合液,95 °C 处理 20 min),随后用 5 μl 的 1 M Tris-HCl(pH 8.0)中和。取 2 μl 所得裂解液作为模板,用于目标基因组位点的 PCR 扩增。
PCR 反应(总体积 25 μl)包含 12.5 μl 2× Phanta Max Master Mix(Dye Plus)、各 1 μl 的基因特异性正向和反向引物(10 μM),以及 8.5 μl 无核酸酶水。热循环条件如下:95 °C 初始变性 3 min;38 个循环的 95 °C 15 s、60 °C 15 s 和 72 °C 45 s;随后 72 °C 最终延伸 5 min。
PCR 扩增产物进行 Sanger 测序,并通过与野生型参考序列比对来验证突变。确认的 G0 突变体与野生型个体杂交以产生 G1 后代,并使用一个明确的缺失等位基因追踪遗传。G1 杂合子相互交配,在 G2 代中通过位点特异性 PCR 基因分型鉴定纯合突变体(引物序列见 Extended Data Table 3)。通过反复相互交配建立稳定的纯合突变体品系,并通过测序确认。
Metagenomic sequencing
肠道内容物和血淋巴采集自本实验室的一个种群(Shenzhen,中国广东)。另采集了来自中国各地六个地理上不同的蝗虫种群,并使用 QIAamp Fast DNA Stool Mini Kit(Qiagen)按照制造商说明从蝗虫肠道内容物中提取总 DNA。DNA 浓度用 NanoDrop 2000 分光光度计(Thermo Fisher Scientific)测定,DNA 完整性通过琼脂糖凝胶电泳评估。基因组 DNA 使用 Covaris S220 Focused-Ultrasonicator(Covaris)片段化,并用 Agencourt AMPure XP 磁珠(Beckman Coulter)纯化。宏基因组文库使用 TruSeq Nano DNA LT Sample Preparation Kit(Illumina)按照标准方案制备。文库构建、高通量测序和初始数据处理由 OE Biotech 完成。
文库在 Illumina NovaSeq 6000 平台上测序,产生 150 bp 双端读长。原始测序读长(FASTQ 格式)使用 Trimmomatic(v.0.36)进行质量过滤,去除低质量碱基和接头序列。宿主来源的读长通过 Bowtie2(v.2.2.9)比对到 L. migratoria 参考基因组进行鉴定,随后被丢弃。剩余高质量、已去除宿主的读长使用 MEGAHIT(v.1.1.2)从头组装为宏基因组 scaffolds。Scaffolds 在内部间隙处拆分为连续序列(scaftigs),仅保留长度至少 500 bp 的 scaftigs 用于下游分析。
使用 Prodigal(v.2.6.3)从组装的 scaftigs 中预测开放阅读框,并将其翻译为氨基酸序列。为构建非冗余基因目录,使用 CD-HIT(v.4.5.7)以 95% 的序列一致度阈值和 90% 的覆盖度截断值对所有预测的开放阅读框进行聚类;每个聚类中最长的序列被选为代表基因。随后,使用 Bowtie2(v.2.2.9)以 95% 的一致度阈值将每个样本的 clean reads 回贴到非冗余基因集,以估计基因丰度。
通过比对 NR 蛋白数据库对非冗余基因集进行分类学注释。基于基因丰度推断物种丰度谱,并在域、界、门、纲、目、科、属和种等层级上汇总分类学丰度统计。
鉴定合成愈创木酚的微生物菌株
为鉴定负责愈创木酚生物合成的细菌菌株,我们从四龄群居型 L. migratoria 若虫的肠道内容物和血淋巴中分离微生物群落。洗脱的微生物悬液最初在 LB 培养基中于 37 °C 培养 12 h,以富集细菌群体。随后将培养物进行 10 倍系列稀释至 10−5,该稀释度代表仍能产生可检测愈创木酚的最高稀释度。取 10 µl 的 10−5 稀释液涂布到 LB 琼脂平板上,并于 37 °C 过夜培养。随机挑选单菌落并筛选愈创木酚产生。每种分离株均在 LB 培养基中培养,使用 SPME 纤维收集顶空挥发物,随后使用 GC–MS 分析。对确认产生愈创木酚的分离株进行全基因组测序,基因组分析将产生愈创木酚的菌株鉴定为 E. hormaechei。
E. hormaechei 中 vdc 基因簇的靶向缺失
采用基于同源重组的等位基因交换策略实现了 E. hormaechei 中 vdc 基因簇的靶向缺失。简言之,使用特异性引物(Extended Data Table 3)从野生型 E. hormaechei 基因组 DNA 中扩增出一个 DNA 片段,该片段包含 vdc 基因及其约 500 bp 的上游和下游同源臂。将所得片段克隆到 TOPO 载体中,该载体随后作为模板,使用引物 TOPO-Vdc-F 和 TOPO-Vdc-R(Extended Data Table 3)扩增包含氨苄青霉素抗性盒以及 vdc 基因上游和下游同源臂的序列。这些引物在其 5′ 端设计有 15 或 18 个核苷酸的突出端,分别与下游区域和卡那霉素抗性盒同源。使用引物 Loxp71F 和 Loxp66R(Extended Data Table 3)从 TOPOloxp-Kana 载体中扩增卡那霉素抗性盒。随后,将扩增的抗性盒与通过 TOPO-Vdc-F/R 扩增的片段通过同源重组融合,以生成环状质粒。
用 PstI 酶切重组质粒,并将回收的片段通过电穿孔
文章标题:损伤诱导的信号协调蝗虫的免疫与同类相食
正文: E. hormaechei 的 vdc 位点由三个串联排列的基因(vdcB、vdcC 和 vdcD)组成,它们共同编码功能性脱羧酶复合体。为了在异源宿主中重建该酶系统,我们克隆了完整的 vdc 基因簇并在 E. coli 中表达。设计引物以扩增全长基因簇,其两侧带有与双酶切 pET28a 表达载体兼容的同源臂(扩展数据表 3),从而能够以无缝重组方式插入完整的操纵子。扩增片段经纯化后,通过同源重组组装到线性化的 pET28a 骨架中。重组构建体在含卡那霉素的 LB 琼脂上筛选,并通过 Sanger 测序进行序列验证,以确保编码区的保真性。经序列确认的质粒被导入 E. coli BL21,该菌株经过优化用于可诱导的蛋白表达。转化子在抗生素选择下扩增,过夜培养物用于建立标准化的种子培养物以供表达试验使用。
为诱导 Vdc 复合体的产生,将种子培养物稀释到含卡那霉素的新鲜 LB 培养基中,培养至对数中期(600 nm 光密度:0.6–1.0),此时通过加入异丙基 β-d-1-硫代吡喃半乳糖苷(终浓度 0.5 mM)启动蛋白表达。诱导在较低温度(28 °C)下进行,以利于正确的蛋白折叠和复合体组装。在诱导前和诱导后收集样品,以便直接比较表达效率。收集细胞并在旨在保持蛋白溶解性的条件下裂解。沉淀重悬于含高盐甘油的结合缓冲液中,并补充蛋白酶抑制剂和溶菌酶,随后在冰上受控超声处理。通过离心分离可溶性和不溶性蛋白组分,从而评估 Vdc 表达水平和溶解性。通过 SDS–PAGE 分析评估 Vdc 蛋白的表达和分配。取等量的可溶性和不溶性组分变性,在预制聚丙烯酰胺凝胶上分离,并通过 Coomassie Brilliant Blue 染色显色。记录凝胶图像以记录重组 Vdc 蛋白的表达及其在可溶性组分和包涵体组分之间的分布。
蝗虫病原体感染与存活测定
为评估病原分离株在蝗虫中的毒力,分别向四龄若虫注射 P. mirabilis(200 nl,104 CFU ml−1)、M. anisopliae(200 nl,106 CFU ml−1)或 E. faecalis(200 nl,104 CFU ml−1)。对照昆虫注射等体积的磷酸盐缓冲盐水(PBS)。每 12 小时间隔监测存活情况,每个处理组由 60 或 80 只若虫组成。
为确定 E. hormaechei 产生愈创木酚是否增强损伤后的宿主存活,我们在受控的微生物、饮食、遗传和损伤条件下进行了蝗虫病原体攻毒试验。首先构建去菌若虫以消除常驻微生物群的混杂效应。将小麦幼苗浸入无菌水(对照)或补充有野生型 E. hormaechei(103 CFU ml−1)、vdc 突变株(103 CFU ml−1)或愈创木酚(10−4)的无菌水中。在这些饮食上取食 24 小时后,对若虫进行标准化的腹部创伤,随后在伤口部位接种 P. mirabilis(200 nl,104 CFU ml−1)、M. anisopliae(200 nl,106 CFU ml−1)或 E. faecalis(200 nl,104 CFU ml−1)。每 12 小时间隔监测存活情况,每个处理组包含 100–120 只若虫。为直接将死亡结果与感染严重程度联系起来,我们收集了接受相同饮食处理的独立队列,用于在接种后 2 天(P. mirabilis 和 E. faecalis)或 4 天(M. anisopliae)进行病原体载量定量。
为检验愈创木酚和 E. hormaechei 的保护作用是否依赖宿主先天免疫信号传导,我们在经双链 RNA(dsRNA)处理的若虫中进行了平行感染实验,靶向 Toll 和 Imd 通路的组分。dsRNA 注射后 12 h,使用 WPI UMP3 微量注射仪递送 P. mirabilis(100 nl,104 CFU ml−1)或 M. anisopliae(100 nl,106 CFU ml−1)。每 12 h 记录存活情况,每个处理 80–100 只若虫,并在接种后 3 天(P. mirabilis)或 5 天(M. anisopliae)对相应队列取样以检测血淋巴病原载量。
为进一步检验群居捕食性若虫是否从取食携带更高水平 E. hormaechei 的受伤同种个体中获益,给去除菌群的五龄捕食性若虫喂食等量的 E. hormaechei 定植猎物或去除菌群的猎物。取食后,通过注射 P. mirabilis(300 nl,104 CFU ml−1)或 M. anisopliae(300 nl,106 CFU ml−1)对捕食者进行攻击,并以 12 h 间隔监测存活情况,每个处理 100–120 个个体。
为评估损伤严重程度如何调节免疫防御并与微生物保护相互作用,我们在病原暴露前造成不同大小的腹部伤口(0.4 mm(1 级)至 1.4 mm(6 级))。将 P. mirabilis(200 nl,104 CFU ml−1)或 M. anisopliae(200 nl,106 CFU ml−1)直接接种到伤口部位。每个网笼(直径 15 cm,高 17 cm)饲养 10 只若虫作为一个生物学重复,每个处理 6 个重复。P. mirabilis 在 3 天时、M. anisopliae 在 5 天时量化存活情况。为确定微生物愈创木酚产生对伤口大小依赖性免疫的具体贡献,在分级损伤和病原攻击前,用野生型或 vdc 突变型 E. hormaechei 定植去除菌群的四龄若虫,实验设计和存活终点相同。
病原载量定量
蝗虫血淋巴中的病原载量通过 qPCR 定量,以评估不同实验条件下的感染强度。从单个蝗虫采集血淋巴(100 μl),并按照制造商说明使用 FastPure Blood/Cell/Tissue/Bacteria DNA Isolation Mini Kit(Vazyme)提取基因组 DNA。qPCR 在 CFX96 Real-Time PCR System(Bio-Rad)上进行。靶向病原和蝗虫参考基因的基因特异性引物列于 Extended Data Table 3。每个 qPCR 反应在 20 μl 总体积中进行,包含 2 μl DNA 模板、10 μl Taq Pro Universal SYBR qPCR Master Mix(Vazyme, China)、0.8 μl 引物混合液(各 10 μM)和 7.2 μl 无核酸酶水。每次运行均包括无模板对照,以便监测潜在试剂污染。热循环条件包括初始变性,随后 40 个扩增循环:95 °C 10 s、55 °C 或 60 °C 30 s(取决于引物组)和 72 °C 20 s。我们在每次运行结束时进行熔解曲线分析以确认扩增特异性。所有 qPCR 实验均对每个样品进行三个技术重复。
病原和宿主基因拷贝数的绝对定量使用由纯化质粒标准品生成的标准曲线进行。对应每个目标基因的 PCR 扩增子用特异性引物扩增(Extended Data Table 3),并使用 EasyPure Quick Gel Extraction Kit(TransGen)进行凝胶纯化,克隆到平末端载体中,并转化到 E. coli DH5α 感受态细胞中。质粒使用 HiPure Plasmid EF Mini Kit(Magen)提取,并使用 NanoDrop 1000 分光光度计定量。制备每个质粒标准品的五倍系列稀释液,范围从 2 ng μl−1 到 6.4 × 10⁻⁴ ng μl−1,并用于构建标准曲线以计算基因拷贝数。
病原抑菌圈实验
我们用抑菌圈实验检测了 guaiacol 的抗菌活性,以评估其是否直接抑制病原体生长。用无水乙醇配制 guaiacol 原液(5 × 10⁻²,v/v),仅用乙醇作为溶剂对照。制备 LB 琼脂(用于细菌生长)和马铃薯葡萄糖琼脂(用于真菌生长),并通过高压灭菌进行灭菌。待熔融培养基冷却至约 70 °C 后,向 100 ml 熔融培养基中加入 200 μl guaiacol 原液或无水乙醇,随后轻轻混匀,并将混合物倒入平板中。
琼脂凝固后,分别将 P. mirabilis 和 M. anisopliae 接种到 LB 和马铃薯葡萄糖琼脂平板的中央。平板在 30 °C 恒温条件下培养。通过测量菌落直径对病原体生长进行定量:P. mirabilis 在 12 h 时测量,M. anisopliae 在 7 天时测量;不同的测量时间反映了细菌和真菌病原体不同的生长速率。
E. hormaechei 载量定量
为确定 E. hormaechei 是否对宿主损伤作出响应,我们在四龄若虫腹部制造人工伤口。伤后 2 h、4 h、6 h 和 8 h 从伤口部位采集血淋巴,以创伤后立即采集的样本作为 0 h 对照。每个生物学重复从 20 只个体蝗虫中采集 100 µl 血淋巴。共进行三个生物学重复。采集的血淋巴用于 DNA 提取和细菌定量。
为评估 E. hormaechei 是否在伤口部位积聚,我们再次在四龄若虫腹部制造人工损伤。伤后 6 h,从每只蝗虫的伤口部位和未受伤的前胸背板采集血淋巴。将来自 20 只蝗虫的 100 µl 血淋巴合并为一个生物学重复,共进行八个重复。随后按所述方法处理样本以进行 DNA 提取和细菌定量(引物序列见 Extended Data Table 3)。
采集了中国境内七个地理上不同的蝗虫种群,并解剖蝗虫肠道内容物用于 DNA 提取。每个生物学重复从约 15 只个体蝗虫中采集 200 mg 肠道内容物。共进行三个生物学重复。采集的肠道内容物用于 DNA 提取和细菌定量。
转录组测序与分析
为确定 guaiacol 是否通过激活蝗虫免疫反应增强对病原微生物的抗性,我们对不同处理条件下的伤口组织进行了转录组分析。制备无菌蝗虫若虫,并在腹部造成标准化人工伤口。随后用 PBS(对照)或 guaiacol(10−4,v/v)处理伤口部位。在处理后 3 h、6 h 和 9 h,从 PBS 和 guaiacol 暴露的蝗虫中解剖并采集伤口组织。对于后续感染实验,在初始 guaiacol 或 PBS 处理后 3 h,将 P. mirabilis(200 nl,104 CFU ml−1)接种到伤口部位。在处理后 3 h,从 PBS 和 P. mirabilis 暴露的蝗虫中采集伤口组织。
损伤诱导的信号传导协调蝗虫的免疫与同类相食
使用 TRIzol 试剂(Invitrogen)从伤口组织中提取总 RNA。使用 NanoDrop 分光光度计和 Agilent 2100 Bioanalyzer(Thermo Fisher Scientific)评估 RNA 质量和浓度。按照制造商说明,使用 NEBNext Ultra RNA Library Prep Kit for Illumina(NEB)构建 RNA 测序文库。在 Agilent 2100 Bioanalyzer 上质检后,合格文库使用 phi29 扩增以生成 DNA 纳米球,每个 DNA 纳米球包含超过 300 个单一 DNA 分子的拷贝。将 DNA 纳米球加载到图案化纳米阵列上,并在 DNBSEQ 测序平台上生成 100 bp 的双端读段。
使用 SOAPnuke(v.1.4.0)处理原始测序读段,以去除接头序列和低质量读段。随后使用 HISAT2(v.2.0.4)将干净读段比对到参考基因组。参考基因组序列和基因注释从相应基因组数据库获得。为量化基因表达,进一步使用 Bowtie2(v.2.2.5)将干净读段比对到参考编码基因集,并使用 RSEM(v.1.2.12)估计转录本丰度,归一化为每百万比对读段中每千碱基转录本的片段数。
使用基于负二项广义线性模型的 DESeq2 对愈创木酚处理样本和 PBS 处理样本进行差异基因表达分析。调整 P 值(Benjamini–Hochberg 校正)小于或等于 0.05 且绝对 Q 值(调整 P 值)小于或等于 0.05 的基因被视为差异表达。使用 clusterProfiler R 包(v.4.8.1)对差异表达基因进行功能富集分析,并校正基因长度偏倚。校正 P < 0.05 的 Kyoto Encyclopedia of Genes and Genomes(KEGG)通路被视为显著富集。KEGG 注释从 KEGG 数据库获得,用于对与免疫和信号通路相关的转录变化进行背景关联分析。
RNAi 实验
为评估免疫相关基因对病原体抗性的功能贡献,我们使用基因特异性 dsRNA 进行 RNAi。使用 TRIzol 试剂(Invitrogen)从蝗虫中提取总 RNA,并使用 HiScript III 1st Strand cDNA Synthesis Kit(Vazyme)从 1 µg 总 RNA 合成第一链 cDNA。使用含有 T7 启动子序列的基因特异性引物(Extended Data Table 3),通过 PCR 扩增每个目标基因约 500 bp 的片段。使用 T7 RiboMAX Express RNAi System(Promega, USA)合成 dsRNA,以靶向 GFP 的 dsRNA 作为阴性对照。
使用 WPI UMP3 显微注射仪将 dsRNA 注射到四龄若虫中。为评估敲低效率,收集除肠道外的腹部组织,并通过实时 qPCR 定量转录本水平。核糖体蛋白 L32(RPL32)和 β-actin 用作内参基因。每个实时 qPCR 反应在 20 µl 总体积中进行,包含 2 µl 模板 cDNA、10 µl Taq Pro Universal SYBR qPCR Master Mix(Vazyme, China)、0.8 µl 引物混合物(10 µM)和 7.2 µl 无核酸酶水。扩增进行 40 个循环,条件如下:95 °C 10 s,55 °C 或 60 °C 30 s,72 °C 20 s。每个样本进行三个技术重复。每次运行均包含无模板对照,并进行熔解曲线分析以确认扩增特异性。相对基因表达水平使用 2−ΔΔCt 方法计算。
在确认基因敲低有效后,我们向另一个独立的四龄若虫队列(n = 80 至 n = 100)注射了 dsRNA,随后对其进行了病原体感染测定。记录经 dsRNA 处理的若虫与对照若虫的存活率,以确定所靶向基因对抵御病原体感染的贡献。
蝗虫运动能力生物测定
为评估捕食实验中受伤严重程度是否影响猎物运动能力,我们量化了具有分级损伤程度(1–6 级)的猎物若虫的运动表现。将受伤的猎物若虫逐一引入通风良好的场地(56 cm × 28 cm × 18 cm),并在标准化条件下使用高清摄像机记录其运动轨迹。随后使用 EthoVision XT 18.0 软件对录制的视频进行分析,以量化每个损伤程度的总运动距离和平均运动速度。
统计与图表制作
所有统计分析均使用 SPSS 26.0 进行。统计分析采用单因素方差分析(one-way ANOVA)并继以 Tukey 事后检验、单样本 Wilcoxon 符号秩检验或双尾非配对 Student's t 检验。初步图表使用 Origin 2018 软件(https://www.originlab.com/)构建,曲线使用 GraphPad Prism 9.0 拟合,图表使用 Adobe Illustrator 2025 绘制。
报告摘要
有关研究设计的更多信息,请参见本文链接的 Nature Portfolio Reporting Summary。