 Newshot
Main
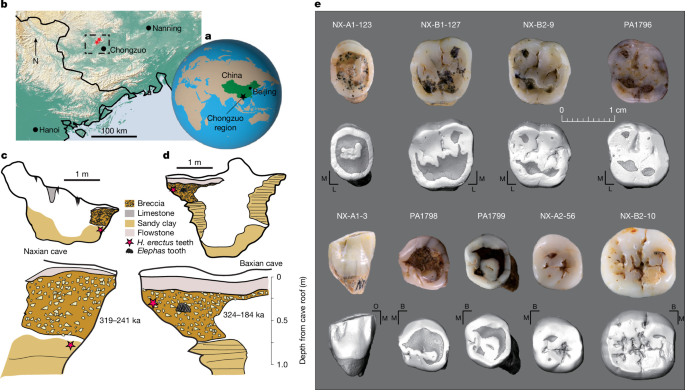
亚洲的直立人(Homo erectus)存在年代可追溯至150万年前(Ma)以上(若上陈石制品系直立人所制,则可能早至2.1 Ma)14,化石证据来自20余处地点、数百件标本,分布范围从中国北方的周口店到中爪哇的桑吉兰14,15。在整个大陆尺度上,中更新世期间直立人与丹尼索瓦人(H. longi)9,16 共存,后者是一支目前已知化石分布于阿尔泰山(丹尼索瓦洞)、青藏高原与中国北方直至东南亚(澎湖水道)及东南亚大陆老挝的古人类群体1,7,9,17,18,19,20,21。直立人化石的时空分布并不均一,已知的晚中更新世至早晚更新世标本仅有少数几件,且均位于岛屿东南亚8,11。直立人最晚的出现记录来自印度尼西亚爪哇岛昂栋的晚更新世遗址,年代为117–108千年前(ka)8。相比之下,在大陆地区,没有可靠定年晚于400 ka的直立人化石。长阳洞和巢县洞的标本被归入直立人,对这些地点动物遗骸和碳酸盐的铀系(U–Th)定年分别给出含古人类层位的年代范围为196–143 ka和200–160 ka11,22,23。然而,由于这些均为最小年龄,长阳和巢县直立人标本的实际年代可能显著更早。此外,目前仅有少数东亚直立人标本获得了分子数据,且均定年在约420–400 ka(文献13),这限制了我们理解不同直立人群体之间以及它们与其他近同时期古人类群体之间的演化关系。为解决这些科学问题,我们报告了中国南方广西壮族自治区的八仙洞和那仙洞古人类牙齿的分子数据与形态学分析(图1)。这些古人类牙齿是在近期考古发掘中发现的,发掘揭示出含哺乳动物化石的角砾岩,化石总数合计超过18,000件,包括剑齿象(Elephas)、猩猩(Pongo)和剑齿象(Stegodon)。两处洞穴位于同一喀斯特谷地走廊内,相距约15 km,沉积背景与动物群组成高度相似。对沉积物进行后红外红外激发光释光定年和单颗粒石英光释光定年、对牙齿进行铀系定年、对碳酸盐进行铀系定年以及对牙齿进行铀系-电子自旋共振联合定年所获得的43个放射性年代数据,经贝叶斯模型约束,将八仙洞的年代限定为324–184 ka,那仙洞的年代限定为319–241 ka,使这两个组合在年代上彼此无法区分12。
文章标题:中更新世晚期直立人存在于东亚大陆的证据
正文: a,崇左研究区位于中国南方广西壮族自治区,以黑色星号标出。b,崇左市的位置,及其与构成本地貌的密集喀斯特(岩溶地貌)网络的关系。研究区域以黑色虚线框标出,洞穴位置以红色星号标出。c,那仙洞化石洞室的地层剖面,显示流石、角砾岩和下伏砂质黏土的位置,以及显示直立人牙齿位置和该遗址模拟年龄范围的综合地层。d,巴仙洞化石洞室的地层剖面,附综合地层,显示直立人和Elephas牙齿的位置及该遗址模拟年龄范围。a–d重绘自参考文献12,Springer Nature Limited。e,牙齿图像。NX-A1-123,P4;NX-B1-127,M1;NX-B2-9,M1;PA1796,M2;NX-A1-3,C1;PA1798,P3;PA1799,P4;NX-A2-56,P4;NX-B2-10,M2。M,近中;L,舌侧;O,咬合面;B,颊侧。
牙齿形态学分析
来自巴仙洞(标本前缀PA)和那仙洞(标本前缀NX)的九颗古人类牙齿代表不同的牙位(NX-A1-123(第四上前磨牙,P4)、NX-B1-127和NX-B2-9(第一上磨牙,M1)、PA1796(M2)、NX-A1-3(第一下犬齿,C1)、PA1798(P3)、NX-A2-56和PA1799(P4)、NX-B2-10(M2);图1和补充说明1)。这两个遗址的所有标本均表现出相对较大的尺寸,落在直立人的尺寸分布范围内或接近该范围,但也与亚洲中更新世非直立人型古人类及尼安德特人(H. neanderthalensis)有重叠,并处于更新世和全新世现代人(H. sapiens)变异范围的高端(补充说明1和补充数据集1)。那仙洞的两颗M1牙齿(NX-B1-127和NX-B2-9)在形态上彼此接近,可能是同一个体的对侧牙。
在这些牙齿中,有八颗显示出通常见于直立人标本的特征组合,例如不对称的P4齿冠24(NX-A1-123)、短的上磨牙齿冠且咬合面轮廓呈方形至略菱形24,25,26(NX-B1-127和NX-B2-9)、C1齿冠舌面和颊面均具有近中和远中边缘嵴26(NX-A1-3),同时C1颊侧有近中和远中纵沟、下前磨牙轮廓不对称(PA1798、PA1799和NX-A2-56),P3齿冠远中舌角略微突出,P4齿冠上三角座窝发育良好24,27、矩形且短的M2齿冠(NX-B2-10)伴有复杂的原附尖表现,以及具有两个根管的远中M2牙根24。利用微型计算机断层扫描研究牙齿内部结构,在纳仙和巴仙的直立人牙齿中可检测到沂源、和县和周口店中更新世直立人特有的树枝状釉质–牙本质界(EDJ)和架状原附尖24,尽管形式更为简化(补充图3–5、14和15)。
文章标题:东亚大陆晚中更新世直立人的证据
正文: 这一特征组合未见于非直立人的中国中更新世古人类牙齿(如金牛山、华龙洞和许家窑,这些可能属于龙人)6,9,17,24,28,也不见于 H. neanderthalensis 或 H. sapiens,后两者各自表现出自身的衍生特征,包括次尖向舌侧扩展更多或更为退化、犬齿齿冠和 EDJ 形态更简单(尽管部分 H. neanderthalensis 犬齿显示出发育的中央结节,而纳贤犬齿中不存在该结构),或下臼齿齿冠更圆且更高6,24,28。在三维釉质厚度方面,NX-B2-10——唯一适合进行三维釉质厚度分析的标本——落在 H. erectus 的分布范围内,并与 H. sapiens 不同,尽管其接近 H. neanderthalensis 范围的边界(补充说明 1)。
为定量表征坝县和纳贤牙齿的形态并进一步确认其分类归属,我们对 EDJ 进行了几何形态测量分析。我们将其与一个广泛的时间—地理样本进行比较,包括非洲和亚洲的 H. erectus、欧洲的 H. neanderthalensis、老挝的 H. longi,以及非洲和欧亚大陆更新世至全新世的 H. sapiens。结果证实了非测量性描述,其中七颗牙齿的 EDJ 被明确归类为 H. erectus,并在统计上与 H. neanderthalensis 和 H. sapiens 不同(图 2、扩展数据表 1 和补充说明 2)。P4 标本 NX-A2-56 在统计上是所有对比组中的离群值(图 2d)。尽管如此,其非测量性形态特征与 PA1799 以及来自周口店和西川的早期中国 H. erectus 标本最为相似22,其特征是相对于颈缘轮廓,中央窝在颊舌方向上受压缩,并显著存在 EDJ 颊侧近中面的垂直皱纹(补充图 13)。该标本还具有发育良好的下跟座,这是人属内的祖征特征,因此支持将其归入 H. erectus。因此,有八件标本在测量性和非测量性形态分析中均被鉴定为 H. erectus。
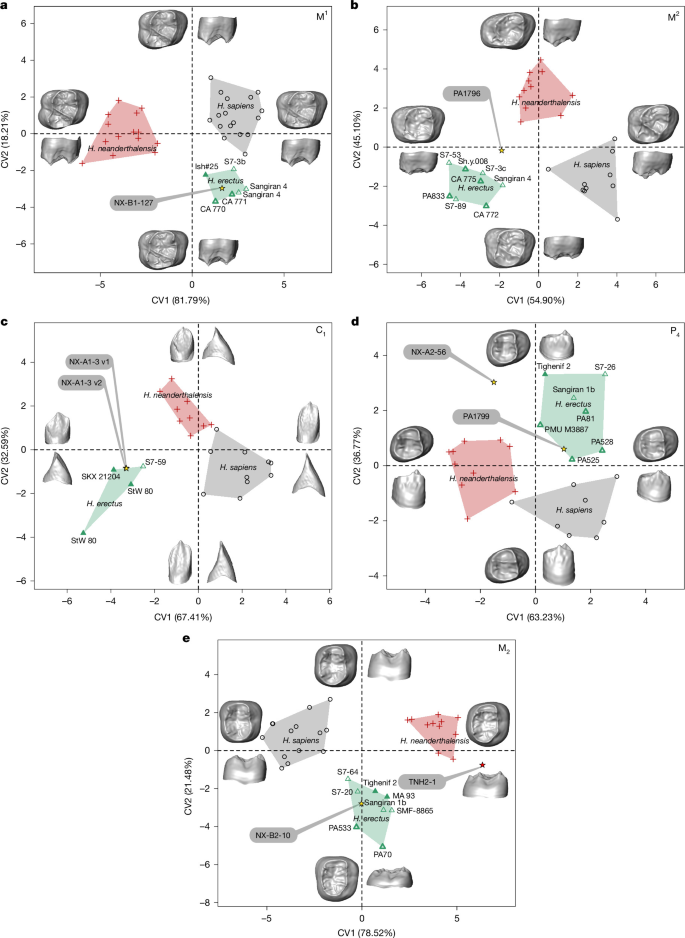
a–e,坝县和纳贤 M1(a)、M2(b)、C1(c)、P4(d)和 M2(e)的 EDJ 形状典型变量(CV)分析双变量图,与 H. erectus s.l.、H. neanderthalensis 和 H. sapiens 进行比较。对于 H. erectus,实心三角形代表非洲早更新世标本,细三角形代表印度尼西亚早更新世标本,粗三角形代表中国中更新世标本。各轴末端的曲面示出沿各成分的极端形状。相关统计信息见扩展数据表 1。
相比之下,来自坝县洞穴的标本 PA1796(M2)显示出具有菱形轮廓的短 EDJ,形成介于 H. erectus 和 H. neanderthalensis 之间的中间形状,并被判定为与 H. erectus 范围的极端界限相容(P = 0.068)(图 2 和扩展数据表 1)。然而 PA1796 表现出非直立人的非测量性特征(补充说明 1 和 2)。该标本也不能舒适地归入 H. neanderthalensis 或 H. sapiens 的形态变异范围内(图 2b 和扩展数据表 1)。与 H. erectus 相比,它具有更高的齿质角,更简单的三角窝和下跟窝(即没有 H. erectus 典型的皱褶 EDJ 表面),并且在咬合视图中 EDJ 轮廓更不规则;补充说明 1 和 2)。它还因具有更发育且向舌侧扩展的下跟而不同于 H. sapiens 和 H. erectus。
来自中国南方的内源性蛋白质组
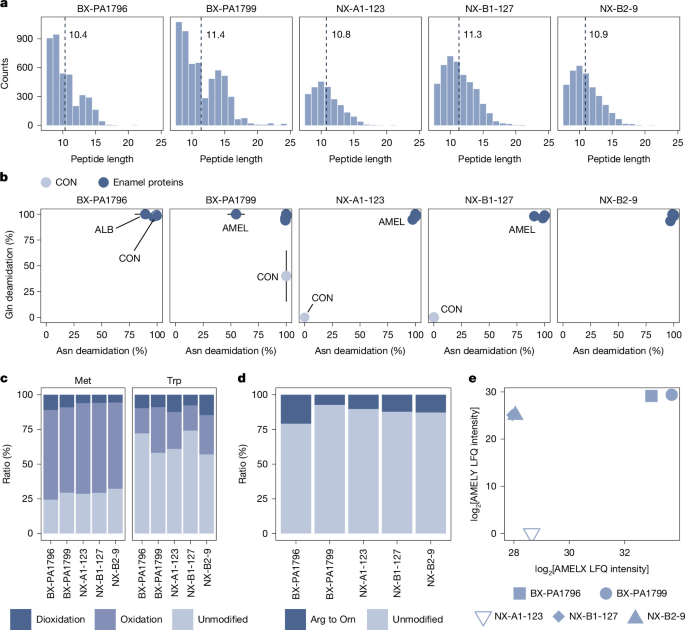
为确定这些古人类牙齿的身份,我们首先探究了Naxian cave五个动物标本中的蛋白质保存情况。这项比较分析显示,该遗址保存了牙釉质蛋白质组,但未能可靠检测到内源性牙本质蛋白(补充说明3和4以及补充数据集2)。随后,我们从Naxian cave的三颗古人类牙齿(P4,NX-A1-123;M1,NX-B1-127;以及M1,NX-B2-9)和Baxian cave的两颗古人类牙齿(M2,PA1796;以及P4,PA1799)中提取了牙釉质蛋白。对于Baxian cave的两个标本,还采集了少量牙本质样本(方法)。结合MaxQuant、PEAKS和pFind的蛋白质组数据分析表明,全部五颗牙齿中均回收到了内源性牙釉质蛋白质组。牙釉质蛋白质组以来源于釉原蛋白、成釉蛋白和釉蛋白的肽段为主,所有牙齿中还回收到若干其他蛋白质(扩展数据表2和补充说明4)。相比之下,来源于常见实验室污染物和人体接触的肽段丰度较低(扩展数据图1a)。Unipept分析显示,肽段身份在很大程度上特异于哺乳纲(在纲水平上为99.5%)和灵长目(在目水平上为98.4%),仅有两个肽段序列同时与真菌的UniProt条目完全匹配,三个肽段序列同时与细菌的UniProt条目完全匹配。这表明所鉴定的牙釉质特异性肽段的序列特异性很高,并且对于所回收的肽段群体而言,将非灵长类序列错误归入灵长类蛋白质序列条目的可能性很低(扩展数据图1b,c)。回收的牙釉质肽段平均肽段片段长度较短(图3a),脱酰胺达到饱和水平(图3b),其他成岩翻译后修饰的频率升高(图3c,d)。N端谷氨酰胺要么发生脱酰胺(根据所用标本和分析软件的不同,为55%至80%),要么转化为焦谷氨酸(根据所用标本和分析软件的不同,平均为15%至45%),极少有N端谷氨酰胺未发生成岩修饰(补充表26)。它们还在AMELX(Ser32)、AMELY(Ser66)、AMBN(Ser33、Ser41、Ser43、Ser262)、ENAM(Ser54、Ser191、Ser216)和AMTN(Ser116)上含有可信的丝氨酸磷酸化位点(定位概率≥0.95)。丝氨酸磷酸化是一种体内蛋白质修饰,此前在其他古人类牙釉质蛋白的相同氨基酸位置上也观察到过29。在PA1799的牙本质提取物中鉴定出大量蛋白质,但仅能确认来源于COL1A1和COL1A2的肽段为内源性来源,这两种蛋白是骨骼和牙本质中存在的主要结构胶原(补充说明4)。蛋白质组和肽段组成、体内修饰的存留以及成岩修饰的程度(包括广泛的蛋白质主链水解)均与先前发表的更新世古人类牙釉质蛋白质组一致7,29,30,31,32,33,34,35。
文章标题:东亚大陆中更新世晚期直立人的证据
正文: a,牙釉质蛋白提取物的肽段长度分布;标注了每个样本的平均肽段长度。b,天冬酰胺(Asn)和谷氨酰胺(Gln)的蛋白质水平脱酰胺化。此处,0% 表示无脱酰胺化,100% 表示完全脱酰胺化。误差棒表示 ±1 s.d.。PA1796-ALB:n = 8(Asn)和 n = 9(Gln);PA1796-AMEL:n = 104(Asn)和 n = 78(Gln);PA1799-CON:n = 12(Asn)和 n = 8(Gln)。CON,污染蛋白。c,甲硫氨酸(Met)和色氨酸(Trp)的氧化频率。d,精氨酸(Arg)向鸟氨酸(Orn)修饰的频率。e,基于 AMELX 和 AMELY 特异性肽段的非标记定量进行的遗传性别判定。所有面板均基于 MaxQuant 数据分析,并在适用时使用肽段强度。
五颗牙齿中有四颗——PA1796、PA1799、NX-B1-127 和 NX-B2-9——含有与 amelogenin-Y 唯一匹配的肽段,该蛋白由 AMELY 转录翻译而来,而 AMELY 是位于人科 Y 染色体上的基因(图 3e 和扩展数据图 2)。因此,这些牙齿来自遗传学上的男性个体36,37,38。相反,对于第五颗牙齿 NX-A1-123,尽管该牙齿的蛋白质保存总体相似,但在三种搜索策略中均未鉴定到此类肽段。因此,我们将该样本鉴定为遗传学上的女性。总之,这表明来自纳贤洞和坝贤洞的五颗人科牙齿(四男一女)中保存并鉴定出了内源性肽段。
一个新的直立人谱系
我们的古蛋白质组数据分析策略并行使用了 PEAKS、pFind 和 MaxQuant。所用各搜索策略之间的序列覆盖度和蛋白鉴定高度一致(补充说明 3 和 4)。PEAKS、pFind 和 MaxQuant 的序列重建在所有恢复的氨基酸位置上均一致,仅有一个位置例外,该位置随后被从各样本生成的共识序列中排除。总计可重建 566 至 1,440 个(包括 I 型胶原蛋白)或 556 至 808 个(不包括 I 型胶原蛋白)氨基酸位置(扩展数据表 2(tab 1))。在亚洲背景下,这一序列覆盖度与以下样本的牙釉质蛋白质组相当:中更新世丹尼索瓦人澎湖下颌骨(695 个位置)7、中更新世丹尼索瓦人 Tam Ngu Hao 2(558 个位置)6、丹尼索瓦人哈尔滨牙釉质蛋白质组(903 个位置)、周口店和孙家洞的中更新世直立人样本(440–599 个位置)13,以及东亚和东南亚更新世 Pongo 中恢复的氨基酸位置范围32,33,但高于华南早更新世 Gigantopithecus 样本30 和和县两个中更新世直立人样本13 所重建的位置数。在各人科牙齿生成的共识序列中,我们未发现任何 Pongo 属特有的衍生位置,从而确凿排除了将这些牙齿归入猩猩谱系的可能(表 1)。
已知尼安德特人、丹尼索瓦人和现代人类之间牙釉质蛋白的序列变异较低29,39,40。对于此处重建的蛋白区域,在我们的参考数据库中,唯一可用的丹尼索瓦人参考蛋白质组有两个特有的衍生替换(AMBN M273V 和 COL1A2 R996K;表 1)。对于 AMBN M273V,来自纳贤洞和坝贤洞的全部五个个体均携带祖先型甲硫氨酸,而唯一对 COL1A2 R996K 有覆盖的个体 PA1799 在该位置也携带祖先型精氨酸。在所研究的化石样本获得的数据中,未覆盖早更新世人科、尼安德特人或现代人类特有的其他氨基酸位置。
文章标题:中更新世晚期直立人存在于东亚大陆的证据
正文: 我们的分析策略揭示,在成釉蛋白(ameloblastin,AMBN,UniProt:Q9NP70)第253位存在一个单氨基酸多态性,即丙氨酸被甘氨酸取代。该替换在Naxian和Baxian洞穴的初始PEAKS分析中被独立检出,随后经MaxQuant和pFind分析确认(图4和扩展数据图3)。所研究的五颗古人类牙齿中有四颗(NX-A1-123、NX-B1-127、NX-B2-9和PA1799)携带与衍生序列版本AMBN(A253G)唯一匹配的肽段,该替换可能源于密码子GCC到GGC中Cys到Gly的转换(染色体4:70603880–70603882)。与这一新衍生替换匹配的肽段与已知的细菌或真菌序列不匹配。该替换不存在于尼安德特人(Vindija 33.19(参考文献41)、Chagyrskaya(参考文献42)、Denisova 5(参考文献43))或丹尼索瓦人高覆盖度基因组(Denisova 3)44的现有参考基因组或蛋白质组中。祖先型丙氨酸也是此前报道的Penghu 1和TNH2-1丹尼索瓦人牙釉质蛋白质组中的氨基酸6,7。该替换在我们可获取的大型猿类参考蛋白质组中不存在45,也不存在于人类gnomAD外显子组数据库(v.4.1,1,461,678个个体)或1000 Genomes和SGDP数据集中45,46,47。该替换未在已发表的D4163直立人蛋白质组中观察到——D4163是来自格鲁吉亚Dmanisi、年代约为1.77 Ma的标本,其含有祖先型丙氨酸29。然而,衍生型甘氨酸在来自东亚、年代约为0.4 Ma的六颗直立人牙齿中被观察到。因此,AMBN A253G替换似乎在东亚直立人中广泛存在13。尽管衍生型AMBN A253G替换迄今仅在东亚直立人标本中被独家观察到,但这并不排除属于该群体的其他标本携带祖先型氨基酸变异的可能性。
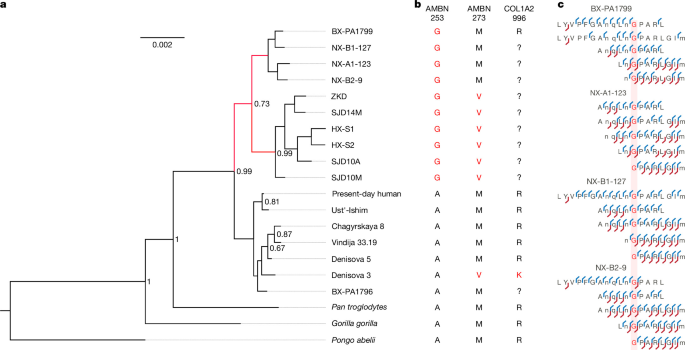
a,使用所有被视为内源性蛋白质的贝叶斯系统发育树。后验概率低于0.5的未显示。在该树中,Denisova 3是唯一纳入的丹尼索瓦人个体,而ZKD、SJD14M、HX-S1、HX-S2、SJD10A和SJD10M指此前研究过的直立人标本。b,参考大型猿类标本(包括已灭绝和现存古人类)在本研究中进行蛋白质组学研究的五个Naxian和Baxian古人类标本相关的三个选定牙釉质蛋白位点上的氨基酸占据情况。c,选定的肽段-谱图匹配,显示在四颗Naxian和Baxian古人类中观察到的直立人衍生型AMBN-253G替换的覆盖情况。肽段碎片离子系列提取自PEAKS Online v.12。
尽管个体之间在蛋白质氨基酸序列上可能存在个体差异,但我们在古数据覆盖的蛋白质区域中发现,在纳入数据库搜索的全球分布现代人类中,只有一个位点存在序列变异(表1)。总体而言,在现存人科动物中,在纳入的类人猿个体之间及个体内部可变的43个氨基酸位点中,并且在我们对这里研究的四种古人类中至少一种具有覆盖的情况下,只有五个位点在纳入个体之间存在序列异质性,且在这些位点上至少四个或更多同一属的个体共享变异(H. sapiens 中一个位点,Pan 属中三个位点,Pongo 属中一个位点;表1)。值得注意的是,携带与先前报道的来自 Zhoukoudian、Sunjiadon 和 Hexian 的 H. erectus 标本共有的衍生 AMBN A253G 替换的四颗牙齿,与那六个标本不同,因为 Naxian 和 Baxian 古人类不携带衍生 AMBN M273V 替换(表1、图4和扩展数据图3)。因此,在来自两个中更新世晚期遗址的四颗古人类牙齿、至少三个个体中观察到 AMBN Gly253 替换并结合对 AMBN Met273 的观察(如果来自 Naxian 洞穴的两颗 M1 代表同一个体),表明它们共同所属的古人类群体此前尚未通过分子方法(无论是遗传学还是蛋白质组学)被采样。
为进一步探讨 Naxian 和 Baxian 标本的系统发育位置,我们进行了贝叶斯系统发育分析。需要注意的是,由于牙釉质蛋白质组数据稀疏,古蛋白质组学中的此类分析通常必须假设分析中纳入的个体和群体之间近期没有基因流。我们发现,携带 AMBN A253G 替换的四名 Naxian 和 Baxian 个体聚在一起,形成一个分支,位于先前报道的 Denisovans、Neanderthals 和现代人类分支之外(图4和扩展数据图4和5)。Denisovans、Neanderthals 和现代人类形成的分支拓扑结构与主分析中的预期构型一致,尽管内部节点支持度较低(图4)。一旦将额外的现代人类和类人猿个体加入系统发育分析,这三个古人类群体的拓扑结构就会发生变化(扩展数据图4和5)。正如先前报道29,39,40,使用牙釉质蛋白质的蛋白质组数据时,很难获得该分支的预期拓扑结构,这一点在我们分析中该分支的低支持值中得到了体现(图4和扩展数据图4–6)。尽管如此,在所有分析中,支持其余分支节点的值都很高(>0.995),包括将 Naxian 和 Baxian 标本置于其他古人类之外作为外群的那个节点。Naxian 和 Baxian 个体与六个先前报道的 H. erectus 标本一起被置于一个分支中。那六个标本以强支持聚在一起,并与携带 AMBN A253G 替换的四个 Naxian 和 Baxian 个体分开(图4)。这加强了以下观点:这四个 Naxian 和 Baxian 洞穴标本代表了一个此前未通过分子方法采样的 H. erectus 古人类群体。此外,系统发育分析表明,尽管基于稀疏数据,该古人类群体可能分化于现代人类、Neanderthals 和 Denisovans 的共同祖先分化之前。这些系统发育观察结果与对这些标本的形态学分析一致,进一步支持这些标本属于一个此前未被采样的 H. erectus 谱系。
相比之下,对八仙洞 PA1796 的蛋白质组学分析显示,该标本不含衍生的 AMBN A253G 氨基酸替换(扩展数据图 6b)。与其他四颗牙齿相比,它没有独特的衍生替换,也不与参考面板中的丹尼索瓦人、尼安德特人或现代人个体共享独特的衍生氨基酸替换(表 1)。对该标本的系统发育分析将其置于 H. erectus 支系之外,其与古老人群(丹尼索瓦人和尼安德特人)或包含尼安德特人、丹尼索瓦人和现代人的支系的关系位置呈现不同拓扑结构且支持率低(图 4 和扩展数据图 6a)。因此,这颗牙齿重建的蛋白质序列不同于蛋白质组学研究的其他四个标本,这反映了形态学分析的结果,也表明该标本代表 H. erectus 以外的分类单元。目前仅有一个丹尼索瓦人基因组参考,即来自俄罗斯丹尼索瓦洞的 D3 标本,这意味着我们对丹尼索瓦人蛋白质序列多态性的理解本质上有限。未来对该地区古人类牙齿的形态学和基因组学或蛋白质组学研究可能提供更多框架,从而将 PA1796 更精确地分类到非直立人群体中,该群体可能代表丹尼索瓦人(H. longi)的南亚代表,也可能是另一个种群或物种。
对东亚 H. erectus 的意义
来自那仙洞和八仙洞的八颗中更新世晚期人类牙齿表现出在东亚和东南亚 H. erectus 范围内的测量和形态特征,并且不同于丹尼索瓦人(H. longi)、尼安德特人(H. neanderthalensis)或更新世和全新世现代人(H. sapiens)的特征。古蛋白质组学证据进一步证实,其中四颗牙齿确实超出了 H. neanderthalensis、H. longi 和 H. sapiens 已知的遗传和蛋白质组序列变异范围,但与最近描述的约 0.4 Ma 中国标本的 H. erectus 衍生替换一致(参考文献 13)。因此,所获得的蛋白质组学证据与形态学数据相容。这些 H. erectus 牙齿的年代在 324 至 184 ka 之间(参考文献 12),大大扩展了亚洲大陆 H. erectus 化石的已知时间范围,使大陆 H. erectus 化石记录的范围更接近已知最晚的爪哇 H. erectus,其年代为 117–108 ka(参考文献 8)。从东亚中更新世恢复出大陆 H. erectus 独特的蛋白质组特征进一步表明,归入该物种的标本可能包含多个古人类种群13,并使得可以通过分子手段检验该地区其他可能属于中更新世晚期的 H. erectus 化石——例如来自中国湖北省长阳洞11,22 和安徽省巢县洞23 的化石——是否也代表属于同一大陆 H. erectus 古人类种群的标本,或者它们是否具有与更早的 H. erectus13 更相似的蛋白质组特征。
时空共存中的古人类
文章标题:晚中更新世东亚大陆直立人的证据
正文: 在东亚南部晚中更新世发现的纳贤和巴贤直立人标本,丰富了该地区的古人类占据图景。一件丹尼索瓦人下颌骨已在台湾沿海的澎湖海峡被描述,年代为190–130 ka或70–10 ka(参考文献7,48)。在老挝,基于形态学分析,一件丹尼索瓦人臼齿已在Tam Ngu Hao 2被描述,年代在163至131 ka之间(参考文献6)。关于丹尼索瓦人基因渗入现代人类基因组时间的遗传学证据也表明,丹尼索瓦人在晚更新世相当晚的时期仍存在于东亚和/或东南亚1,49。此外,若干颅骨和牙齿遗存,如哈尔滨、澎湖1和夏河1,已在分子层面被鉴定为H. longi(丹尼索瓦人)7,9,17,19,另有若干其他晚中更新世标本也可能属于这一人群(例如许家窑和花龙洞),其中还包括一些来自南亚的非直立人化石(例如马坝、纳尔马达、TNH2-1)6,50。因此,由大陆纳贤和巴贤洞穴化石所代表的直立人种群与丹尼索瓦古人类在相对接近的地域共存,似乎是合理的。
尽管EDJ的几何形态测量分析表明PA1796 M2保留有祖征性状(主要由于EDJ高度较短),该标本在形态上也不同于对比用的直立人样本(补充说明2)。丹尼索瓦人(H. longi)对比样本的缺乏,严重限制了我们从形态上鉴定他们的能力。PA1796的非测量形态与中国直立人明显不同,表现为EDJ上无皱褶、无副窝、跟座相对较大以及次尖向舌侧移位25,26(补充说明1和2)。此外,PA1796的古蛋白质组学分析显示出与其他巴贤和纳贤标本以及来自周口店、和县和孙家洞的六颗直立人牙齿不同的信号13(图4),强烈提示巴贤洞穴中存在直立人之外的古人类种群。然而,在目前可获得的蛋白质序列中,PA1796标本并未表现出与丹尼索瓦人相关的已知蛋白质组变异,尽管应当承认目前仅有一个丹尼索瓦人参考基因组可用。因此,PA1796可能代表一个尚未被识别的直立人群,其在分子和形态方面与目前已知的直立人标本不同——我们认为这一假设不太可能(补充说明2)但不能完全排除——或者属于一个非直立人类群,可能与H. longi相关。未来对该地区古人类牙齿的形态学和蛋白质组学研究,以及越来越多的丹尼索瓦人基因组和蛋白质组的可获得性,或可提供更多框架,以便对PA1796标本进行更精确的分类。
来自巴贤和纳贤洞穴的直立人标本将亚洲大陆直立人的地理和时间范围延伸至晚中更新世相当晚的时期。这些直立人种群占据雨林环境12,可能与南亚丹尼索瓦人在空间和时间上近距离共存。因此,东南亚大陆似乎是研究多种同域古人类物种的演化、遗传学和考古可见行为的关键地区。
方法
测量与非测量形态学分析
坝下和纳下古人类标本在中国科学院古脊椎动物与古人类研究所(IVPP,中国北京)使用225 kV微计算机断层扫描仪进行X射线显微断层扫描,参数如下:140 kV电压,120 µA,角度增量为0.5°,旋转360°。最终体积以15.7–32.0 µm的各向同性体素大小重建。在Avizo v.7.1(FEI Visualization Sciences Group)中进行了基于阈值的半自动分割,然后为每个标本生成了体积重建。每颗牙齿的完整形态描述见补充说明1。
3D 牙齿测量
牙齿表面模型导入Geomagic Design v. X 64(3D Systems, Rock Hill)中以分离牙冠和牙根。使用最佳拟合牙颈部平面作为参考51,在牙颈部数字分离牙冠和牙根。然后测量或计算了五个变量:(1) Ve,釉质帽体积(mm3);(2) SEDJ,EDJ表面积(mm2);(3) Vcdp,牙冠牙本质和牙髓体积(mm3);(4) 3DAET,3D平均釉质厚度(Ve/SEDJ;mm)52;(5) 3DRED,3D平均釉质厚度与3D平均牙本质厚度的比值(Ve1/3/Vcdp1/3 × 10)53。
几何形态测量学
应用微分同胚表面匹配分析来自Baxian和Naxian洞穴磨损最轻牙齿的EDJ形状(方法学细节见补充说明2)。这种无标志点的基于网格的方法先前已被证明能有效区分各种古人类物种的EDJ6,22,27。由于咬合磨损,一些标本的牙本质角尖端必须在分析前重建(补充说明2和补充图18和21)。我们首先确认Baxian和Naxian标本的EDJ与Pongo不同,属于Homo(这也被古蛋白质组学独立证实)。然后我们将Baxian和Naxian的EDJ与H. erectus s.l.、H. neanderthalensis、H. longi和H. sapiens的EDJ进行比较。H. erectus样本包括来自非洲和亚洲的牙齿遗存,一些学者认为这些属于H. ergaster和H. erectus s.s.(补充表3)。我们在图2中标注了H. erectus标本的标签,以显示非洲和亚洲材料在形态空间中的分布。进行了典型变量分析,并将Baxian和Naxian标本以及来自Tam Ngu Hao 2的丹尼索瓦臼齿(参考文献6)事后投影到典型变量分析形态空间中。计算了Naxian和Baxian牙齿的典型性概率,以定量估计它们最可能的分类归属。
蛋白质组学采样与提取
对于Naxian洞穴,使用带有金刚石钻头的手持钻对动物群和古人类标本进行采样,动物群样品产生10 mg至97 mg粉末,古人类牙釉质最多达6 mg。对于Baxian洞穴,使用手持钻获取牙本质(36.5和43.2 mg粉末),而牙釉质则使用酸蚀法采样。所有采样和提取步骤均在定期用于古DNA和/或古蛋白质分析的古代分子实验室中进行,包括防止采样和提取环境污染的标准程序,包括穿戴全身防护服、发网、多层丁腈手套、鞋套和正压空气。
Naxian cave的牙釉质提取物使用5% HCl制备,遵循先前发表的方案31,54。同样,Baxian cave标本酸蚀后的牙釉质提取物遵循先前发表的方案54。Naxian cave动物群的牙本质样品使用基于先前发表的EDTA方案的变体进行提取55。对于Baxian cave,古人类牙本质提取遵循常用于ZooMS分析的基于HCl的方案,但进行了修改以按大小分离蛋白质片段9,56。完整的蛋白质提取方案见补充说明3。
蛋白质组学数据采集与分析
来自Naxian cave的动物群提取物在EASY-nLC 1200(Thermo Fisher Scientific)系统上分离,该系统与Exploris 480 Orbitrap质谱仪(Thermo Fisher Scientific)联用。来自Naxian cave的古人类牙釉质提取物在Vanquish Neo UPLC(Thermo Fisher Scientific)系统上分析,该系统与Exploris 480 Orbitrap质谱仪(Thermo Fisher Scientific)联用。来自Baxian cave的牙本质提取物首先在Bruker Autoflex MaX MALDI-ToF MS仪器上分析。在检测到胶原蛋白肽后,来自Baxian cave的牙本质和牙釉质提取物均在Orbitrap Fusion Lumos质谱仪(Thermo Fisher Scientific)上分析,该质谱仪与Easy n-LC 1200 HPLC系统(Thermo Fisher Scientific)联用,梯度为120分钟。所有情况下均包含空白提取,以监测过程中是否存在外源性污染物。
原始数据文件按组织类型和洞穴地点分别使用PEAKS、pFind和MaxQuant并行搜索。PEAKS的初步搜索揭示了AMBN中可能存在独特替换,而PEAKS和pFind提示了应考虑的翻译后修饰(PTMs)组成。初步搜索后,使用更新的蛋白质序列数据库和更新的牙釉质PTM信息以及牙本质的全人类蛋白质组进行了最终搜索(更多细节见补充说明3)。
蛋白质脱酰胺化根据先前针对 MaxQuant 数据的研究进行计算57。其他 PTM 比率分析通过肽谱匹配光谱计数或肽计数进行,除非另有说明(适用于 MaxQuant、pFind 和/或 PEAKS)。Unipept 分析使用针对内源性牙釉质特异性蛋白的所有肽匹配进行58。如上所述,数据分析使用了项目特异性数据库,该数据库包含超出 UniProt 中可用的蛋白质序列变异。因此,Unipept 分析无法将所有肽匹配到与所用蛋白质序列数据库中存在的相同分类水平。对 pFind、PEAKS 和 MaxQuant 数据联合进行序列重建,从而为每个样本生成单一蛋白质序列重建。具体而言,将来自不同搜索引擎的序列对每个样本进行叠加,以生成单一蛋白质共有序列。PEAKS、pFind 和 MaxQuant 彼此不一致的氨基酸位置未被判定,并反转为“X”。可能具有系统发育信息的位置经过人工检查,检查了碎片离子系列并评估了 E 值。必要时,随后从蛋白质序列重建中移除可能引入无效序列的位置。随后将共有序列比对到 PaleoProPhyler 数据库中人科牙釉质序列的子集,该子集包括 Pongo、Gorilla 和 Pan 属各四个个体,以及三个尼安德特人41,42,43、一个丹尼索瓦人44 和三个来自撒哈拉以南约鲁巴人群的现代 H. sapiens。我们还添加了 Homo antecessor29 和 Penghu 1(参考文献 7)(一个丹尼索瓦人个体)的牙釉质蛋白质序列,并对 Naxian–Baxian 个体使用每种树的不同蛋白质组合进行贝叶斯系统发育分析。组合在每个图中标明(扩展数据图 4–6 和补充图 33–43)。来自格鲁吉亚 Dmanisi 的单个样本(D4163)的可用 H. erectus 蛋白质序列未纳入此处进行的系统发育分析,因为该样本的系统发育位置在原始研究中无法解决29。
报告摘要
有关研究设计的更多信息可在与本文链接的 Nature Portfolio Reporting Summary 中获取。