 Newshot
文章标题:Bogong蛾依靠依赖光的地磁倾角罗盘导航
正文:
正文
Bogong蛾(Agrotis infusa)是澳大利亚标志性昆虫,也是众所周知的长距离夜间导航者1,2,3,4(图1a)。在其长达一年的生命周期中,每只蛾都会在春季进行长达1,000公里的长途迁徙,从分布于澳大利亚东南部各地的繁殖地迁往澳大利亚阿尔卑斯山少数地理上受限的夏眠地点1,2(图1b)。在凉爽的高山避难所中休眠约3个月后(图1c),这些个体于秋季返回其繁殖地,在那里繁殖并死亡。为了完成这两次重大的季节性旅程,Bogong蛾依靠星辰作为罗盘,按照其遗传的迁徙方向导航3。有趣的是,当星辰被云层遮挡时,蛾仍能保持其迁徙航向3,这表明地球磁场很可能也被用作罗盘。此前报道的Bogong蛾磁感应能力4进一步支持了这一可能性。然而,Bogong蛾是否具备使用地磁罗盘的能力,以及这种蛾磁感应本身的本质,仍然未知。
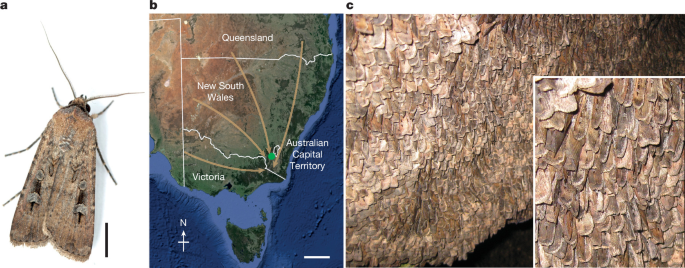
a,雄性Bogong蛾。b,蛾在春季迁往澳大利亚东南部高山地区时可能采取的迁徙路线(箭头)。秋季迁徙方向相反。绿点标示我们在Adaminaby的专用无磁实验室的位置。c,每平方米约17,000只蛾在澳大利亚阿尔卑斯山特定洞穴的墙壁上夏眠,最长可达4个月,之后进行返程迁徙。插图:细节。比例尺:5 mm(a)和200 km(b)。照片经许可转载:a,参考文献2;b,参考文献49;c,参考文献3(均为CC BY 4.0)。
在此我们表明,Bogong蛾能够仅利用地球磁场作为罗盘,在夜间按照其遗传的迁徙方向导航;并且,与夜间迁徙的鸣禽6,7,8类似,这一罗盘基于磁场的倾角而非极性。我们的结果进一步表明,同样与夜间迁徙的鸣禽9,10,11,12一样,这一地磁罗盘似乎依赖于一种依赖光的、基于自由基对的磁感应5,可能由隐花色素介导。
Bogong蛾使用地磁罗盘
在其一年两次的迁徙期间,我们利用位于Mount Selwyn的灯诱陷阱捕获了南向到达的春季迁徙个体和北向出发的秋季迁徙个体;该地点位于新南威尔士州(NSW)东南部主要高山夏眠地点北东北约70公里处3,4。蛾被转移到我们附近野外站点专门建造的无铁磁暗实验室中,在那里被拴系并在飞行模拟器竞技场中飞行3,13(实验室、模拟器设计、拴系程序以及用于选择分析蛾的标准的详细信息见方法部分和扩展数据图1)。该模拟器持续测量积极飞行、可在任意方位角方向自由转向的蛾的飞行航向,从而能够重建一定时间内的“虚拟飞行轨迹”。飞行竞技场的圆柱形内壁衬有蓝色纸板(“天空”),墙壁下三分之一衬有第二层黑色纸板,其裁切方式营造出周围景观(草地、树木和山丘)的全景剪影。这一景观提供了视觉细节,帮助拴系的蛾控制其飞行。
文章标题:Bogong moths navigate with a light-dependent geomagnetic inclination compass
为检验Bogong蛾是否具备磁罗盘,我们将飞行模拟器场地置于一个三维双绕亥姆霍兹线圈系统中,该系统可产生自然的局部地磁场(强度57,600 nT,倾角−65.5°,偏角+12.8°)。在不改变磁场强度的前提下,这些线圈使我们能够:(1) 在场地内旋转自然地磁场(NMF)的方位取向而不改变其倾角(例如水平旋转180°,使磁北指向南方);(2) 分别或同时反转地磁场的极性和倾角;(3) 将地磁场归零(移除)。
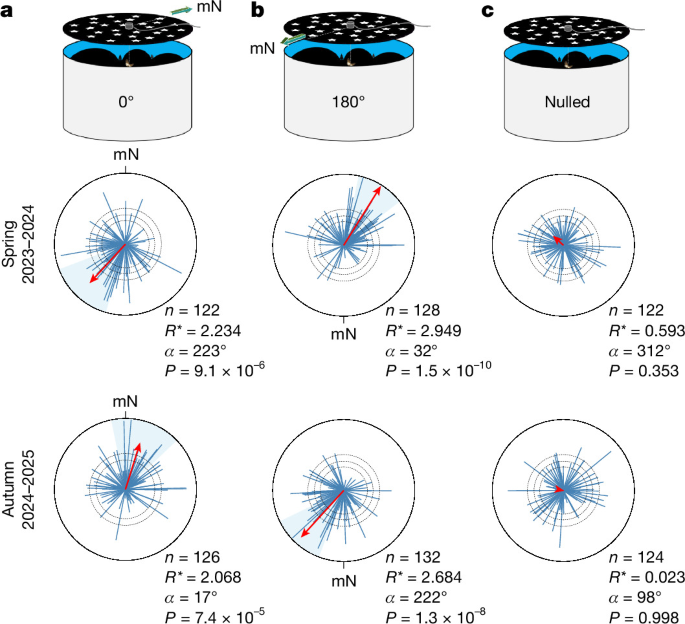
系留的蛾暴露于全光谱(紫外–红光)随机星空(不含方向信息)下,该星空以自然恒星强度投射到置于圆柱形场地顶部的平面屏幕上(图2a)。系留蛾的飞行被记录5分钟。当暴露于NMF和随机星空下时,蛾在2023–2024年的两个春季和2024–2025年的两个秋季迁徙季节中均朝向其季节上适宜的迁徙方向。春季,蛾大致向西南飞行(平均矢量方向α = 223°,n = 122,P = 9.1 × 10⁻⁶)(图2a),而秋季,蛾向北–东北偏北飞行(α = 17°,n = 126,P = 7.4 × 10⁻⁵)(图2a)。蛾飞行方向的离散程度大于我们此前在归零地磁场下自然星空条件下观察到的结果3(另见图4),几乎可以肯定这是由于磁觉相对于视觉所固有的噪声所致14。当地磁场的方位在水平方向旋转180°而不改变场的垂直分量时(图2b),春季蛾和秋季蛾均朝几乎完全相反的方向飞行,春季转向191°(α = 32°,n = 128,P = 1.5 × 10⁻¹⁰),秋季转向205°(α = 222°,n = 132,P = 1.3 × 10⁻⁸)。在没有地磁场但仍存在随机星空的情况下,蛾在两个季节均失去方向性(春季:n = 122;秋季:n = 124)(图2c)。各季节的个体数据集见扩展数据图2,完整统计见扩展数据表1。蛾的飞行方向在春季与秋季之间,以及每个季节内旋转与未旋转地磁场之间均存在显著差异(Watson–Wheeler检验,Bonferroni校正;扩展数据表1)。
Bogong 蛾利用依赖光的地磁倾角罗盘导航
a,迁徙蛾类在投射的全光谱随机星空下、内壁环绕全景的飞行场地中,并在线圈产生的 NMF 内飞行(Extended Data Fig. 6)。蛾类(浅蓝色向量)在春季(α = 223°,n = 122(2023 和 2024),R = 2.234,P = 9.1 × 10−6,95% 置信区间 (CI95) = 196° 至 249°)和秋季(α = 17°,n = 126(2024 和 2025),R = 2.068,P = 7.4 × 10⁻⁵,CI95 = 348° 至 46°)均沿其固有迁徙方向飞行。b,除磁北旋转 180° 外,其余同 a(春季:α = 32°,n = 128,R = 2.949,P = 1.5 × 10⁻¹⁰,CI95 = 12° 至 51°;秋季:α = 222°,n = 132,R = 2.684,P = 1.3 × 10⁻⁸,CI95 = 200° 至 244°)。c,春季(n = 122(2023 和 2024),R = 0.593,P = 0.353)和秋季(n = 124(2024 和 2025),R = 0.023,P = 0.998)在随机星空下及归零磁场中的定向。a–c 中的每个红色平均向量均由所有单只蛾的平均方向和平均定向性(向量长度)加权得出,分析采用单侧 Moore 修正 Rayleigh 检验 (MMRT),并针对多重比较进行 Bonferroni 校正。平均向量的方向和定向性分别由 α 和 R 值给出。虚线圆表示达到统计显著性所需的 R 值:随着半径增大,分别对应 P < 0.05、P < 0.01 和 P < 0.001。最外层圆分别对应 R* = 3(平均向量)和 r = 1(单只蛾向量)。阴影区域表示 CI95。mN,磁北。
总之,我们的行为学结果表明,Bogong 蛾在春季和秋季都能仅利用地球磁场作为罗盘,沿其固有迁徙方向导航。接下来,我们研究了这种罗盘是让蛾类像在蚂蚁15中观察到的那样利用地磁场的极性来找到方向,还是像在夜间迁徙鸣禽6,7,8中观察到的那样利用地磁场的倾角来找到方向。
基于磁倾角的罗盘
Bogong 蛾利用光依赖的地磁倾角罗盘导航
为确定 Bogong 蛾的磁罗盘是极性罗盘还是倾角罗盘,飞行模拟器再次被放置在我们实验室的 3D Helmholtz 线圈系统中。建立了三种强度相等的磁场条件(Fig. 3):(1) 一个 NMF(磁北位于 0°,倾角 −65.5°,磁力线指向天空);(2) 一个极性反转的地磁场(磁北位于 180°,倾角 +65.5°),其磁力线轴向方向与 NMF 中相同,但使磁力线指向地面(垂直和水平磁场分量均反转);以及 (3) 一个倾角反转的地磁场(仅垂直磁场分量反转:磁北位于 0°,倾角 +65.5°,磁力线指向地面)。当春季迁徙蛾暴露于 NMF 时,它们一致地朝向西南方向(α = 208°,n = 77,P = 1.1 × 10⁻⁷)(Fig. 3a)。当磁极性反转而未改变磁力线轴向方向时(这使感知到的倾角保持不变),蛾对极性反转没有反应,并保持西南飞行方向(α = 213°,n = 78,P = 5.4 × 10⁻⁵)(Fig. 3b)。相比之下,当仅通过反转地磁场的垂直分量来改变磁倾角时,蛾朝向东北(α = 27°,n = 76,P = 5.4 × 10⁻⁴)(Fig. 3c)。总体而言,这些结果表明,Bogong 蛾与夜间迁徙的鸣禽6,7,8 一样,拥有地磁倾角罗盘——它区分的是‘向极’(在南半球为南,由逐渐增大的倾角表示)与‘向赤道’(或北,由逐渐减小的倾角表示),而不是表示‘北’和‘南’本身(如极性罗盘那样)。为研究这种基于倾角的罗盘是否依赖于光依赖的(可能基于 cryptochrome 的)自由基对机制,我们接下来测试了自由基对假说的两个关键预测:该罗盘需要 UV 或蓝光,并且应在存在宽带射频(RF)噪声时受到干扰。
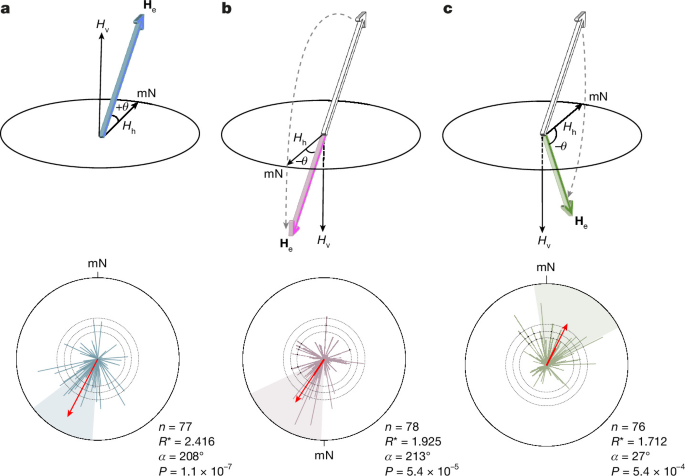
a,春季迁徙蛾在全景环绕的飞行场地中飞行,场地投影有全光谱随机星空,并处于线圈生成的 NMF 中。蛾(浅蓝色矢量)按其继承的迁徙方向飞行(α = 208°,n = 77,R = 2.416,P = 1.1 × 10⁻⁷,CI95 = 184° 至 233°)。b,当 a 中的磁极性反转时(通过反转垂直和水平磁场分量),蛾(浅紫色矢量)仍保持其继承的迁徙方向(α = 213°,n = 78,R = 1.925,P = 5.4 × 10⁻⁵,CI95 = 184° 至 245°)。c,当 a 中的磁倾角反转时(仅通过反转垂直磁场分量),蛾朝向东北(α = 27°,n = 76,R* = 1.712,P = 5.4 × 10⁻⁴,CI95 = 351° 至 62°)。圆圈上方(a)的磁场矢量(He)指向天空(即离开地球表面,南半球,+θ),而圆圈下方(b,c)的磁场矢量指向地面(即进入地球表面,北半球,−θ)。He,地磁场矢量;Hh,He 的水平分量;Hv,He 的垂直分量;θ,倾角;mN,磁北。其他所有定义和统计均如 Fig. 2 所示。
Bogong moth利用光依赖的地磁倾角罗盘导航
为了解释磁场可能如何被感知5,6,16,17,18,19,已经提出了少量可行且非互斥的假说。其中,两个假说受到了最多的关注。第一个假说涉及在感觉细胞内或附近聚集的微小磁铁矿晶体20,21。这些晶体相对于地球磁场方向的变化被认为会导致磁铁矿晶体与感觉细胞之间的机械张力,从而促进信号转导。这种机制显然检测磁场的极性,已在蚂蚁15,22、鱼类23,24和海龟25等中被提出。第二个假说涉及光依赖的基于隐花色素的自自由基对机制5,26,27,28,29,30,31,其中光激发的隐花色素分子被认为参与受地球磁场方向调节的化学反应。这些反应被假设在磁敏感细胞中触发感觉转导。这种机制首先在果蝇32中被提出(尽管最近受到争议33),能够检测磁场的倾角而非极性,正如在包括夜间迁徙鸣禽5,6,7,8、昆虫31,34,35和海龟25等几个物种中所提出的那样。
自由基对机制表现出两个显著特性。首先,某些波长和强度的光似乎是允许磁感知所必需的9,10,32。例如,君主斑蝶(Danaus plexippus)似乎能够利用基于隐花色素的磁感31来检测磁场的倾角,尽管其在迁徙期间地磁定向的证据是混合的35,36,37。这种能力似乎需要紫光(380–430 nm)。其次,根据理论5,26,27,38,自由基对机制(以及任何依赖于它的磁感)会被非常弱的宽带射频噪声破坏11,12,29,30。我们利用这两个特性来研究Bogong moth的磁感知是否基于光依赖的自由基对机制。
罗盘需要紫蓝光
首先,我们测试了磁定向的光依赖性,方法是将两个春季和两个秋季迁徙季节(2023–2025)捕获的蛾暴露在投射有随机星星的天空下的NMFs中(扩展数据图1c),该实验在一个内衬全景场景的竞技场中进行(图2和扩展数据图1d,e)。实验再次在我们的无铁磁实验室中进行,但现在从恒星照明光谱中移除了紫外光、紫光和蓝光(使用光谱阻挡滤光片:仅保留波长λ > 500 nm的光)。在这些条件下,蛾在两个季节都迷失了方向(图4a和扩展数据图2d),表明它们的地磁罗盘是光依赖的,并且需要波长λ < 500 nm的光才能发挥作用。
在春季(n = 106(2023 和 2024),R = 0.258,P = 0.822)和秋季(n = 115(2024 和 2025),R = 0.206,P = 0.882)均失去定向。b,d,Bogong蛾(n = 56,紫色矢量)在全光谱照明的自然春季本地星空下(扩展数据图 7),于被抵消的地磁场中保持定向(阶段 A1:α = 188°,R = 1.753,P = 5.2 × 10⁻⁴,CI95 = 153° 至 222°(b);阶段 A2:α = 182°,R = 1.733,P = 6.4 × 10⁻⁴,CI95 = 125° 至 190°(d))。c,在阶段 B,蛾(橙色矢量)在缺乏 UV–蓝光的自然星空(λ > 500 nm)下,于被抵消的地磁场中仍保持定向:α = 158°,R* = 1.862,P = 1.6 × 10⁻⁴,CI95 = 147° 至 217°。三种条件之间未发现显著的定向差异(b–d;Wheeler–Watson 检验:W = 2.561,d.f. = 4,P = 0.634)。所有其他定义和统计方法同图2。
为解决以下可能性——即这种表观上的磁定向丧失实际上是由于蛾在缺乏 UV、紫光和蓝光时无法对飞行进行视觉控制(从而可能变得失去定向)——我们在被抵消的地磁场中,将春季迁徙的Bogong蛾置于投影的自然春季星空下飞行(扩展数据图 1b)。在这些条件下,并在全光谱星光照明下,此前已证明蛾能够利用其星罗盘(即它们的视觉)沿其固有迁徙方向定向3。每只蛾的定向在三个连续的 5 分钟实验阶段中被测量(图 4b–d):A1、B 和 A2。阶段 A1 和 A2 提供全光谱星光照明,但在阶段 B 期间,该光谱中排除了 UV、紫光和蓝光。蛾在所有三个阶段都保持沿其固有迁徙方向的一致定向(A1(图 4b):α = 188°,R = 1.753,P = 5.2 × 10⁻⁴;A2(图 4d):α = 182°,R = 1.733,P = 6.4 × 10⁻⁴;B(图 4c):α = 158°,R* = 1.862,P = 1.6 × 10⁻⁴),各分布之间无显著差异(Wheeler–Watson 检验:W = 2.561,d.f. = 4,P = 0.634)。这些结果表明,我们在缺乏 UV、紫光和蓝光时观察到的定向丧失(图 4a)并非源于无法对飞行进行视觉控制。相反,它必定源于磁感觉受损。这证实了Bogong蛾具有一种依赖光的地磁罗盘机制。
为进一步研究Bogong蛾地磁罗盘的光依赖性,我们研究了哪些光谱波段的光照会影响该罗盘。我们在秋季捕获向北迁徙的蛾3,4,并将它们转移到我们在 Adaminaby 的室外站点。在这里,它们经历自然夜空和地球的自然磁场。蛾在透明的、可透 UV 的 Perspex 飞行竞技场13中测试(可完整看到周围景观),其内部光谱通过光谱长通滤光膜(Lee Filters;详见扩展数据图 3)进行操控,该滤光膜被放置在竞技场外壁以及其顶盖和底部。一个宽大的黑色圆盘放置在系留蛾上方 3 cm 的轴上,遮挡了对整个天空的直接视野,防止蛾使用其星罗盘3。设计了四个光谱过滤的竞技场(方法 和 扩展数据图 3b):(1)透明竞技场(全光谱,λ > 310 nm);(2)阻挡 UV 的竞技场(λ > 380 nm);(3)阻挡 UV–蓝光的竞技场(λ > 500 nm);(4)透明–中性密度竞技场(全光谱,λ > 310 nm,但由于添加了 0.9 log 单位的中性密度滤光膜,强度降低约八倍)。这第四个竞技场用于控制以下可能性:定向丧失是由于 UV 和蓝光阻挡滤光片导致照明强度降低,而非光谱受限。
文章标题:Bogong蛾依靠光依赖的地磁倾角罗盘导航
正文: 我们首先开展了两个实验(扩展数据图3c):(1)在透明实验箱与阻隔UV的实验箱中的飞行朝向对比;(2)在透明实验箱与阻隔UV–蓝光的实验箱中的飞行朝向对比。每晚的实验(1或2)中,一个由40只蛾组成的群体被分成两组,每组20只,随后进行两个实验阶段。每个阶段中,两组蛾在两个相距8 m的实验箱中平行测试(扩展数据图3a)。第一阶段的测试结束后,两组蛾在两个实验箱之间互换,进行第二阶段的测试,以控制它们可能依据从各实验箱内部看到的局部地标进行定向的影响。在两个实验(1和2)中,两个阶段内各实验箱中飞行的蛾群朝向均无显著差异(Watson–Wheeler检验)(扩展数据图4和扩展数据表2),表明透过透明实验箱壁看到的景观地标在蛾的定向中不起作用(早期研究3中亦如此)。
在透明实验箱中,蛾在两个实验中都表现出沿其固有迁徙方向的显著定向(实验1(图5a):α = 23°,n = 105,R = 1.841,P = 7.7 × 10⁻⁴;实验2(图5c):α = 19°,n = 122,R = 2.197,P = 1.0 × 10⁻⁵),且这两个平均方向无显著差异(Watson–Wheeler检验:W = 1.915,d.f. = 2,P = 0.384)。在透明–中性密度实验箱(λ > 310 nm,光照水平约降低八倍)中测试时,蛾保持了其固有迁徙方向(图5e)(α = 11°,n = 75,R = 1.559,P = 0.013)。在阻隔UV的实验箱(λ > 380 nm(图5b):α = 24°,n = 91,R = 1.868,P = 5.8 × 10⁻⁴)中也是如此。然而,在阻隔UV–蓝光的实验箱(λ > 500 nm)中测试时,蛾失去了定向能力(n = 112)(图5d)。总体而言,这些发现表明,380 nm至500 nm之间的紫–蓝光波长对Bogong蛾的光依赖磁罗盘感至关重要,即使在光照强度降低的情况下也是如此。
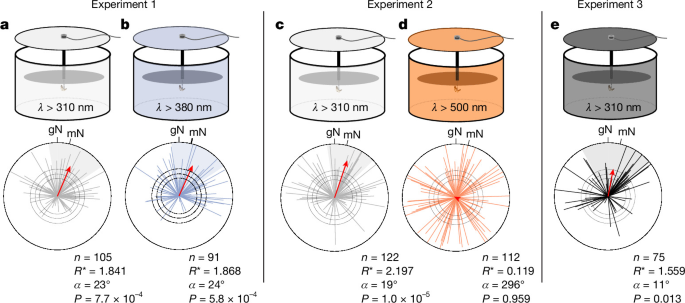
a,c,在户外测试的秋季迁徙个体(灰色矢量)在透明实验箱(透过λ > 310 nm)中于实验1(α = 23°,n = 105,R = 1.841,P = 7.7 × 10⁻⁴,CI95 = 350°至56°(a))和实验2(α = 19°,n = 122,R = 2.197,P = 1.0 × 10⁻⁵,CI95 = 352°至46°(c))中均表现出定向。b,蛾(浅紫色矢量)在透过λ > 380 nm的阻隔UV实验箱中同样表现出定向(α = 24°,n = 91,R = 1.868,P = 5.8 × 10⁻⁴,CI95 = 352°至56°)。d,蛾(橙色矢量)在透过λ > 500 nm的阻隔UV–蓝光实验箱中失去定向能力(n = 112,R = 0.119,P = 0.959)。e,蛾(黑色矢量)在透明–中性密度实验箱(透过λ > 310 nm,但光照强度降低0.9 log单位,约八倍)中表现出定向(n = 75,R* = 1.559,P = 0.013,CI95 = 331°至51°)。所有其他定义和统计量均如图2所述。
总之,我们的结果表明,Bogong蛾在夜间长距离导航中使用一种依赖光的地磁罗盘。这种罗盘对紫蓝光的依赖也与由自由基对机制(可能是基于隐花色素)介导的磁感应相一致。这一波段的光已被发现是其他昆虫31,32(但也见参考文献33)以及两栖动物39和夜间迁徙鸣禽9,10进行磁定向所必需的,这些动物在缺乏这些波长时(例如仅暴露于红光下)10会失去定向能力。尽管CRY1和/或CRY2已被表明在某些昆虫中介导光依赖性磁感应31,32,40,但这些CRY中(如果有的话)究竟是哪一种构成了Bogong蛾磁定向的基础,仍是一个未解问题。我们最近测序并注释的Bogong蛾基因组41显示,它们拥有CRY蛋白家族的三个成员:CRY1、CRY2和CRY-like(J.-M. Lassance等,未发表数据)。Bogong蛾的CRY1和CRY2与帝王蝶中的对应蛋白相似,在帝王蝶中,CRY1(位于眼睛和/或触角中)被认为介导磁感应31,而CRY2则在生物钟的负反馈环路中充当转录抑制因子31,42,43。
罗盘在暴露于射频噪声时失效
为了进一步研究Bogong蛾的地磁罗盘是否依赖自由基对机制,我们利用了隐花色素自由基对假说的第二个关键预测:磁定向应会被极弱的宽带射频噪声破坏。秋季捕获的蛾被转移到我们的无铁磁实验室,并再次在全景墙壁的竞技场中飞行。与之前一样,在蛾的上方投射自然强度的全光谱(UV–红)随机星点,并在竞技场中产生局部NMF。竞技场被一个特制天线环绕,该天线连接至信号发生器(方法及扩展数据图5a,b),产生弱宽带射频噪声(范围约150 kHz至60 MHz,平均强度41 nT,平均密度2.9 pT每√Hz)(扩展数据图5c和扩展数据表3)。在NMF中且无射频噪声时,秋季迁徙蛾表现出其正常的遗传性向北定向(α = 18°,n = 64,R = 1.729,P = 6.4 × 10⁻⁴)(图6a)。当地磁场旋转180°(使磁北指向南方)时,蛾向南定向(α = 217°,n = 67,R = 2.249,P = 1.4 × 10⁻⁶)(图6c),进一步支持了图2中的结果。然而,当向竞技场引入弱宽带射频噪声时,蛾在两种条件下均失去定向能力(n = 58(图6b)和n = 52(图6d))。这些结果表明,宽带射频噪声会破坏Bogong蛾的地磁罗盘,正如其在夜间迁徙鸟类中也是如此11,12,29,30,这进一步支持了Bogong蛾的磁感应依赖自由基对机制的证据。
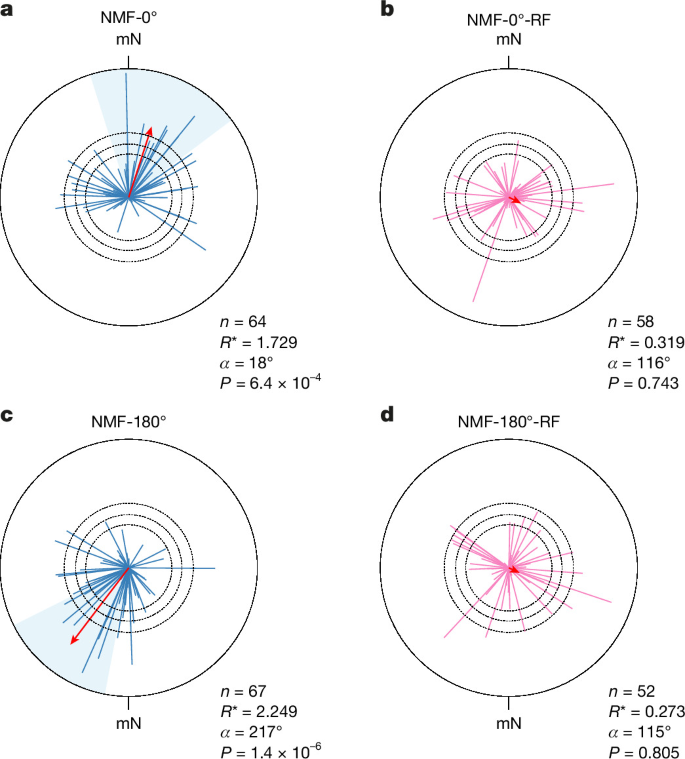
a,c,在NMF中,秋季迁徙的Bogong蛾(浅蓝色矢量)沿其遗传性迁徙方向定向(NMF-0°,α = 18°,n = 64,R = 1.729,P = 6.4 × 10⁻⁴,CI95 = 342°至53°(a)),但当地磁场旋转180°时,该方向发生反转(NMF-180°,α = 217°,n = 67,R = 2.249,P = 1.4 × 10⁻⁶,CI95 = 191°至243°(c))。b,d,在射频场存在时,蛾(粉色矢量)无论地磁场如何旋转均失去定向能力(n = 58,R = 0.319,P = 0.743(b);n = 52,R = 0.273,P = 0.805(d))。所有其他定义和统计量均如图2所述。
用于稳健导航的两种罗盘线索
Bogong 蛾利用光依赖的地磁倾角罗盘导航
我们的结果表明,Bogong 蛾依赖两个全局罗盘进行稳健的夜间导航——一个光依赖的、基于自由基对的地磁倾角罗盘和一个星空罗盘3。夜间迁徙鸣禽5,6,7,8,9,10,11,12,29,30,44,45 也是如此,这揭示了一个令人印象深刻的趋同演化例子:两个在约 7 亿年前分化、但具有相似迁徙行为的相距甚远的类群。就磁感知而言,这种趋同可能表明,感知和利用地球磁场进行长距离导航具有深度保守的生物物理原理。此外,其他夜间昆虫迁徙者,即使不像 Bogong 蛾那样前往特定的地理目的地,也可能利用地磁和星空罗盘线索来维持其季节性迁徙方向。事实上,秋粘虫蛾46,可能还有东方粘虫蛾47,最近也被证明具有磁感,因此这种感官在夜间蛾类中可能广泛存在。地磁和星空罗盘线索可能使 Bogong 蛾(可能还有其他蛾类48)即使在其中一种线索的显著性减弱或失效时(例如,由于阴天夜空或磁暴),也能继续沿其继承的迁徙方向导航。对沿途遇到的局部感官线索的识别49,可能进一步增强这种稳健导航。在其漫长迁徙的不同阶段使用全局和局部感官线索,可能最大限度地提高 Bogong 蛾安全到达澳大利亚阿尔卑斯山夏季夏眠地点的机会49。这些多种感官线索如何在行为和神经层面50被整合,以确保稳健的长距离导航,仍是一个有前景的未来研究方向。
方法
蛾的捕获与照料
Bogong 蛾(Agrotis infusa)雌雄两性均在秋季迁徙(2024–2025,澳大利亚秋季,年龄约 9 个月)和春季迁徙(2023–2025,澳大利亚春季,年龄约 5 个月)期间于野外捕获,使用 Lepi LED 灯(https://www.gunnarbrehm.de)和/或垂直光束探照灯(型号 GT175,Ammon Luminaire Company),置于悬挂于两棵树之间的白布前方。所有蛾均在 Thredbo(Dead Horse Gap,澳大利亚新南威尔士州东南部:36.524° S, 148.260° E,海拔 1,580 m)附近和 Mount Selwyn Snowfields(澳大利亚新南威尔士州东南部:35.914° S, 148.444° E,海拔 1,600 m)附近捕获。每只捕获的蛾被放入其单独的小塑料容器中,以与其他蛾隔离。捕获后,蛾被运至位于新南威尔士州 Adaminaby 附近 Glenhare 场地的测试地点(36.040° S, 148.864° E,海拔 1,250 m)。蛾每隔一天喂食 20% 蜂蜜水溶液,并饲养在具有自然光周期条件的凉爽、有遮蔽环境中。
在蛾上附着系留杆
为附着系留杆(细的非磁性钨杆),使用刷子小心去除蛾背侧胸部的鳞片。使用尖嘴钳弯曲钨杆末端,制成用于连接胸部的圆形小底板。使用接触胶(Impact Adhesive, EVO-STIK)将杆固定到蛾的背侧胸部,并用加重塑料网轻轻约束蛾以确保稳定。附着杆后(扩展数据图 1f),每只蛾被转移到通风的透明可透紫外 Perspex 容器中。日落前不久(约提前 1 小时),容器被放置在抬高的岩石构造上,以便无遮挡地观察西方天空,从而能够观察落日和天空光偏振模式——这些线索被假设用于校准罗盘机制51,52。
实验室中的受控行为实验
所有受控行为实验均在我们专门建造的、高度无铁磁的实验室中进行,该实验室位于Adaminaby3附近的乡村地产Glenhare,是一个隔离的暗室,射频干扰背景水平极低(实验室建在玻璃纤维加固的混凝土板上,完全由非磁性材料建造)。捕获的迁徙布冈夜蛾被系留,并在我们改进的Mouritsen–Frost飞行模拟器3,13,36中飞行,该模拟器位于双绕三维亥姆霍兹线圈系统中
在实验室中,使用向下指向的投影仪(LED 投影仪 ASUS S1 Mobile)将自然的无月繁星南半球夜空投射到飞行场顶盖上。投影仪安装在飞行场上方足够高的位置,以提供清晰且尺寸正确的夜空背面图像。为避免不需要的杂散光,每台投影仪都装在一个定制 3D 打印塑料盒中,盒子在镜头前方有开口,投影仪上方有通风缝。使用自由软件 Stellarium(v.24.1)54 生成一幅天体图像,模拟 2022 年 10 月 22 日 21:30(2022 年南半球春季)Canberra(与 Adaminaby 直线距离约 80 km)上方的无月繁星夜空(扩展数据图 1b)。此外,为防止布冈夜蛾在地磁定向实验中使用其星象罗盘3进行定向,投射了一片由随机星星组成的无特征星空3(扩展数据图 1c)。这些图像被投射到由飞行场顶盖形成的圆形屏幕上,投射天空的尺寸与屏幕尺寸匹配。由于投影仪不发射 UV 光,我们安装了一个定制 LED 环(由南澳大利亚大学 T. McIntyre 制作;直径 120 mm;内径 50 mm),其上有八个 UV LED(LED370E Ultra Bright Deep Violet LED;Thorlabs),围绕投影仪前镜头居中。LED 环的亮度通过中性密度滤光片和 MATLAB(MathWorks)中自定义编写的软件降低到准自然水平。
为了操控进入飞行场的光的强度和光谱组成(扩展数据图 7),我们使用了放置在投影仪镜头前的滤光片(Lee Filters)。中性密度滤光片(210 ND0.6;中性密度 0.6 log 单位,透射 λ > 310 nm)用于在所有波长上均匀衰减光强,同时保持光谱完整性。为了将照明强度降低到自然星光水平,在投影仪镜头前放置了六层 210 0.6ND 滤光片。为了阻挡该照明光谱中的 UV–紫–蓝部分,并保持大致相同的星光照明强度,在投影仪镜头前放置了一层 768 Egg Yolk Yellow 长通滤光片(λ > 500 nm;Lee Filters)和五层 210 0.6ND 滤光片。使用这些滤光片组合对投射的繁星夜空进行向上照明强度和光谱测量,测量在飞行场内进行,使用位于投影屏幕下方、布冈夜蛾3所在位置的 Ocean Optics QE65PRO 光谱仪(Ocean Optics)(扩展数据图 7)。
RF 场的生成与测量
RF 场由定制天线和一台在噪声模式下工作的噪声发生器(DG1022;Rigol)产生。实验选用 2.5 Vpp(峰峰值电压)的输出强度(扩展数据图 5)。产生的 RF 场强度处于此前已证明会干扰夜间迁徙鸣禽磁罗盘定向的 RF 场强度和宽带频率范围内11,12(扩展数据表 3)。一根定制的环形天线内径约 51 cm,由同轴电缆(RG58C/U MIL-C-17 BNC connector)制成,经过精确设计以套在我们飞行模拟器实验场的外壁上。简言之,使用一根长 180 cm、一端带 BNC 接头的同轴电缆。将另一端(切割端)的编织屏蔽层剥开,露出中心导体。在确定适配实验场的周长(约 160 cm)后,在距 BNC 接头端 20 cm 处剥去 5 cm 长的电缆塑料护套,露出编织屏蔽层(扩展数据图 5a)。随后将中心导体连接到这段裸露的屏蔽层上,形成闭合回路。选择 2.5 Vpp 的噪声模式信号,然后通过一根 5 m 长的同轴电缆(BNC 接头)从控制室传输到天线(此时已套在实验场上),以产生大致 150 kHz 至 60 MHz 范围内的宽带噪声(扩展数据图 5c 和扩展数据表 3)。噪声发生器平时使用‘RF OFF’模式,仅在实验期间或测量期间切换到‘RF ON’模式。为校准 RF 噪声的强度,在德国 University of Oldenburg 的 RF 屏蔽实验舱29,30,55 中,使用经过校准的有源环形天线(Schwarzbeck Mess-Elektronik;HFS 1546,150 kHz 至 400 MHz),通过信号分析仪(Rhode and Schwarz;FSV3004 Signal and Spectrum Analyser(10 Hz 至 4 GHz))测量所产生的 RF 场。该天线通过一根带 N 接头的同轴电缆穿过实验舱壁连接到 FSV3004 信号分析仪,接头位于实验舱外侧。在一次实验测试轮次(5 min)的持续时间内测量 RF 场。为了与此前探讨宽带 RF 场对动物定向行为影响的其他研究11,29,30,55 进行比较,记录‘average’和‘maxhold’测量值。如先前所述55,对于 maxhold 测量,检测器设置为‘Maxpeak’;对于 average 测量,检测器设置为‘RMS’(均方根)。maxhold 和 average 宽带 RF 密度(\({\overline{b}}^{\max }\)、\(\overline{b}\))与强度(\({B}_{{\rm{r}}{\rm{m}}{\rm{s}}}^{max}\)、\({B}_{{\rm{r}}{\rm{m}}{\rm{s}}}\))的数值,使用参考文献 55 的方程 2.1 和 2.3 计算,以保证一致性和可比性(扩展数据表 3)。值得注意的是,‘RF OFF’模式(待机模式)给出的密度和强度测量值,与将发生器设为最低可能输出(0.004 Vpp)或关闭时获得的测量值相似(扩展数据图 5c 和扩展数据表 3)。
自然景观下天空中的行为实验
两台非磁性 Mouritsen–Frost 飞行模拟器(与实验室所用型号相同)被放置在 Glenhare 的一处山顶,用于记录系留的迁徙性 Bogong 蛾在不同滤光场地中、感受完整当地周围景观时的朝向方向(扩展数据图 3c)。四个飞行模拟器场地由透明的可透 UV 的 Perspex 圆柱体和盖子构成(直径 50 cm;高度 35 cm),每个场地都通过不同的滤光片组合完全封闭(侧面、盖子和底部):(1) 透明场地(一层 Lee filter 130,λ > 310 nm);(2) 阻 UV 场地(两层 Lee filter 226,λ > 380 nm);(3) 阻 UV–蓝光场地(两层 Lee filter 226 加一层 Lee filter 768,λ > 500 nm);以及 (4) 透明–中性密度场地(一层 Lee filter 130 加一层 Lee filter 211 0.9ND,λ > 310 nm)。一只系留的蛾被连接到安装在盖子中心的光学编码器上(如上所述)。为防止 Bogong 蛾——已知会使用星象罗盘3——获取天空线索,一个直径 30 cm 的黑色硬纸板圆盘被放置在系留测试蛾上方 3 cm 处,完全阻断其对视天象线索的视觉通路。每晚我们并行运行两台飞行模拟器。模拟器分别放置在两张铝制桌子上,桌面为透明的可透 UV 的 Perspex,彼此相距 8 m。两台飞行模拟器由计算机控制,这些计算机在距离两个场地 10 m 的黑色不透光立方帐篷内操作(扩展数据图 3a)。因此,该帐篷是(众多)景观特征之一,蛾在系留飞行期间可能从不同方向看到它。因此,在下面描述的实验中,每一批蛾都在两个场地中运行,以控制从每个场地看到的视觉地标差异可能造成的任何影响。
行为流程
室内行为流程
在全景墙场地中进行系留时,操作在昏暗红光下进行,以维持蛾的暗适应视觉状态。抬起固定光学编码器的场地盖子,用医用镊子夹住一只剧烈飞行的蛾,其钨丝柄通过一段 1.5 cm 长的细橡胶静脉医用管连接到编码器杆的下端,该管将柄与杆连接起来。手动将蛾的朝向对准磁北,并在软件中设为 0°(0° = 磁北)。使用定制软件控制的光学编码器记录了蛾在投影夜空下的飞行航向。数据以 5 Hz 采样,水平角分辨率为 0.9°。每只蛾在每种刺激条件下精确测试 5 min,并根据采样数据构建所得的虚拟飞行轨迹。
被选择用于分析的蛾必须满足三项事前标准,其中两项在实验前,一项在实验期间:(1) 系留柄必须完全垂直;(2) 翅膀扇动必须有力,且两翅振幅大而相等,表明接触胶未干扰翅膀;以及 (3) 蛾必须连续飞行满 5 min。如果蛾停止飞行,则轻敲场地以刺激其继续飞行。停止飞行四次的蛾被剔除,记录中止。
户外行为流程
室内实验所用的行为学方法和纳入标准被应用于户外。这些野外实验旨在表征 Bogong moths 在光过滤实验场地内体验真实地磁场和当地景观线索——具体为开阔草地、树木和起伏丘陵——时的迁徙行为。实验在2025年秋季(4月上旬和下旬的十余个夜晚)晴朗星空或局部多云的条件下进行,并在夜间的两个时段进行,以检验蛾的迁徙朝向是否受到光光谱的影响。
每晚,我们用大约40只 Bogong moths 进行实验,在两个实验阶段中于两个实验场地分别测试所有蛾。我们采用被试内平衡设计,每只蛾在两个阶段(两个实验场地中的每一个)均接受朝向测量,以控制个体差异(Extended Data Fig. 3c)。研究包括两个主要实验(实验1和实验2)和一个强度对照(实验3)。在实验1中,我们遮挡紫外光,同时比较两组各约20只蛾。在实验第1阶段,一组在透明实验场地中飞行(一层 Lee filter 130,λ > 310 nm),另一组在遮挡紫外光的实验场地中飞行(两层 Lee filter 226,λ > 380 nm)。在实验第2阶段,随后将两组对调到另一实验场地并重复实验(Extended Data Fig. 3c)。在实验2中,我们遮挡紫外光、紫光和蓝光,再次在第1阶段同时比较两组各约20只蛾,并在第2阶段将它们对调到另一实验场地(Extended Data Fig. 3c)。这次两个实验场地分别是透明实验场地和遮挡紫外—蓝光的实验场地(两层 filter 226 加一层 filter 768,λ > 500 nm;Lee Filters)。最后,在实验3中,我们对以下可能性进行了控制:实验1和2中观察到的任何定向障碍并非仅仅由紫外和蓝光阻挡滤光片造成的照明强度降低所引起,而不是由被削减的光谱本身所引起。为此,所有40只蛾均在透明—中性密度实验场地中飞行(一层 filter 130 加一层 filter 211 0.9ND,λ > 310 nm;Lee Filters),其内部强度降低到与紫外和紫外—蓝光光谱滤光片所造成的降低相似的水平。在所有实验中,蛾的瞬时朝向均以与室内实验相同的方式记录。在较早和较晚的实验之间,系留蛾被隔离并置于黑暗中,放在用热水袋保温的手提箱中。
使用分光光度计(QE65PRO;Ocean Optics)再次测量了辐照度和滤光片透射特性(Extended Data Fig. 3b)。每个实验场地的光谱透射均在自然星光照明下、于系留蛾的常规位置测量。
数据分析
下文所述分析所用数据可在线获取56。由于从雄蛾和雌蛾获得的结果没有统计学差异,结果被合并。
每只系留飞行蛾的瞬时航向(以及虚拟轨迹)都保存为文本文件。代表每只蛾平均朝向(α)和飞行路径指向性(r)的圆形图向量通过经典 Rayleigh 检验计算。r 值的正态性使用 Shapiro–Wilk 检验评估,并根据正态性结果,使用参数 t 检验或非参数 Wilcoxon 或 Kruskal–Wallis 检验进行组间比较。飞行路径在 R(v.4.4.3,https://www.r-project.org/)中可视化,并为每条轨迹计算平均朝向向量。为了同时利用飞行轨迹得出的平均方向(α)和指向性(r),我们使用自定义 R 脚本(由 H.C. 开发,改编自参考文献 53,56,57,58)应用了带 Bonferroni 多重比较校正的单侧 MMRT。由 MMRT 得出的 R* 值量化种群水平的指向性和朝向,表明受试蛾群体的飞行方向是否显著偏离随机。精确的 MMRT 导出 P 值使用 Moore 公式4,58(参考文献 57 中的公式 3.3)计算。为了比较不同条件下的飞行方向分布(例如,旋转 0° 或 180° 的磁场,以及不同滤光条件),我们在 R 中使用带 Bonferroni 校正的 Watson–Wheeler 检验59,以评估圆形分布的显著差异。
统计与可重复性
布冈夜蛾利用光依赖的地磁倾角罗盘导航
在开阔自然天空下获得的行为数据来自连续多个夜晚的独立实验(每晚使用新的蛾)。在实验室中利用 Stellarium 生成的投影星空获得的行为数据来自多个夜晚运行的独立实验,每晚的蛾群只使用一次。因此,所有这些实验都涉及生物学重复。样本量基于蛾的可获得性,每个实验至少使用 50 只蛾(最多达 130 只)。实验在没有盲法且没有特定随机化方案的情况下进行(除了随机选择用作重复的蛾)。由于实验程序和分析完全由计算机控制(不可能有人为干预或偏差),这些条件被认为有效盲法。然而,为了排除任何人为偏差的可能性,我们中未参与实验的一员(B.L.)编写了新的分析代码,并重新分析了一个盲法数据集,该数据集包含来自 16 个实验条件的 975 条飞行轨迹,每条轨迹有 1,500 个飞行航向(在 5 min 内每秒记录五次)(扩展数据图2和补充方法)。在重新分析之前,H.C.(执行了实验和原始分析)为所有 975 个轨迹文件分配了随机标识符(例如,Trajectory_1、Trajectory_2、…、Trajectory_975),并将 16 个实验条件的身份替换为任意条件代码(A、B、C、…、P)。将任意条件代码(A 到 P)与 16 个原始实验条件联系起来的密钥由 H.C. 保留,未向 B.L. 披露。此外,B.L. 在无法访问原始条件身份、结果或分析代码的情况下进行了分析。他独立编写了一个新的 R 脚本,用于计算每个