 Newshot
主要
昆虫害虫对作物生产造成损失并破坏植被4,5。在取食过程中,昆虫释放含有蛋白质和其他分子的口腔分泌物,这些分子可以激活或抑制宿主植物的防御6,7,8。消化酶水解细胞成分,为草食动物生成营养物质。这些分解产物也作为宿主衍生的损伤相关分子模式(DAMPs),激活植物模式识别受体9,10。鉴定宿主衍生的信号分子及其防御激活机制对于开发新的植物保护策略至关重要。
T2家族核糖核酸酶(RNaseT2)蛋白,优先在嘌呤和尿苷残基之间切割单链RNA,是古老酶类,广泛分布于生物体中,并在多种生物过程中发挥功能2,11。植物S-RNases介导自交不亲和性,属于该蛋白家族12。植物病原体也向宿主组织分泌核酸酶13,14。人类溶酶体RNaseT2产生嘌呤-2′,3′-环磷酸终止的寡核糖核苷酸,被Toll样受体8感知以激活先天免疫2。植物细胞内核苷酸结合和富含亮氨酸重复(NLR)免疫受体的Toll/白细胞介素-1受体(TIR)结构域对氧化烟酰胺腺嘌呤二核苷酸(NAD+)和核酸具有酶活性15,16,17,18,19。植物TIR结构域生成第二信使,如2′-ADPR和pRib-AMP,促进EDS1–植物抗毒素缺陷4(PAD4)–激活疾病抗性1(ADR1)复合物的形成,并触发疾病抗性15,20,21。激活的植物TIR还催化ADPr-ATP和di-ADPR的产生,导致EDS1-衰老相关基因101(SAG101)–N required gene 1(NRG1)的复合物形成,诱导植物细胞死亡16,22,23。植物TIR结构域还通过核酸酶活性合成2′,3′-cAMP和2′,3′-cGMP(2′,3′-cAMP/cGMP)。拟南芥nudix水解酶7(AtNUDT7)水解2′,3′-cAMP/cGMP,并在Nicotiana benthamiana中过表达时减弱TIR介导的细胞死亡3。然而,2′,3′-cAMP/cGMP对EDS1依赖性免疫的贡献仍然不明确。
植物富含甘氨酸的RNA结合蛋白(GRPs)包含N端的一个RNA识别基序(RRM
文章标题:一种植物 RNA 结合蛋白感知由昆虫效应子产生的 2′,3′-cNMP
正文: Nezara viridula(绿蝽)是一种多食性半翅目害虫,取食多种植物,包括具有重要经济价值的粮食、水果和蔬菜作物以及 Nicotiana 属物种。近年来,N. viridula 的种群数量在水稻田中有所增加。作为一种刺吸式叶肉取食者(图 1a),N. viridula 利用针状口针刺穿发育中的种子或幼叶,吸取营养并注入效应子29。为鉴定其分泌性酶,我们利用液相色谱–串联质谱(LC–MS/MS)对其口腔分泌物中的蛋白质进行了分析,鉴定出 22 种推定消化酶,其中 15 种基于信号肽预测(SignalP 3.0 服务器)和去冗余分析(Blastp)被判定为可能具有分泌性(扩展数据图 1a)。将这些蛋白在本氏烟草(N. benthamiana)叶片中瞬时表达后,鉴定出一种候选酶,该酶在农杆菌浸润后 3 天(dpi)内诱导严重的细胞死亡和活性氧(ROS)产生(扩展数据图 1b,c)。该蛋白与核糖核酸酶具有高度序列相似性,我们将其命名为 N. viridula ribonuclease 1(NVR1)。
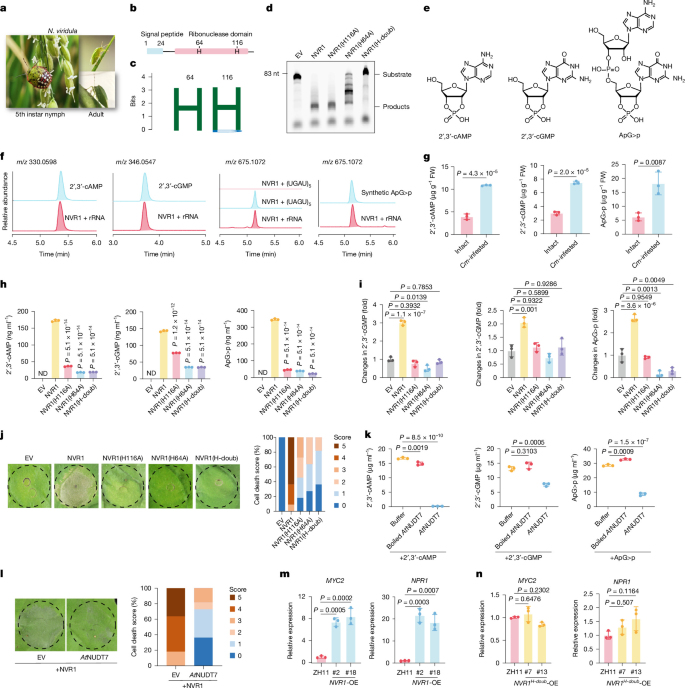
a,水稻穗上的 N. viridula 五龄若虫(左)和腰豆上的成虫(右)。b,NVR1 示意图,显示由 Signalp 3.0 预测的 N 端信号肽(氨基酸 1 至 24)和由 Pfam 预测的核酸酶催化区域(氨基酸 28 至 235)。H 表示催化活性组氨酸残基。c,真核生物 T2 RNase 中保守催化活性位点(H64 和 H116)的 Logo 图。d,经 NVR1、NVR1(H116A)、NVR1(H64A) 和 NVR1(H-doub) 消化的 RNA 的尿素-PAGE 分离。凝胶源数据见补充图 1。e,2′,3′-cAMP、2′,3′-cGMP 和 ApG>p 的分子结构。f,NVR1 产物与标准品的提取离子色谱比较。二核苷酸-2′,3′-环磷酸由 (UAGU)5 产生,但在 (UGAU)5 中检测不到。rRNA,核糖体 RNA。g,C. medinalis(Cm)三龄幼虫取食 2 小时后水稻叶片中 2′,3′-cAMP/cGMP 和 ApG>P 的定量。FW,鲜重。h,HPLC 检测转染空载体(EV)或野生型或突变型 NVR1 后体外产生的 2′,3′-cAMP/cGMP 和 ApG>p。ND,未测定。i,表达指定蛋白(空载体归一化为 1.0)2 天后本氏烟草叶片中 2′,3′-cAMP/cGMP 和 ApG>p 的定量。j,空载体或野生型或突变型 NVR1 诱导的本氏烟草叶片(3 dpi)细胞死亡。颜色编码的堆叠柱状图显示各细胞死亡评分的百分比(0–5,n = 11 片叶)。k,1 μM 活性及煮沸的 AtNUDT7 在 25 °C 下 16 小时内对 100 μM 2′,3′-cAMP/cGMP 和 ApG>p 的水解。l,AtNUDT7(322 个氨基酸)在与 NVR1 共表达三天后抑制了本氏烟草叶片中 NVR1 诱导的细胞死亡(评分同 j)。m,n,与野生型(ZH11)相比,NVR1-OE(m)和 NVR1H-doub-OE(n)株系中 MYC2 和 NPR1 的逆转录定量 PCR(RT–qPCR)。d,f 中数据为三次独立实验的代表性结果。g–i、k、m、n 中数据为 n = 3 个生物学独立重复(h、k)或样品(g、i、m、n)的平均值 ± 标准差。统计差异采用双尾 t 检验(g)或单因素方差分析及 Tukey 检验(h、i、k、m、n)确定。
NVR1 生成 2′,3′-cNMP 和 ApG>p
NVR1 被预测具有 N 端分泌信号肽,且无跨膜区域。使用蛋白质家族数据库(Pfam)分析显示其具有一个核糖核酸酶(RNase)结构域(图 1b),属于 RNaseT2 家族11。NVR1 在 N. viridula 唾液腺和被侵染的水稻植株中均被检测到,表明其在取食过程中被分泌到植物组织中(扩展数据图 1d)。NVR1 呈现核质分布模式(扩展数据图 1e)。
文章标题:一种植物 RNA 结合蛋白感知由昆虫效应子产生的 2′,3′-cNMP
正文: H64 和 H116 在来自哺乳动物、植食性昆虫、植物病原真菌和植物的 T2 RNase 中保守(图 1c 和扩展数据图 1f)。NVR1 在体外切割 Cy5 标记的拟南芥 tRNASer(83 nt),而 NVR1(H116A) 和 NVR1(H64A) 突变体分别表现出底物降解的轻度和强烈降低,双突变体 NVR1(H-doub) 几乎完全失活(图 1d),支持 H64 和 H116 作为关键催化残基11。随后使用高分辨率质谱鉴定 NVR1 催化反应的产物,结果显示 2′,3′-cAMP 和 2′,3′-cGMP 的积累,以及在正离子模式下质荷比(m/z)为 675.1072 的二核苷酸-2′,3′-环磷酸的积累(图 1e,f)。鉴于 RNaseT2 优先在嘌呤和尿苷之间切割单链 RNA,产生鸟苷或腺苷 2′,3′-环磷酸末端2,我们设计了两个寡核糖核苷酸 (UAGU)5 和 (UGAU)5 作为底物,以确定产物的结构。NVR1 对 (UAGU)5 表现出活性——但对 (UGAU)5 没有活性——在提取离子色谱模式下产生 5.1 min 的峰,该峰与 m/z 675.1072 处的二核苷酸-2′,3′-环磷酸峰相同,表明 NVR1 产生了 2′,3′-cGMP 末端的 AMP(ApG>p)。ApG>p 合成标准品在正离子模式下于 5.1 min 洗脱,m/z 为 675.1072,与 NVR1 产物一致(图 1f),并与串联质谱(MS2)谱匹配(扩展数据图 1g)。2′,3′-cAMP/cGMP 和 ApG>P 的积累在昆虫取食后 2 h 内迅速在水稻叶片中被诱导(图 1g)。
NVR1 的 2′,3′-cNMP 和 ApG>p 合酶活性依赖于两个催化组氨酸 H64 和 H116(图 1h)。高效液相色谱(HPLC)–质谱和基质辅助激光解吸/电离(MALDI)分析显示,表达空载体或催化失活 NVR1 突变体的本氏烟草叶片积累的 2′,3′-cAMP/cGMP 和 ApG>p 远少于表达野生型 NVR1 的叶片(图 1i 和扩展数据图 1h)。表达 NVR1 突变体的叶片在诱导植物细胞死亡方面受损(图 1j 和扩展数据图 1i)。AtNUDT7 水解 2′,3′-cAMP/cGMP 和 ApG>p(图 1k)。与 AtNUDT7 共表达在本氏烟草中于 3 dpi 减弱 NVR1 的细胞死亡活性,坏死在 6 dpi 完成(图 1l 和扩展数据图 1j,k)。这些结果表明 NVR1 的酶活性是植物细胞死亡的原因。
NVR1 触发植物防御反应
为了研究植物对害虫 RNase 的响应,我们生成了过表达 NVR1–GFP 的水稻 NVR1-GFP 转基因植株(扩展数据图 2a,b)。RNA 测序(RNA-seq)分析显示,与生物刺激、茉莉酸和防御相关的基因在表达 NVR1 的植株中显著富集(扩展数据图 2c)。MYC2、NPR1、COI1 和 ERF1(图 1m 和扩展数据图 2d)上调,茉莉酸和水杨酸水平升高(扩展数据图 2e)。Cnaphalocrocis medinalis 核糖核酸酶 1(CMR1)是 NVR1 的直系同源物,由水稻鳞翅目害虫 Cnaphalocrocis medinalis 表达,在口腔分泌物中检测到,并且也产生 2′,3′-cAMP/cGMP(扩展数据图 2f,g),与水稻叶片取食数据一致(图 1g)。鉴于这种功能保守性,我们评估了 NVR1 转基因株系对 C. medinalis 的抗性。幼虫在表达 NVR1 的植株上比在对照上增重更少(扩展数据图 2h)。成年雌虫在 NVR1 转基因株系上产卵更少,幼虫偏好取食对照植株(扩展数据图 2i,j)。
表达 NVR1 的植株矮化且分蘖减少,这些表型与组成型防御激活带来的生长代价相关,而表达催化失活 NVR1(H-doub) 的水稻植株未上调防御基因且生长正常(图 1n 和扩展数据图 2k,l)。这些结果表明,NVR1 在水稻中的异源表达激发了防御反应并增强了植株对昆虫取食的抗性,且 NVR1 的催化活性对免疫激活至关重要。
NIB1 与 NVR1 互作
为揭示 NVR1 诱导植物防御反应的分子机制,我们通过免疫沉淀和质谱(IP–MS)筛选了可与 NVR1 结合的植物蛋白。NVR1 互作 RNA 结合蛋白 1(NIB1 (Os03t0670700-04),又称 OsGRP330,31)显示出强互作信号(扩展数据图 3a,b)。NIB1 是一种 GRP,由 N 端 RRM 和 C 端 GRR 组成,其 N 端序列与 AtGRP726,27 具有 80% 的一致性(扩展数据图 3c)。微量热泳动(MST)表明 NIB1 在体外与 NVR1 直接互作(图 2a 和扩展数据图 3d),共免疫沉淀证实了其在植物体内的互作(图 2b)。
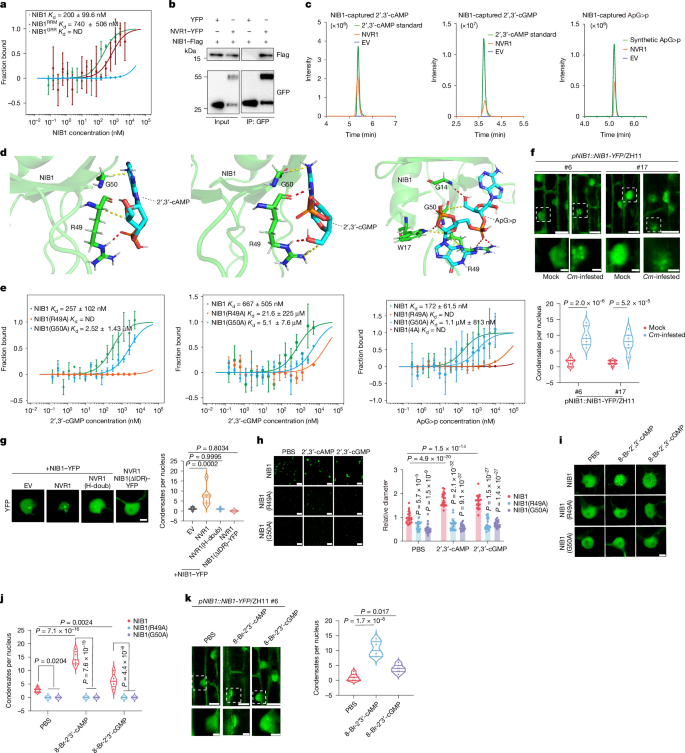
a,MST 实验显示 NHS–NVR1–Trigger factor (TF) 在体外与 NIB1 的 RRM(NIB1RRM)互作。Kd 为解离常数。b,共免疫沉淀实验中 NVR1–YFP 与 NIB1–Flag 互作。凝胶源数据见补充图 1。IP,免疫沉淀。c,高分辨率质谱检测 NIB1 与 NIB1–GST(100 μg)孵育 1 h 后从 NVR1 催化产物中捕获的 2′,3′-cAMP/cGMP 和 ApG>p。TF 标签空载体作为阴性对照。d,2′,3′-cAMP/cGMP 和 ApG>p 在 NIB1 中的结构建模。NIB1 通过 R49 和 G50 结合 2′,3′-cAMP/cGMP,并通过 R49、G50、G14 和 W17 结合 ApG>p。e,MST 实验显示 NIB1 及其突变体对 2′,3′-cAMP/cGMP 和 ApG>p 的结合。f,独立 T1 pNIB1::NIB1-YFP/ZH11 转基因水稻品系根伸长区中,三龄 C. medinalis 幼虫取食 6 h 后的 NIB1–YFP 凝聚体。右,每核凝聚体定量。g,左,NVR1 促进 N. benthamiana 叶片中含 NIB1 的核凝聚体形成,于 48 hpi 拍照。空载体作为对照。比例尺,5 µm。右,每核凝聚体定量。h,左,2′,3′-cNMP(2 nM)在体外诱导 NIB1 相分离,但不诱导结合突变体(各 20 μM)。右,相对液滴直径(PBS 归一化为 1.0)。比例尺,10 µm。i,j,8-Br-2′,3′-cAMP/cGMP(50 μM)处理 2 h 后 N. benthamiana 叶片中 NIB1 核凝聚体的图像(i)和定量(j)。比例尺,5 µm。k,左,T1 pNIB1::NIB1-YFP/ZH11 水稻品系经 50 µM 8-Br-2′,3′-cAMP 或 8-Br-2′,3′-cGMP 处理 6 h 后根伸长区中的 NIB1–YFP 凝聚体。右,每核凝聚体定量。f 和 k 中比例尺,10 μm(上)和 3 μm(下)。数据为均值 ±s.d.;n = 3 个生物学独立重复(a,e)、7 个细胞核(f,g,k)、20 个液滴(h)或 5 个细胞核(j)。统计分析采用双因素 ANOVA 加 Tukey 事后检验(f,h,j)或单因素 ANOVA 加 Tukey 多重比较检验(g,k)。b,c 中的实验独立重复三次,结果相似。
分裂荧光素酶互补(SLC)显示,NIB1 的 RRM(而非 GRR)与 NVR1 相互作用(Extended Data Fig. 3e),这与 MST 数据一致(Fig. 2a)。AlphaFold2 预测 RRM 残基 R22 为接触位点(Extended Data Fig. 3f),而 NIB1(R22A) 突变体在植物体内消除了该相互作用(Extended Data Fig. 3g)。NVR1 与 NIB1 强烈相互作用,且不依赖其催化活性(Extended Data Fig. 3h–j)。
鉴于 NVR1 样分泌型 T2 核糖核酸酶在昆虫和植物病原真菌中广泛存在(Extended Data Fig. 1f),且 GRP 在陆生植物中保守(Extended Data Fig. 3k),我们研究了 RNaseT2–GRP 相互作用是否是一种普遍现象。我们测试了来自害虫 C. medinalis(CMR1)和 Helicoverpa armigera(HAR1)以及真菌病原体 Magnaporthe oryzae(MOR1)的分泌型 RNase T2。SLC 实验证明,植物 GRP 对 T2 家族 RNase 的识别是普遍的(Extended Data Fig. 3l,m)。
NIB1 结合 2′,3′-cAMP/cGMP 和 ApG>p
鉴于 GRP 结合 RNA 片段27,且 NVR1 需要其 RNase 活性来引发防御,我们研究了 NIB1 与 RNaseT2 产物的潜在结合。将 NIB1–GST 与 NVR1 产物孵育,变性以提取结合分子,并通过高分辨率质谱分析。值得注意的是,观察到 2′,3′-cAMP/cGMP 和 ApG>p 的高强度信号(Fig. 2c)。NIB1 与配体的结构建模鉴定出 RRM 结构域环中两个相邻残基 R49 和 G50 负责 2′,3′-cAMP/cGMP 识别(Fig. 2d 和 Extended Data Fig. 4a)。R49 是已知的 RNA 结合位点27,而在我们的模型中,G50 同时接触 2′,3′-cAMP 和 2′,3′-cGMP。G14 和 W17 是 ApG>p 的额外识别位点(Fig. 2d 和 Extended Data Fig. 4a)。在使用 2′,3′-cAMP/cGMP 和 ApG>p 的 MST 实验中,NHS 标记的 NIB1 表现出高结合亲和力。将任一残基替换为丙氨酸(NIB1(R49A) 或 NIB1(G50A))显著降低了结合亲和力,而 NIB1(R49A/G50A/G14A/W17A)(以下简称 NIB1(4A))突变完全消除了 ApG>p 结合(Fig. 2e 和 Extended Data Fig. 3d)。G14、W17、R49 和 G50 在陆生植物的一组 GRP 中高度保守(Extended Data Fig. 3n),表明这些残基在配体识别中具有关键作用。NIB1(R49A) 突变损害了 NIB1 与 RNA 和 2′,3-环核苷酸的结合,而 NIB1(G50A) 突变体保持了对 FLAGELLIN SENSITIVE2 (FLS2) 3′ 非翻译区(UTR)的结合亲和力,同时对 2′,3-环核苷酸的结合强烈受损(Extended Data Fig. 4b)。因此,NIB1 对 2′,3′-cAMP/cGMP 和 RNA 采用了既有共享又有区别的识别机制。
在以 2′,3′-cAMP 作为阳性对照的 MST 实验中,NIB1 不结合 3′,5′-cAMP、8-Br-3′,5′-cAMP、AMP 或 2′,3′-cGAMP32(Extended Data Fig. 4c–g)。与 2′,3′-cGMP 相比,NIB1 对 3′,5′-cGMP 和 GMP 的结合亲和力分别弱 4 倍和 34 倍(Fig. 2e 和 Extended Data Fig. 4h,i)。
2′,3′-cNMP 驱动 NIB1 相分离
NIB1 含有一个介导相分离的 C 端内在无序区(IDR)(Extended
一种植物RNA结合蛋白感知由昆虫效应子产生的2′,3′-cNMP
为确定食草行为是否在植物体内诱导NIB1凝聚,我们构建了两个pNIB1::NIB1-YFP/ZH11水稻株系(扩展数据图5g)。在第三龄C. medinalis幼虫取食6小时后,可清晰观察到明显的NIB1核凝聚体(图2f),表明这种相分离是对食草行为的生理相关响应。与体外及本氏烟草细胞核中的观察结果相似,pNIB1::NIB1-YFP/ZH11细胞核中的NIB1–YFP凝聚体在光漂白后荧光恢复(扩展数据图5h)。
我们进一步分析了NVR1催化活性与NIB1凝聚之间的相互作用。野生型NIB1–YFP可将NVR1–mCherry吸收至液滴中,而C端IDR截短的NIB1(ΔIDR)–YFP则不能(扩展数据图5i–k)。在存在NVR1–mCherry时,带有核酸污染的纯化NIB1–YFP蛋白液滴增大,而无核酸的NIB1–YFP液滴则不然,催化失活的NVR1(H-doub)–mCherry未产生此种效应(扩展数据图5i–k)。NIB1–YFP呈核质定位,NVR1显著增强其核积累,约70%的受检细胞核含有明显的凝聚体。N端YFP标记的NIB1显示出相似的定位模式(扩展数据图5l–n)。免疫印迹进一步证实NVR1促进NIB1的核积累(扩展数据图5o)。NIB1–NVR1(H-doub)或NIB1(ΔIDR)–NVR1未观察到核凝聚体(图2g),揭示NVR1的RNase活性对于促进细胞核中NIB1相分离至关重要。在后续分析中,我们聚焦于核内NIB1凝聚体。
多价相互作用驱动相分离并局部浓缩分子,如dsDNA依赖性cGAS激活和NAD+/ATP依赖性植物TIR激活32,34。我们研究了2′,3′-cNMP和ApG>p是否会诱导NIB1相分离。NIB1(R49A)–YFP和NIB1(G50A)–YFP液滴在有无NVR1–mCherry时均小于NIB1–YFP液滴(扩展数据图6a)。在本氏烟草中与NVR1共表达时,NIB1(R49A)、NIB1(G50A)和NIB1(4A)未产生闪烁的核凝聚体(扩展数据图6b),暗示NIB1相分离涉及2′,3′-cNMP和ApG>p的结合。与此一致,2′,3′-cNMP和ApG>p(各2 nM)在体外促进NIB1相分离(图2h及扩展数据图6c,d),用8-Br-2′,3′-cNMP或ApG>p处理增加了本氏烟草细胞中的核凝聚体(图2i,j及扩展数据图6e)。值得注意的是,外源施加50 µM 8-Br-2′,3′-cNMP和ApG>p 6小时,在pNIB1::NIB1-YFP/ZH11水稻植株中诱导了明显的核凝聚体(图2k及扩展数据图6f),表明2′,3′-cNMP和ApG>p作为NIB1的激动剂促进相分离。
我们进一步监测了核苷酸类似物处理后本氏烟草叶片中NIB1–YFP的凝聚。与MST结果一致(扩展数据图4c–g),3′,5′-cAMP、8-Br-3′,5′-cAMP、AMP和2′3′-cGAMP未触发凝聚体形成,而3′,5′-cGMP和GMP诱导的凝聚体远少于2′,3′-cAMP(扩展数据图6g,h)。与NVR1、水稻植株RNA(OsRNA)和2′,3′-cAMP共孵育在体外产生更大的NIB1–YFP液滴,这需要NVR1催化活性、NIB1结合位点和2′,3′-cAMP才能达到最佳效果(扩展数据图6i)。体外重构揭示,NIB1–YFP形成液滴依赖于2′,3′-cAMP、OsRNA和盐,以及蛋白和大分子拥挤剂浓度(扩展数据图6j–m)。
为探究 NIB1 液–液相分离的生化后果,我们考察了其对 NVR1 酶活性的影响。在 NIB1 存在时 NVR1 活性更高,且底物降解随 NIB1 浓度升高而增加(图 3a)。当删除含 C 端 IDR 的片段(NIB1(ΔIDR))后,NIB1 对 NVR1 活性的影响减弱或可忽略(图 3b),提示 IDR 引导 NIB1 增强 NVR1 的酶活性。与此一致,NVR1–NIB1 复合物合成的 2′,3′-cAMP/cGMP 和 ApG>p 量高于单独的 NVR1,且这一活性增强同样需要 NIB1 中的 IDR(图 3c)。类似地,在本氏烟草叶片中共表达时,全长 NIB1 相比 NIB1(ΔIDR) 显著增强了 NVR1 生成 2′,3′-cNMP 的能力(扩展数据图 6n)。随后我们评估了 NIB1 对 NVR1 诱导的本氏烟草细胞死亡的影响,发现从 NIB1 中去除 IDR 在很大程度上消除了其对 NVR1 诱导的植物细胞死亡的增强作用(扩展数据图 6o,p)。此外,NIB1(R49A) 和 NIB1(G50A) 突变体也表现出对 NVR1 催化加速作用的减弱(图 3d)以及对 NVR1 诱导的植物细胞死亡的增强作用的减弱(扩展数据图 6q,r)。总之,具有催化活性的 NVR1 促进 NIB1 相分离,而后者反过来增强 NVR1 降解 RNA 以及合成 2′,3′-cAMP/cGMP 和 ApG>p 的活性,从而通过正反馈环路诱导植物细胞死亡。在这一相互增强的互作中,NIB1 利用 IDR 和 RRM 中的 RNA 结合位点来放大并转导 NVR1 产生的信号分子。
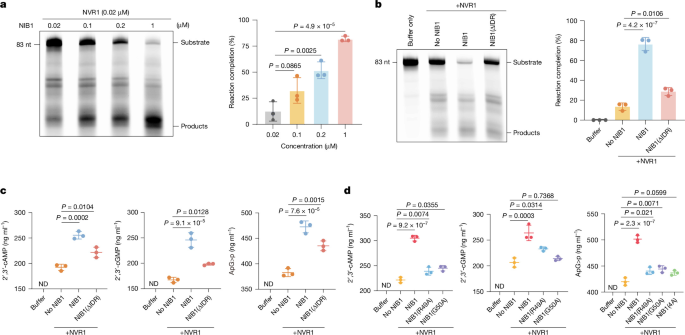
a,左,随 NIB1 浓度升高,NVR1(0.02 μM)对 Cy5–tRNA(2 μM)的降解。右,25 分钟后的反应完成度,按(水解 RNA 强度)/(未消化 RNA 强度)× 100% 计算。凝胶原始数据见补充图 1。b,左,在 25 分钟测定中,NIB1(1 μM)而非 NIB1(ΔIDR) 刺激了 NVR1 活性。右,条带强度定量。凝胶原始数据见补充图 1。c,NVR1(1 μM)与 NIB1 或 NIB1(ΔIDR)(1 μM)共孵育 25 分钟后生成的 2′,3′-cAMP/cGMP 和 ApG>p。d,NIB1(R49A)、NIB1(G50A) 和 NIB1(4A)(1 μM)促进 2′,3′-cAMP/cGMP 和 ApG>p 生成的活性被 NVR1(1 μM)削弱,以 rRNA 为底物(20 μl 中 2 μg)测定 25 分钟。a–d 中数据为 n = 3 个生物学独立重复的均值 ± s.d.。统计差异采用单因素 ANOVA 结合 Tukey 多重比较检验确定。
NIB1 激活植物防御反应
NIB1 在水稻多个组织中高表达(扩展数据图 7a)。为研究 NIB1 在植物防御中的功能,我们利用 CRISPR–Cas9 构建了 NIB1 敲除(NIB1-KO)和 NIB1 过表达(NIB1-OE)水稻株系(图 4a 及扩展数据图 7b–d)。NIB1-OE 与 NVR1-OE 植株表现出相似的转录变化,上调基因中有 553 个(59%)重叠(图 4b),包括与生物刺激响应、茉莉酸及防御相关的基因(图 4c)。MYC2、NPR1、COI1 和 ERF1 在 NIB1-KO 植株中下调,而在 NIB1-OE 植株中显著上调(扩展数据图 7e),这与 RNA-seq 数据及防御激素水杨酸和茉莉酸的水平一致(图 4d)。C. medinalis 幼虫取食 NIB1-KO 株系后体重增加多于取食野生型植株;相反,其在 NIB1-OE 植株上生长受阻(图 4e)。在产卵和取食选择试验中,雌虫和幼虫偏好 NIB1-KO 而非野生型和 NIB1-OE 植株(扩展数据图 7f,g)。昆虫取食强烈诱导野生型水稻中 MYC2 的表达,但在 NIB1-KO 突变体中诱导明显减弱(图 4f)。NIB1-OE 植株分蘖减少,部分类似于 NVR1-OE 表型(扩展数据图 2l),而 NIB1-KO 植株生长良好且分蘖增多(图 4a 及扩展数据图 7h),这可能反映了二者免疫强度的差异。这些结果表明 NIB1 正向调控植物防御反应。
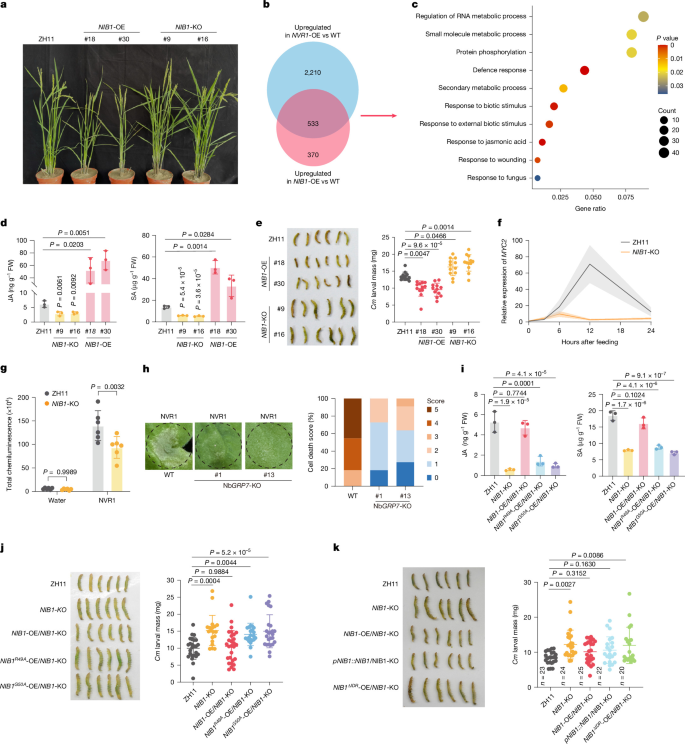
a,ZH11、NIB1-KO 和 NIB1-OE 株系的代表性植株。b,维恩图显示 NVR1-OE 与 NIB1-OE 水稻叶片中上调基因的重叠情况。WT,野生型。c,NIB1-OE 与 NVR1-OE 水稻共有上调基因的基因本体(GO)分析。P < 0.05。d,利用 HPLC 检测的 ZH11、NIB1-KO 和 NIB1-OE 叶片中茉莉酸(JA)和水杨酸(SA)含量。e,取食 12 日龄水稻植株 3 天的 C. medinalis 三龄幼虫体重(右)(左)。f,C. medinalis 三龄幼虫取食期间,MYC2 表达在 ZH11 叶片中显著增加,但在 NIB1-KO 叶片中增加较弱。g,与野生型 ZH11 叶片相比,NVR1(1 μM)处理在 30 分钟试验中于 NIB1-KO 水稻叶片中引发的 ROS 爆发强度较低。h,右,NVR1 诱导的细胞死亡在 NbGRP7-KO 叶片中减弱(3 dpi)。右,颜色编码的堆叠条形图显示各细胞死亡评分(0–5;n = 11 片叶)的百分比。i,12 日龄水稻植株中 ZH11、NIB1-KO 以及表达 NIB1、NIB1R49A 或 NIB1G50A 的 NIB1-KO 叶片的茉莉酸和水杨酸含量。j,2′,3′-cNMP 结合突变削弱了 NIB1 介导的抗虫取食能力。12 日龄水稻植株接种 C. medinalis 三龄幼虫三天。k,过表达 NIB1(ΔIDR) 未能恢复 NIB1-KO 植株中受损的抗虫性。三龄幼虫在水稻植株上放置三天后称重。数据为平均值 ± s.d.。样本量:n = 3 个生物学独立样本(d,i);n = 12(e)和 n = 19(j)头幼虫;n = 6(g)。统计差异通过双因素 ANOVA 及 Tukey 事后检验(g)、单因素 ANOVA 及 Tukey(d,e,i,j)或 Dunnett(k)多重比较检验确定。
我们随后研究了 NVR1 诱导的植物防御反应是否依赖于 NIB1 的存在。用纯化的 NVR1 处理水稻植株可诱导 ROS 产生,而在 NIB1-KO 株系中该反应减弱(图 4g)。一致地,与野生型 N. benthamiana 相比,NVR1 诱导的细胞死亡在 NbGRP7-KO 叶片中减轻(图 4h 及扩展数据图 7i,j)。因此,RNA 结合蛋白 NIB1 介导 NVR1 依赖的植物防御反应诱导。
为了进一步确定NIB1是否感知2′,3′-cNMP和ApG>p以介导NVR1诱导的免疫激活,我们在NIB1-KO水稻植株中构建了过表达互补系,包括野生型NIB1、NIB1R49A和NIB1G50A。这两个识别缺陷互补系无法恢复NIB1-KO突变体的免疫反应,表现为防御激素积累(图4i)、抗虫性(图4j和扩展数据图8a,b)以及MYC2、COI1和NPR1的表达(扩展数据图8c)。在野生型水稻植株中表达NIB1R49A和NIB1G50A并未导致这些防御基因的明显上调(扩展数据图8d,e)。这些结果共同表明,NIB1激活植物对昆虫取食的防御,并且感知2′,3′-cNMP和ApG>p对NIB1的这一免疫功能至关重要。
用NIB1(ΔIDR)进行的MST实验显示出与野生型NIB1相似的对2′,3′-cAMP/cGMP和ApG>P的结合亲和力(图2e和扩展数据图8f)。然而,在NIB1-KO水稻植株中过表达NIB1(ΔIDR)–YFP并未恢复受损的抗虫性(图4k)。此外,用50 µM 8-Br-2′,3′-cAMP处理在pNIB1::NIB1-YFP/NIB1-KO植株中诱导了凝聚体形成,但在35S::NIB1ΔIDR-YFP/NIB1-KO植株中没有(扩展数据图8g,h)。因此,通过RRM进行的配体识别和随后通过IDR进行的相分离对于NIB1依赖的防御反应都是必需的。
NIB1与免疫蛋白EDS1相互作用
为了将NVR1–NIB1模块与植物防御网络联系起来,我们对共表达NIB1–YFP和NVR1的叶片进行了IP–MS。EDS1、CDPK和MAPK6被鉴定为NIB1的相互作用蛋白(扩展数据图9a)。与NVR1相互作用组比较显示,共享组分富集于食草动物响应通路(扩展数据图9b)。
EDS1是一个核心免疫信号节点35,36,37。在SLC实验中,NIB1与水稻EDS1相互作用(扩展数据图9c)。在N. benthamiana中,EDS1–YFP与NIB1–Flag共免疫沉淀(图5a),并且His–N
a,NIB1 与 EDS1 在 N. benthamiana 中的免疫共沉淀。凝胶源数据见 Supplementary Fig. 1。b,左图,BiFC 实验显示有活性的 NVR1,而非无活性的 NVR1(H-doub) 突变体,增强了核内 NIB1–EDS1 互作。右图,相对核荧光(空载体归一化为 1.0)。c,左图,有活性的 NVR1 促进 EDS1 招募到 N. benthamiana 中 NIB1 核凝聚体。中图,每个细胞核的凝聚体数量。右图,空载体、NVR1 或 NVR1(H-doub) 条件下 NIB1 和 EDS1 的分配系数。mCh,mCherry。d,ZH11 和 eds1 叶片中水杨酸和茉莉酸含量。e,CR-eds1 叶片在有无 C. medinalis 取食 6 h 条件下的 MYC2 表达(ZH11 设为 1)。f,eds1 植株抗性降低,通过取食 3 天后 C. medinalis 幼虫体重评估。g,ZH11 叶片、NIB1-OE ZH11 叶片和 NIB1-OE CR-eds1 叶片中 PR1 和 MYC2 的 RT–qPCR。h,野生型、NIB1-KO 和 CR-eds1 叶片用水、8-Br-2′,3′-cAMP/cGMP、ApG>p 或 8-Br-AMP(各 50 μM)处理 6 h 后 PR1 和 MYC2 表达。i,野生型、NbGRP7 和 epss 叶片用水或 8-Br-2′,3′-cAMP 处理 6 h 后 NbPR1 和 NbMYC2 表达。j,k,喷洒 50 μM 8-Br-2′,3′-cAMP 增强了实验室(j)和稻田(k)中的植物抗虫性,表现为以水或 8-Br-2′,3′-cAMP 处理的 ZH11 植株饲喂的 C. medinalis 三龄幼虫生长。l,GRP 在植物对昆虫口腔分泌 RNaseT2 的防御反应中的拟议模型。数据为平均值 ± s.d.。n = 3 个生物学独立样本(d,e,g–i);n = 6(b)或 8(c,中图)个细胞核;n = 20 个凝聚体(c,右图);n = 11(f)或 12(j,k)头幼虫。a 中结果代表三次独立实验;j,k 中实验重复两次。统计差异采用双尾 t 检验(d–f,j,k);单因素 ANOVA 结合 Tukey 多重比较检验(b,c,g);或双因素 ANOVA 结合 Benjamini、Krieger 和 Yekutieli 的两阶段线性递增程序(h,i)分析。比例尺,10 μm(b)和 5 μm(c)。
由 CRISPR–Cas9 生成的水稻 CR-eds1 突变体积累较低水平的茉莉酸和水杨酸(Fig. 5d),并表达较低水平的 COI1、NPR1 和 ERF1(Extended Data Fig. 9h–j)。水稻 CR-eds1 突变体中响应昆虫取食的 MYC2 表达诱导极小(Fig. 5e)。CR-eds1 植株对 C. medinalis 更易感(Fig. 5f 和 Extended Data Fig. 9k,l),表明水稻 EDS1 在抗虫性中具有关键作用。
NIB1 过表达的免疫激活表型在水稻 eds1-KO 突变体中高度减弱,并且 NIB1 触发的防御基因 PR1、MYC2、COI1、NPR1 和 ERF1 诱导在 CR-eds1 水稻植株中降低(Fig. 5g 和 Extended Data Fig. 9m,n)。用 8-Br-2′,3′-cAMP/cGMP 和 ApG>p 处理诱导了水稻叶片中 PR1 和 MYC2 的表达,但这种诱导在 NIB1-KO 和 CR-eds1 植株中受损(Fig. 5h)。类似地,8-Br-2′,3′-cAMP 处理上调了野生型 N. benthamiana 中 NbPR1 和 NbMYC2 的表达,但在 NbGRP7-KO 或 N. benthamiana epss(eds1a、pad4、sag101a、sag101b)突变体中未上调(Fig. 5i)。对用 8-Br-2′,3′-cAMP 处理的 N. benthamiana 野生型、NbGRP7-KO 和 N. benthamiana epss 叶片进行 RNA-seq 分析显示,在野生型 N. benthamiana 中观察到的差异基因表达在 NbGRP7-KO 和 N. benthamiana epss 突变体中基本缺失(Extended Data Fig. 9o,p)。上调基因主要富集于防御通路(Extended Data Fig. 9q)。这些数据表明,EDS1 和 NIB1 是 2′,3′-cAMP
文章标题:一种植物 RNA 结合蛋白感知由昆虫效应子产生的 2′,3′-cNMP
正文: 水稻中食草动物诱导的内源 2′,3′-cAMP 浓度达到约 21 μM(图 1g),与我们实验中所用的 50 μM 浓度相当。用 21 μM 8-Br-2′,3′-cAMP 处理本氏烟叶片 6 h,可将 NbPR1 和 NbMYC2 上调至与 50 µM 2′,3′-cAMP 处理相似的水平。因此,食草动物诱导的 2′,3′-cAMP 内源积累在生理上足以引发防御反应(扩展数据图 9r)。通过喷雾外源施用 50 μM 8-Br-2′,3′-cAMP,在实验室和稻田条件下均显著增强了植物对食草动物的抗性(图 5j,k 和扩展数据图 9s)。
鉴于植物 TIR 蛋白发挥 2′,3′-cAMP/cGMP 合酶的功能3,我们在 NbGRP7-KO 株系中表达拟南芥 RPS4 的 TIR 结构域(RPS4TIR),以检验 TIR 诱导的免疫是否也涉及 NIB1 或同源 GRP。拟南芥 RPS4TIR 在 NbGRP7-KO 叶片中诱导的细胞死亡在浸润后 36 h(hpi)时表现出轻微减弱,但到 56 hpi 时已明显且完全(扩展数据图 10a–c)。水稻仅含 TIR 的蛋白 OsTIR 所触发的细胞死亡,在 40 hpi 观察时于 NbGRP7/NbGRP8-KO 突变体中也略有减弱(扩展数据图 10d–g),到 68 hpi 时细胞死亡明显且完全(扩展数据图 10h)。这些结果提示 GRP 在感知以 2′,3′-环磷酸末端修饰的单核苷酸和二核苷酸中具有普遍作用。总之,我们的结果表明,GRP 感知 2′,3′-cAMP/cGMP 和 ApG>p 的核酸酶产物,参与激活 EDS1 依赖的信号通路(图 5l)。
讨论
植物表达许多细胞表面和胞内免疫受体,以感知外来分子并激活防御38,39。在这里,我们发现水稻 GRP NIB1 与入侵的 RNaseT2 相互作用,并感知 2′,3′-cAMP/cGMP 和 ApG>p 以诱导植物防御。在刺吸式害虫绿盲蝽(Apolygus lucorum)的口腔分泌物(ALR1;数据未显示)和咀嚼式昆虫稻纵卷叶螟(C. medinalis)中均存在 NVR1 同源物,提示 T2 家族核糖核酸酶效应子在分化的取食类型间保守,并可能是植物–昆虫互作中广泛部署的策略。鉴于 2′,3′-cAMP/cGMP 参与非生物胁迫40,41,42,43,GRP 在利用生物和非生物胁迫中的作用值得进一步研究。植物是否以及如何区分不同来源的第二信使,也是需要解决的重要问题。
凝聚体或无膜区室参与多种植物发育和胁迫响应过程44,45,46,47。NIB1 作为传感器,感知 2′,3′-cAMP/cGMP 和 ApG>p,并形成核内凝聚体,招募核心免疫调控因子 EDS135,36,37 并激活下游信号通路,凸显了蛋白相分离作为响应第二信使的一种机制。我们的研究聚焦于核内 NIB1 的免疫功能,而其细胞质凝聚体的生物学作用值得未来研究。外源喷雾这些 RNA 降解来源的信号分子触发了植物防御反应,凸显了它们作为免疫激活剂的应用潜力。我们的研究为探索 RNase 产物参与植物防御、适应和发育打开了大门。
植物 TIR 催化和 NAD+ 衍生产物诱导 EDS1–SAG101–NRG1 和 EDS1–PAD4–ADR1 异源三聚体的形成,以及 ADR1 和 NRG1 在质膜上作为钙通道的寡聚化,从而赋予免疫。TIR 核酸酶衍生的 2′,3′-cAMP/cGMP 与 EDS1 之间的联系仍不清楚,且 EDS1 在 TIR 介导的免疫中的核功能尚不明确。我们未发表的数据显示,2′,3′-cAMP/cGMP 不促进 EDS1–SAG101–NRG1 或 EDS1–PAD4–ADR1 异源三聚体的形成,这与所提出的 2′,3′-cAMP/cGMP 起放大而非启动 TIR 信号传导作用的观点一致3。在细菌中,2′,3′-cAMP/cGMP 已被证明可调节转录因子活性48。2′,3′-cAMP/cGMP 诱导的细胞核内 NIB1 凝聚体招募 EDS1 以触发防御,可能通过转录调节实现,这为植物 TIR 核酸酶活性的生物学相关性提供了一种可能解释。植物 TIR-only 蛋白而非 TIR–NLR 受体具有核酸酶活性——因此,TIR 核酸酶活性和 2′,3′-cAMP/cGMP 可能参与 TIR-only 介导的基础免疫,但不参与 TIR–NLR 介导的效应子触发免疫3,49,这与 GRPs 对 N. benthamiana 中 TIR 诱导的细胞死亡表型贡献较弱一致。T2 RNase NVR1 产生 ApG>p,植物 TIR-only 蛋白的核酸酶产物谱有待进一步研究。未来研究可探究其他 GRPs 是否也参与感知此类核酸酶产物及其相互作用。对 NIB1 凝聚体组分的详细分析将为理解这一基于核酸酶的防御途径增加有价值的知识。
植食性昆虫,尤其是叶肉取食者,除机械损伤外,还通过向植物组织注入消化酶从生物聚合物产生各种小分子。DAMPs 的检测对植物激活防御程序至关重要。尽管表达 Bacillus thuringiensis 杀虫蛋白的转基因作物的大规模种植已在田间有效控制了鳞翅目咀嚼式昆虫,但异翅目叶肉取食者,如
N. viridula 采集自浙江省农业科学院杭州农场,并在约 28 °C 的生长箱中用芸豆和玉米饲养。C. medinalis 最初于 2022 年采集自中国上海松江的实验农场。为保持遗传均一性和敏感性,这些昆虫在未接触农药的情况下连续实验室饲养超过 15 代。幼虫用新鲜小麦苗饲养,成虫供给 15% 蜂蜜溶液。种群维持在严格控制的 26 °C、12 h 光照:12 h 黑暗光周期条件下。
N. viridula 口腔分泌物蛋白的鉴定
N. viridula 唾液采用 Parafilm 袋饲喂法收集。饥饿 24 h 后,向 20 头成虫 N. viridula 提供 1 ml 包裹在 Parafilm 膜内的 2.5% 蔗糖溶液。饲
将互作蛋白候选物在本氏烟草(N. benthamiana)叶片中共表达 48 h。收集叶片,在液氮中匀浆,并重悬于 IP 裂解缓冲液(50 mM Tris-HCl、150 mM NaCl、20% 甘油、0.5% NP-40、1×蛋白酶抑制剂混合物)中。混合物以 14,000g 离心 10 min。上清液与 GFP 磁珠在 4 °C 孵育 2 h,随后用 IP 裂解缓冲液洗涤 5 次。磁珠在 95 °C 于 50 μl 4× SDS 上样缓冲液中煮沸 10 min,并通过免疫印迹分析。从独立裂解液中重复取样测量,以确认可重复性。
对于免疫印迹,蛋白经 4–20% SDS–PAGE 分离并转移至聚偏二氟乙烯(PVDF)膜上。用 5%(w/v)脱脂奶粉封闭后,将膜与以下一抗孵育:小鼠抗 DDK(Flag)单克隆抗体(ZSGB-BIO,TA-05,clone OTI11C3,lot no. 230021225;1:2,000)、小鼠抗 His 单克隆抗体(OriGene,TA150088,clone OTI2B5;1:5,000)、小鼠抗植物肌动蛋白单克隆抗体(ABclonal,AC009,clone AMC0496,lot no. 9100009001;1:5,000)、辣根过氧化物酶(HRP)偶联的兔抗 Myc 标签单克隆抗体(ABclonal,AE102,clone ARC5004-12-HRP,lot no. 3523030201;1:5,000)、兔抗 GFP 标签多克隆抗体(ABclonal,AE011,clone N/A,lot no. 3560104011,RRID: AB_2771922;1:2,000)、兔抗 β-肌动蛋白单克隆抗体(ABclonal,AC026,clone ARC5115-01;1:10,000)、兔抗组蛋白 H3 单克隆抗体(HUABIO,ET1701-64,clone JJ090-07,lot no. H641565025;1:5,000)、兔抗 PEPC 多克隆抗体(Agrisera,AS09 458,lot no. 2410;1:2,000),或由 ABclonal Technology 为本研究定制的兔抗 NVR1 多克隆抗体(1:500)。对于未偶联的一抗,随后根据情况将膜与 HRP 偶联的山羊抗小鼠 IgG(H+L)(ZSGB-BIO,ZB-2305,lot no. 219760308;1:10,000)或 HRP 偶联的山羊抗兔 IgG(H+L)(ZSGB-BIO,ZB-2301,lot no. 242521208;1:10,000)孵育。使用 ECL 试剂检测化学发光信号,并用 Tanon 5200T 成像系统成像。
免疫沉淀与质谱分析
使用 GFP 磁珠在 4 °C 免疫沉淀 YFP 标签蛋白 2 h。用 IP 裂解缓冲液洗涤磁珠 5 次后,将结合在磁珠上的蛋白在 95 °C 下用 10 mM TCEP 和 50 mM CAA(溶于 50 mM 碳酸氢铵)处理 10 min。
样品采用 Vivacon 500 过滤器(10,000 MWCO;Sartorius)通过滤器辅助样品制备法制备,依次用 8 M 尿素和 50 mM 碳酸氢铵洗涤,并用 1 μg 胰蛋白酶(Promega)过夜消化。使用 Pierce C18 Spin Tips(Thermo Fisher Scientific)脱盐后,肽段在 10 °C 下离心干燥,用 0.1% 甲酸复溶,并进行 LC–MS/MS 分析。
LC–MS/MS 分析使用与 nanoElute 液相色谱系统(Bruker Daltonics)偶联的 timsTOF Pro 2 质谱仪进行。简要而言,200 ng 肽段在反相分析柱(25 cm × 75 µm 内径,IonOpticks)上,以 300 nl min−1 的流速和 50 °C 的柱温,通过 60 min 梯度分离。流动相由缓冲液 A(0.1% 甲酸水溶液)和缓冲液 B(0.1% 甲酸乙腈溶液)组成。梯度洗脱程序设置如下:0 至 45 min 增至 22% 缓冲液 B,45 至 50 min 升至 37% 缓冲液 B,最后 50 至 60 min 为 80% 缓冲液 B。质谱仪以 DDA-PASEF 模式运行,参数如下:毛细管电压 1,500 V;干燥气流速 3.0 l min−1;干燥温度 180 °C。碰撞能量作为离子迁移率的函数线性递增。
文章标题:一种植物RNA结合蛋白感知由昆虫效应子产生的2′,3′-cNMP
正文: 原始LC–MS/MS数据在FragPipe v22.0中使用MSFragger,对从NbenBase(https://nbenthamiana.jp/downloads)下载的N. benthamiana蛋白序列数据库(Nbe_v1.1_pep.fa.gz)进行检索。胰蛋白酶被指定为消化酶,允许最多两个漏切位点。前体和碎片离子质量容差分别设置为10 ppm和0.02 Da。半胱氨酸的氨甲酰甲基化(+57.021 Da)设置为固定修饰,而甲硫氨酸氧化(+15.995 Da)作为可变修饰纳入。肽段和蛋白质鉴定采用靶标-诱饵策略,以1%的错误发现率进行过滤(补充表3、6和7)。
半体内pull-down实验
将His–TF和His–TF–NIB1与15 μl Ni-NTA树脂在4 °C下孵育1 h。将表达EDS1–Flag的叶片蛋白提取物加入各树脂中,在4 °C下孵育过夜。树脂用IP裂解缓冲液洗涤6次,重悬于50 μl 4× SDS上样缓冲液中,在95 °C下加热10 min。结合蛋白通过免疫印迹进行分析。
双分子荧光互补
将目标编码序列克隆到pCAMBIA1300S-cYFP或pCAMBIA1300S-nYFP中。融合蛋白在N. benthamiana叶片中共表达2天后,通过Leica TCS SP8 STED 3X以20×水浸物镜采集YFP信号。
微量热泳动实验
MST用于测定蛋白质–蛋白质相互作用以及NIB1及其突变版本与指定小分子或RNA的结合亲和力,蛋白标记严格按照制造商的方案进行。简言之,将浓度为10 μM的纯化重组蛋白(NIB1–GST、NIB1(R49A)–GST、NIB1(G50A)–GST和NIB1(4A)–GST)使用Monolith Protein Labeling Kit RED-NHS 2nd Generation(NanoTemper Technologies)用NT–647–NHS进行标记。将标记的NIB1–GST及其突变体在PBST缓冲液(PBS,含0.05% Tween-20)中调整至50 nM,并分别加入2′,3′-cAMP/cGMP和ApG>p(5 μM至0.000153 μM)。为表征NVR1与NIB1(NIB1RRM和NIB1GRR)之间的相互作用,将10 μM NVR1–TF标记并在PBST缓冲液中调整至40 nM。随后分别加入NIB1–GST、NIB1RRM–GST和NIB1GRR–GST(2.5 μM至0.0000763 μM)。对于蛋白质–RNA相互作用,以Cy5标记的FLS2 3′-UTR作为靶标并调整至20 nM。将NIB1–GST及突变体融合蛋白(10 μM至0.000306 μM)与靶标孵育。为检测NIB1(ΔIDR)与2′,3′-cAMP/cGMP和ApG>P之间的相互作用,以标记的NIB1(ΔIDR)作为靶标并调整至50 nM。将靶标蛋白分别与2′,3′-cAMP/cGMP和ApG>P(10 μM至0.000306 μM)混合。此外,为测试NIB1–GST与3′,5′-cAMP、3′,5′-cGMP、8-Br-3′,5′-cAMP、AMP、GMP及无关环二核苷酸2′,3′-cGAMP的结合亲和力,以50 nM标记的NIB1–GST作为靶标,分别与指定化合物(15 μM至0.000458 μM)混合。使用Microscale Thermophoresis Monolith NT.115仪器(NanoTemper Technologies)在25 °C、40% MST功率和20% LED功率下测量结合反应。从独立的蛋白制备中重复进行测量以确认可重复性。使用MO.AffinityAnalysis_x86_2.3.0.7385拟合曲线,并确定解离常数(Kd)值。
体外和体内相分离实验
NIB1–YFP融合蛋白及其各种突变体通过Ni-NTA树脂纯化。在10% PEG 8000存在下或特别说明的条件下,使用Leica TSC SP8 STED 3× 100×油镜观察NIB1–YFP液滴。在FRAP中,液滴被100%强度的488 nm激光漂白,每3 s 290 ms记录一次恢复,共50帧。通过延时摄影记录NIB1液滴的融合。使用Fiji (ImageJ, version 1.54f)从显微图像测量液滴直径。
与荧光蛋白(YFP或mCherry)融合的目标蛋白在N. benthamiana叶片中共表达。叶片中的凝聚体用Leica TSC SP8 STED 3X (Leica) 40×油镜观察。为防止成像过程中的荧光串色,所有图像均使用Leica TCS SP8共聚焦显微镜的顺序扫描模式采集。YFP用488 nm激光激发并在498–540 nm检测,mCherry独立地用561 nm激光激发并在600–630 nm检测。凝聚体图像使用Fiji (ImageJ, version 1.54f)分析。进行线轮廓分析以评估蛋白的共定位。为量化EDS1–mCherry在有无NVR1时进入NIB1–YFP凝聚体的分配系数,分析了相同大小的感兴趣区域。分配系数(Kp)定义为凝聚体内EDS1荧光强度与凝聚体外背景荧光强度的比值。
RNase活性测定
用作NVR1消化底物的Cy5标记的AttRNAser(83 nt)通过使用T7 RiboMAX Express RNAi System进行体外转录获得。含有0.5 mM Cy5-UTP和1 mM合成的AttRNAser DNA模板(序列列于补充表13)的反应混合物在37 °C孵育30 min。然后用0.5 μl RNase-Free DNase(Promega)在37 °C处理30 min以去除模板DNA。在RNase活性测定中,2 μM Cy5-AttRNAser与0.02 μM NVR1在含有20 mM Tris-HCl, pH 7.5, 5 mM NaCl, 5 mM MgCl2, 1 mM ATP, 0.5 μl RNase Inhibitor的缓冲液中于25 °C孵育20 min。通过400 μl终止液(40 mM Tris-HCl pH 7.5和500 mM NaCl)终止反应。然后用PCIA溶液(苯酚:氯仿:异戊醇,25:24:1)纯化RNA,RNA沉淀重悬于1× TBE尿素上样缓冲液中。随后使用16%尿素聚丙烯酰胺凝胶在150 V下分离RNA 90 min,然后用Amersham Typhoon 5检测。
Cy5标记的FLS2 3′-UTR的体外转录
Cy5标记的FLS2 3′-UTR使用HyperScribe T7 High Yield Cy5 RNA Labeling Kit (APExBIO)按照制造商的操作方案进行体外合成。简言之,如先前所述44,FLS2的3′-UTR序列使用含有T7启动子序列的正向引物(TAATACGACTCACTATAGGGGAAGTTTAGCAGCAAAGC)和反向引物(GTTCATCAAAACCAAATTTC)扩增。将1微克含有T7启动子的DNA模板组合在20 μl反应体积中。反应混合物由2 μl 10× Reaction Buffer、2 μl T7 RNA Polymerase Mix、各2 mM的ATP、GTP和CTP、1.5 mM UTP和0.5 mM Cy5-UTP组成。反应充分混合后在37 °C孵育2 h。转录后,通过加入1 μl DNase I并在37 °C孵育15 min来消化DNA模板。合成的Cy5标记RNA随后
文章标题:一种植物 RNA 结合蛋白感知由昆虫效应子产生的 2′,3′-cNMP
正文: 细胞质和细胞核组分按照 Minute Cytoplasmic and Nuclear Extraction Kit for Cells 的厂商说明书提取。简言之,将叶片(0.1 g,共表达 NIB1–YFP 和 EDS1–mCherry,含或不含 NVR1,处理 48 h)在细胞质提取缓冲液中匀浆。离心(14,000g,5 min,4 °C)后,收集细胞质上清。沉淀在细胞核提取缓冲液中通过反复涡旋和冰上孵育的循环进行裂解,然后通过预冷的过滤柱(14,000g,30 s)离心以收集细胞核提取物。组蛋白 H3 和磷酸烯醇式丙酮酸羧化酶(PEPC)分别作为细胞核和细胞质标志物,用于确认分离成功。
DAB 染色
将叶片在 DAB 溶液(1 mg ml−1 DAB、0.05% Tween-20、10 mM Na2HPO4,pH 5.8)中于黑暗条件下孵育 4–5 h。加入脱色缓冲液(乙醇:乙酸:甘油,3:1:1)以置换 DAB 染色,并将样品加热至 90–95 °C,重复 3–5 次直至叶绿素完全去除。将样品浸入 50% 甘油中用于成像。
蛋白质系统发育分析
利用 PF00445 HMM 搜索或 NCBI blastp,从植物(Gossypium hirsutum、Nicotiana tobacum、O. sativa)、真菌(Fusarium graminearum、M. oryzae)、昆虫(N. viridula、A. lucorum、Nilaparvata lugens、Aphis gossypii、C. medinalis、H. armigera)和哺乳动物(Homo sapiens 和 Rattus norvegicus)的基因组中筛选 RNaseT2 蛋白。在仅含一个 PF00076 结构域的条件下,筛选了 14 个科 18 个植物物种(Physcomitrella patens、Adiantum capillus、Cycas revoluta、Picea abies、Nymphaea colorata、O. sativa、Zea mays、Sorghum bicolor、Brachypodium distachyon、G. hirsutum、Arabidopsis thaliana、Vitis vinifera、Carica papaya、Cucumis sativus、Glycine max、Solanum lycopersicum、Solanum tuberosum 和 Populus trichocarpa)基因组中编码的 GRPs(GRPIVa)。基因组获自 Phytozome(https://phytozome-next.jgi.doe.gov/)或 NCBI(https://www.ncbi.nlm.nih.gov/datasets/genome/),昆虫蛋白质组获自 NCBI Protein 数据库(https://www.ncbi.nlm.nih.gov/protein/)。这两类中所有筛选出的蛋白质均使用 MUSCLE 5.1 进行比对,并使用 trimAl 1.2 进行修剪。系统发育树使用 IQ-TREE 2.2.0 构建,并使用 Evolview v3 进行注释。氨基酸残基保守性示意图使用 Jalview 2.11.2.5 展示。
RNA-seq 分析
从约 4 周龄野生型 O. sativa ZH11 和指定转基因株系的叶片中提取总 RNA。将 4 周龄烟草(N. benthamiana)叶片用 50 μM 8-Br-2′,3′-cAMP 浸润 6 h,随后提取 RNA。RNA-seq 由 Personalbio 完成。使用 HISAT2 将 clean reads 比对到 O. sativa 参考基因组(GCF_001433935.1_IRGSP-1.0_genomic.fna;https://www.ncbi.nlm.nih.gov/datasets/genome/GCF_001433935.1/)或 N. benthamiana 参考基因组(Niben.genome.v1.0.1;https://solgenomics.net/ftp/genomes/Nicotiana_benthamiana/assemblies/)。随后使用 DESeq 进行差异基因表达分析,基于 |log2(fold change)| > 1 和 P < 0.05 的阈值鉴定差异表达基因。GO 富集和火山图使用 RStudio 2023.09.1 中的 R v4.3.2 生成。差异表达基因及相应的 GO 富集结果见补充表 2、4、5、8–12。
昆虫取食实验
三龄 C. medinalis 幼虫被放置在指定品系 12 日龄水稻幼苗的叶片上。取食三天后记录幼虫体重。产卵选择实验在尼龙网笼(90 × 70 × 90 cm)中进行。每个基因型的三株一月龄、长势一致的水稻植株组成一组,并按三角形排列,以避免位置偏差。15 对新羽化成虫配对交配 48 h。随后移除雄虫,将 15 头已交配雌虫释放到网笼中央,并提供 15% 蜂蜜水。在 26 °C(12 h:12 h 光:暗光周期)下产卵 24 h 后,统计每个基因型三株植株上的产卵总数。实验用三个独立网笼重复。产卵偏好用产卵指数量化:OI = (T − C)/(T + C),其中 T 和 C 分别为突变体和野生型上的卵数。使用单样本 Student’s t 检验检测产卵指数对 0 的偏离。
对于幼虫取食偏好,将来自 3 个植物品系的叶片片段(3 cm)在培养皿内等距排成一圈。将 10 头三龄幼虫(预先饥饿 2 h)放入中央。在黑暗中选择 1 h 后,记录停留在每种植物上的幼虫数。选择率计算为 Ntarget/Ntotal selection × 100%,其中 Ntarget 和 Ntotal selection 分别代表特定植物上的幼虫数和做出明确选择的幼虫总数。
对于田间试验,将野生型 ZH11 种子播于土壤中,并将 35 日龄植株移栽到六个 1 m × 1 m 的田间小区。每个小区周围种植两行水稻作为缓冲行,所有六个小区均保持在网罩内。移栽四周后,小区按交替模式排列,并喷施水或 50 μM 8-Br-2′,3′-cAMP。处理后,在网罩中央释放 20 头已交配的雌性 C. medinalis 成虫。一旦卷叶虫苞可见,即统计虫苞数。在实验室实验中,昆虫和植株位置随机化;田间处理采用交替设计;结果评估对基因型或处理设盲。
茉莉酸和水杨酸的测定
将 4 周龄水稻植株的叶片组织用液氮研磨成粉末,并重悬于 500 μl 乙酸乙酯中。涡旋 1 min 并在 4°C 下以 14,000g 离心 10 min 后,转移上清液,在真空浓缩器中干燥,并重悬于 30 μl 30%(v/v)甲醇中。样品以 14,000g 离心 15 min,上清液用于在 QTRAP 6500+ 质谱仪(AB SCIEX)上进行 LC–MS/MS 分析。水杨酸样品用 30%(v/v)甲醇稀释至 1/100。
ROS 测定
从 2 周龄水稻幼苗上切取 2 mm 的叶鞘片段,并在无菌蒸馏水中预孵育过夜。随后,样品用水或在含 20 μM 鲁米诺和 10 μg ml−1 HRP 的缓冲液中的纯化重组 His–NVR1 蛋白处理。使用 Varioskan Flash 多功能读板仪(Thermo Fisher Scientific)以 1 min 间隔记录发光,持续 100 min。
NVR1 产物的 Q Exactive 四极杆分析
一种植物RNA结合蛋白感知由昆虫效应子产生的2′,3′-cNMP
NVR1(1 μM)与rRNA底物(2 μg)在20 μl反应体系中于25 °C孵育25 min。加入甲醇终止反应,混合物在4 °C下以12,000g离心10 min。收集上清液,使用与Dionex Ultimate 3000 RSLC (HPG)超高效液相色谱系统联用的Q Exactive四极杆-Orbitrap高分辨质谱仪,通过液相色谱-高分辨质谱(LC–HRMS)进行分析。进样体积为1 μl。样品在粒径1.8 μm的ACQUITY UPLC HSS T3色谱柱上分离。流动相为水(A)和甲醇(B),两者均含甲酸铵(2 mM)。梯度洗脱设置如下:0–6.5 min,2%甲醇;6.5–8.5 min,20%甲醇;8.5–11 min,98%甲醇;11.1–15.0 min,2%甲醇。流速始终设为0.40 ml min−1,柱温精确保持在40 °C。采用加热电喷雾电离源在正离子模式下检测。LC–HRMS数据使用Thermo Scientific Xcalibur 4.1.50进行分析。
从叶片中提取和检测2′,3′-cAMP/cGMP
2′,3′-cAMP/cGMP的提取按所述3进行。叶片组织用液氮研磨成粉末。样品重悬于600 μl含1 mM IBMX的4%乙酸中,涡旋2 min。上清液用800 μl氯仿萃取两次。样品通过真空旋转干燥,并重悬于50 μl无菌水中。
溶解后的样品在QTRAP 6500+质谱仪(AB SCIEX)上通过LC–MS/MS分析,该质谱仪与Agilent 1290 LC系统联用。色谱分离使用Waters XSelect HSS T3色谱柱,粒径2.5 μm,尺寸100 mm × 3.0 mm。进样量为1 μl。流动相由水(A)和甲醇(B)组成,两者均含2 mM甲酸铵。梯度洗脱方法如下:0–2.5 min,2% B;2.5–3.0 min,2–70% B;3.0–5.0 min,70–99% B;5.0–7.0 min,99% B;7.1–10 min,2% B。流速设为0.4 ml min−1,柱温保持在40 °C。代谢物采用电喷雾电离在负离子模式下通过多反应监测进行检测。质谱仪参数如下:毛细管电压−4,500 V,离子源温度500 °C,离子源气1(GS1)和气2(GS2)均为50 psi,帘气35 psi。数据采集和分析使用Analyst 1.6.3软件(AB SCIEX)进行。
ApG>p的化学合成
步骤 1. 在 0 °C、惰性气氛下,向 2′,3′-O-异丙叉基鸟苷 (1.0 eq) 的无水四氢呋喃 (THF) 搅拌溶液中加入三甲基氯硅烷 (TMSCl) (1.0 eq),随后滴加吡啶 (2.5 eq)。反应混合物在室温下搅拌 2 h。接着在 0–5 °C 下滴加异丁酰氯 (1.0 eq),混合物再在室温下搅拌 1 h。淬灭并萃取后,得到粗品,经 C18 快速色谱纯化。最终产物通过 LC–MS 和 1H NMR 波谱表征以确认结构。步骤 2. 在 0 °C 下,向步骤 1 产物 (1.0 eq) 和起始化合物 2 (1.0 eq,CAS: 104992-55-4) 的二氯甲烷 (DCM) 搅拌溶液中加入 5-(苄硫基)-1H-四唑 (5-BTT) (1.0 eq)。反应混合物在室温下搅拌 3 h。反应液用水和食盐水洗涤,DCM 溶液真空浓缩,粗品经 C18 快速纯化。经 LC–MS、1H NMR 和 31P NMR 确认。步骤 3. 在室温下,向碘 (1.0 eq) 的 THF:水:吡啶混合液 (10:5:1, v/v/v) 搅拌溶液中加入步骤 2 产物。反应混合物在室温下搅拌 1 h,随后加入 10% 亚硫酸钠溶液直至颜色消失。然后将反应混合物真空浓缩,残渣用乙酸乙酯萃取。有机层用无水 Na2SO4 干燥,过滤,真空浓缩。粗品不经进一步纯化直接用于下一步。经 LC–MS 和 31P NMR 确认。步骤 4. 在室温下,向步骤 3 产物 (1.0 eq) 的 DCM 搅拌溶液中加入三氟乙酸。反应混合物在 45 °C 下搅拌 4 h。完成后,溶液真空浓缩。由于产物水溶性高,残渣直接经 C18 快速色谱纯化。经 LC–MS、1H NMR 和 31P NMR 确认。步骤 5. 在氮气保护下,向步骤 4 产物 (1.0 eq) 的乙腈搅拌溶液中依次加入 N-甲基吗啉 (1.0 eq)、2-甲氧基-1-乙磺酰氯 (2.0 eq)、三偏磷酸三(四丁基铵)盐 (1.0 eq)、1H-4(5)-硝基咪唑 (0.1 eq) 和 DBU (3.0 eq)。反应混合物在室温下搅拌直至完成。随后加入 MgCl2 (2.0 eq),混合物在室温下搅拌。完成后,溶剂真空浓缩,向残渣中加水将 pH 调至 3–4。混合物用乙酸乙酯萃取,洗涤、干燥并浓缩,得到粗品,再经制备型 HPLC 纯化和冻干。经 LC–MS、1H NMR 和 31P NMR 确认。步骤 6. 在室温下,向步骤 5 产物 (1.0 e) 的 THF 搅拌溶液中加入 HF (6.0 eq)。反应混合物在 50 °C 下搅拌直至完成。随后向残渣中加入三乙胺将 pH 调至 6–7,混合物减压浓缩,得到粗品。粗品经制备型 HPLC 纯化和冻干。经 LC–MS、1H NMR 和 31P NMR 确认。步骤 7. 在 0 °C 下,向步骤 6 产物 (1.0 eq) 的甲醇 (10 倍体积) 搅拌溶液中加入 NH3/甲醇 (10.0 eq)。反应混合物在 0 °C 下搅拌 6 h 直至完成。然后将甲醇溶液真空浓缩,残渣经制备型 HPLC 纯化,随后冻干。经 LC–MS、1H NMR 和 31P NMR 确认。
NIB1 捕获 NVR1 催化小分子的体外实验
NIB1–GST 与 10 μl 谷胱甘肽琼脂糖树脂在 4 °C 下孵育 2 小时。将空载体(编码 TF 标签)或 NVR1 产物加入树脂中,于 4 °C 过夜孵育。随后用 100 μl 80% 乙腈和 5% 甲酸处理树脂,并在 25 °C 下孵育 30 分钟,然后进行液相色谱分析。
用 8-Br-2′,3′-cAMP/cGMP 和 ApG>p 处理植物
将 12 天龄的水稻幼苗用 50 μM 8-Br-2′,3′-cAMP、8-Br-2′,3′-cGMP 或 ApG>p 喷雾处理 6 小时,并用水和 8-Br-AMP 作为对照。处理后提取 RNA,并通过 RT–qPCR 分析防御基因的表达水平。用 50 μM 8-Br-2′,3′-cAMP 浸润 4 周龄本氏烟草(N. benthamiana)植株叶片 6 小时,并通过 RT–qPCR 分析基因表达。
分子对接
使用 AlphaFold2 预测 NVR1–NIB1 复合物的结构。2′,3′-cAMP 和 2′,3′-cGMP 的 3D 结构从 PubChem(https://pubchem.ncbi.nlm.nih.gov/)获取,ApG>p 则使用 ChemBioDraw Ultra 14.0 建模。配体在 Gaussian 16 中使用密度泛函理论(DFT)优化,并使用 AutoDockTools 1.5.7 准备与 NIB1 对接。分子对接使用 AutoDock 4.2.6 进行,针对各配体设置网格盒,间距为 0.375 Å。2′,3′-cAMP 的网格尺寸调整为 46 × 50 × 50,2′,3′-cGMP 为 50 × 56 × 56,ApG>p 为 100 × 100 × 100。应用 Lamarckian 遗传算法,运行 50 次,种群大小为 150,能量评估次数为 2.5 × 10^6。使用 PyMOL 2.5.5 和 LigPlot+ 2.2.8 分析最低能量构象。
统计分析
使用 GraphPad Prism 9(GraphPad Software)进行统计分析。两组间比较使用非配对双尾 Student t 检验。多组间比较根据情况使用单因素方差分析(ANOVA)后接 Dunnett 或 Tukey 多重比较检验。如图例中所示,使用双因素方差分析(ANOVA)后接 Tukey 事后检验或 Benjamini、Krieger 和 Yekutieli 的两阶段线性逐步提升程序。统计显著性设定为 P < 0.05,使用 Benjamini–Krieger–Yekutieli 程序的分析错误发现率为 5%。对于小提琴图,宽度表示数据密度,线条显示中位数和四分位数,点代表单个值。统计检验的详细信息见相应的图例。
报告摘要
有关研究设计的更多信息,请参阅与本文链接的 Nature Portfolio 报告摘要。