 Newshot
主体
阿尔茨海默病(AD)是一种与年龄相关的神经退行性疾病,影响全球数百万人,在 65 岁以上人群中患病率约为 10–30%3。尽管其核心特征是认知障碍,AD 表现为一种系统性疾病,涉及睡眠、昼夜节律、代谢稳态、应激反应和神经内分泌功能的严重紊乱1。经典神经病理学标志是细胞外 amyloid-β 斑块和细胞内神经原纤维缠结(NFTs),这些标志连同广泛的神经炎症和脑体积变化,也会随衰老而加剧1,4。由于认知衰退传统上指导诊断和研究,研究主要集中在海马和皮层5。由于 AD 对其他脑区的影响仍知之甚少,研究这些被忽视的区域对于阐明疾病机制的全貌和开发新疗法至关重要6。
下丘脑是一个小而复杂的脑区,协调广泛的生理和神经内分泌过程,而这些过程在衰老和 AD 中经常失调2,7。新出现的证据表明,下丘脑功能障碍不仅与 AD 病理和认知衰退相关,而且会主动加重它们1。具体而言,下丘脑亚区内的病理,例如视交叉上核(SCN)8、弓状核(ARC)1,9 和乳头体10,与 AD 患者中观察到的显著睡眠障碍、代谢功能障碍和记忆缺陷相关。反过来,这些系统性紊乱被认为会形成恶性循环,进一步加速疾病进展和认知衰退1。
尽管下丘脑在稳态和脑衰老中发挥核心作用2,11,但在人类衰老和 AD 背景下,它仍是一个研究不足的区域。特别是,我们对这些过程中人下丘脑内的体积、细胞和分子变化了解有限。尽管动物模型研究已强调下丘脑参与衰老和神经退行性变2,11,12,但人类研究仍然稀少。这部分可能是因为下丘脑在进化上比皮层更保守,并且对生存至关重要,因此它可能对衰老和常见疾病表现出较不明显的易感性13。这种匮乏在将高分辨率成像与单细胞分析相结合的研究中尤为明显,而这些互补方法是剖析这一复杂脑区解剖和细胞异质性所必需的。这一知识空白阻碍我们确定特定下丘脑亚区和细胞群如何促成衰老和 AD,以及它们为何表现出差异性易感性。
在此,我们提出 HypoAD,这是一个结合两种强大的跨尺度方法的多模态图谱。首先,我们对来自 458 名覆盖成年生命周期、具有不同认知和 amyloid-β 病理状态的个体的临床影像数据进行了高分辨率体积分析。其次,我们生成了一个互补的单细胞转录组图谱,包含来自 17 名死后供者下丘脑的 614,403 个细胞核,这些供者包括有或无 AD 临床和神经病理诊断的年轻和年长个体,其中采样特别富集了 SCN、ARC 和乳头体。这种双模态方法揭示了衰老和 AD 中人下丘脑的亚区特异性和细胞类型特异性改变。
随年龄、性别和 AD 发生的体积变化
神经影像学研究已报道与衰老和认知衰退14相关的下丘脑体积变化。既往分析分辨率较低或仅限于主要区域,掩盖了与疾病相关的亚区,如 ARC 和 SCN14。为克服这一局限,我们利用新开发的人类下丘脑体积图谱15来描绘并测量 13 个下丘脑结构和 12 个下丘脑外结构(补充表
a,亚区体积与 MRI 时年龄的 Pearson 相关热图。蓝色和红色分别表示正相关和负相关。方框标出五个聚类(基于 1 − r 的完全连接)。分析了所有亚区。Benjamini–Hochberg 校正涵盖唯一成对相关(校正 P < 0.05,校正 P < 0.01,校正 P < 0.001)。b,汇总(黑色,n = 458)、CBA(橙色,n = 256)和 AMBR(蓝色,n = 202)分析中的年龄–体积 Pearson r。n 表示独立参与者。实心圆表示每次分析 26 个相关中经 Benjamini–Hochberg 校正的 P < 0.05。空心圆表示不显著。a、b 中为双侧 Pearson 检验。c,来自对数体积的高斯恒等连接模型的年龄(左)和女性性别(右,男性为参照)效应,校正年龄、性别、认知和 amyloid-β 状态、其交互作用、ICV 和研究(n = 316 名具有完整协变量数据的独立参与者,197 名女性,119 名男性,CBA 209,AMBR 107)。点表示系数。条表示未校正的 95% 置信区间(估计值 ±1.96 × s.e.)。年龄效应按每 11.61 年计(全队列 s.d.)。双侧 t 检验使用 308 个残差自由度,每个模型对八个系数(包括截距)进行 Benjamini–Hochberg 校正。颜色表示校正 P。补充表 4 提供估计值、区间、t 统计量以及原始和校正 P。d,三名代表性女性的三维 MRI 重建。e,原始亚区体积的 PCA,在 PC1 和 PC2 上按年龄、性别、amyloid-β 和认知状态着色。每个点代表一名参与者。f,所选亚区和总下丘脑的女性年龄–体积散点图(mm3,n = 277 名独立参与者),按认知和/或 amyloid-β 状态着色。每个点代表一名参与者。黑色 LOESS 曲线估计条件均值。阴影表示逐点 95% 置信区间。AHA,前部下丘脑区;DPEH,背侧室周核;HYPO,下丘脑;LH,外侧下丘脑;MM,乳头体;MPO,内侧视前核;NS,不显著;Pa,室旁核;Pe,室周核;PH,后部下丘脑;s.d.,标准差;SO,视上核;TM,结节乳头体核;VM,腹内侧核。
在控制生理性别、颅内体积(ICV)、认知状态和 amyloid-β 病理的广义线性模型(GLM)中,外侧下丘脑体积随年龄下降(效应量/估计值 ± s.e. = −0.021 ± 0.0064,校正 P = 0.0019)。SCN(0.059 ± 0.018
衰老和阿尔茨海默病中的下丘脑体积与细胞类型变化
为了整体评估体积关系,我们对全部 25 个已界定的下丘脑及下丘脑外结构的体积数据进行了主成分分析(PCA)(Fig. 1e 和 Extended Data Fig. 3a–e)。前两个主成分(PCs)主要与年龄、性别和全局缩放因子(颅内体积和全脑体积)相关,个体沿这些成分分离(Fig. 1e 和 Extended Data Fig. 3a)。淀粉样蛋白-β 和认知状态与这些成分的关联较弱,并且在对年龄、性别和全局缩放因子进行残差化后,二者均不再与领先 PCs 显著相关(Fig. 1e 和 Extended Data Fig. 3a–e)。这表明疾病状态并不定义宏观结构变异的独立主导轴,而更敏感的疾病相关信号可能反而在分子水平被捕获。
通过按认知状态和淀粉样蛋白-β 状态分层的散点图检查体积轨迹,揭示了也因性别而异的亚区特异性模式(Fig. 1f 和 Extended Data Fig. 3f)。值得注意的是,AD 个体(定义为认知下降和淀粉样蛋白-β 阳性)与年龄匹配的非 AD 对照相比,总下丘脑和外侧下丘脑体积减小,这与这些区域随年龄整体下降的趋势一致(Extended Data Fig. 3g)。相比之下,AD 个体的 ARC、SCN、室旁核、室周核和 DMH 体积相对于年龄匹配的非 AD 个体增加(Extended Data Fig. 3g)。这一模式未达到统计学显著性,可能反映了体积测量对相对早期疾病阶段不敏感以及样本量有限(Extended Data Fig. 3g)。亚区体积对认知状态、淀粉样蛋白-β 状态和 AD 的分类优于总下丘脑体积(Extended Data Fig. 3h,i),提示亚区特异性体积变化捕获了将下丘脑视为单一结构时被掩盖的疾病相关变异。
因此,衰老与亚区特异性体积变化相关,这些变化在控制淀粉样蛋白-β 和认知后仍然存在,而与 AD 相关的变化未达到显著性,这促使采用互补的、更高分辨率的分子模态。
AD 下丘脑的单细胞分析
体积数据提供了解剖学背景,但无法揭示细胞类型特异性的分子变化。因此,我们对来自 14 个个体的死后半下丘脑组织进行了单核 RNA 测序(snRNA-seq)(Fig. 2a,b 和 Extended Data Fig. 4a):其中 7 个主要为早期 AD(n = 6 散发性,n = 1 家族性),以及 7 个年龄匹配、认知和神经病理学正常的对照参与者。家族性 AD 样本(AD_44,Fig. 2b 中的 ID 7A;APOE4/4)被排除在所有差异分析之外,并作为晚期病理的极端示例保留。
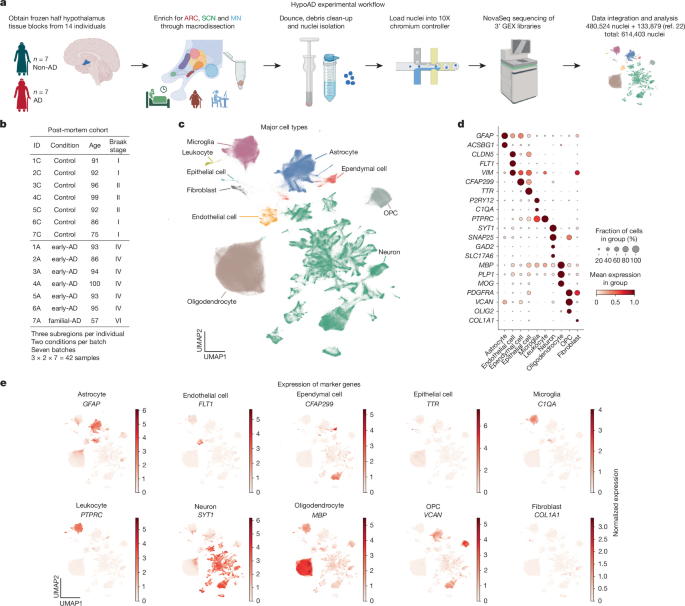
a,snRNA-seq 工作流程示意图。将来自 14 名个体(7 名非 AD 对照参与者和 7 名 AD 患者(6 名年龄匹配的散发性患者和 1 名较年轻的家族性患者))的冷冻死后下丘脑组织进行宏切割,以富集 ARC、SCN 和乳头体核(MN)亚区。分离细胞核,并在 NovaSeq 平台上制备文库和测序。将所得数据与来自三名年轻健康对照参与者的 133,879 个公开可用细胞核整合,最终得到包含年轻对照、年长对照(非 AD)和 AD 组共 614,403 个细胞核的数据集,用于比较分析。b,snRNA-seq 研究中纳入的 14 名个体概况,详列样本 ID、临床状况(非 AD 对照、早期 AD 或家族性 AD)、死亡年龄和 Braak 分期。每名个体贡献三个下丘脑亚区(ARC、SCN 和 MN)的组织,共计 42 份组织样本,分七个实验批次处理。c,整合后 614,403 个细胞核的 UMAP 图。不同聚类代表已鉴定的主要细胞类型,包括神经元、星形胶质细胞、少突胶质细胞、小胶质细胞、内皮细胞、室管膜细胞、成纤维细胞、上皮细胞、OPC 和白细胞。每种细胞类型均被注释并以独特颜色突出显示。d,所选标记基因的点图。点的大小对应给定细胞类型中表达该标记的细胞比例;颜色强度表示平均归一化表达水平。e,关键经典标记基因的归一化表达映射到 c 的 UMAP 图上。代表性标记包括 GFAP(星形胶质细胞)、FLT1(内皮细胞)、CFAP299(室管膜细胞)、TTR(上皮细胞)、C1QA(小胶质细胞)、PTPRC/CD45(白细胞)、SYT1(神经元)、MBP(少突胶质细胞)、VCAN(OPC)和 COL1A1(成纤维细胞)。a 中的插图由 BioRender 创建;Yu, D. https://biorender.com/zt57wnj(2026)。
AD 供体主要为散发性、临床确认的伴病理认知下降(Braak IV 期;图 2b),该阶段是在神经元群体仍存在20时检测转录变化的最佳阶段。层次聚类按病理状态而非死亡时间或质量指标等混杂因素对样本分组(扩展数据图 4a)。
为了注释,我们使用单细胞变分推断算法23,将我们的数据集与来自三名较年轻个体(年龄分别为 29、42 和 50 岁)的 133,879 个先前发表的高质量人类下丘脑细胞核21,22 整合。主要细胞类型通过经典标记基因的表达来鉴定(图 2c–e,质控见扩展数据图 4b–g)。
HypoAD 中的机器学习特征
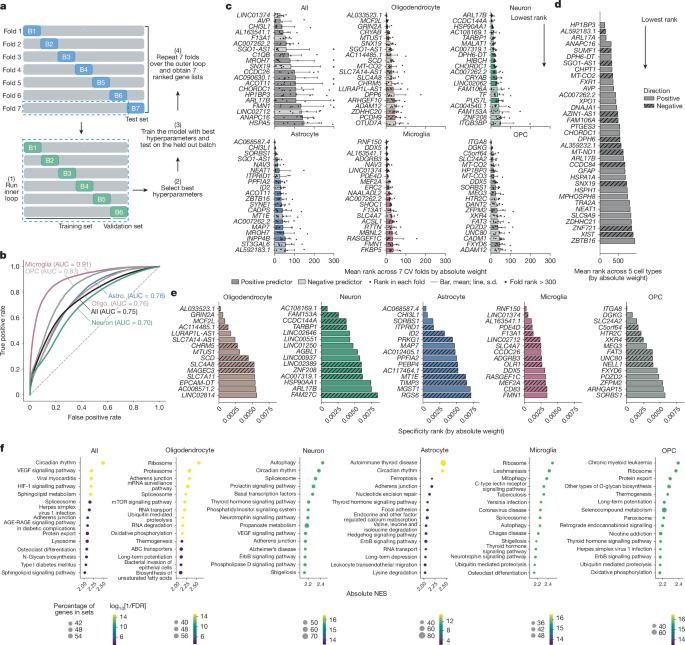
为了识别区分 AD 患者与对照个体下丘脑细胞的转录组特征,我们在来自 480,524 个细胞的 36,600 个基因上训练了 Elastic Net 模型。该数据集涵盖七个独立批次,每个批次包含一名 AD 供体和一名对照供体(图 3a)。这种平衡设计使得留一批次交叉验证能够进行,并为全细胞模型和主要细胞类型的细胞类型特异性模型均产生了较强的分类性能(图 3b)。
文章标题:衰老与阿尔茨海默病中下丘脑体积及细胞类型变化
a,嵌套式留一批次交叉验证。外层折留出一个批次用于测试。内层折使用剩余批次选择超参数。七个互不重叠的批次各包含两名不同供体(一名对照,一名AD):480,524个细胞 × 36,600个基因。b,使用全部细胞核(全细胞模型)和五种最丰富细胞类型各自的Elastic Net模型的受试者工作特征曲线。曲线下面积反映七个外层折的汇总性能。虚线表示随机水平(曲线下面积为0.5)。c,每个模型中AD预测基因前20名,按各外层折内模型权重绝对值排序。条形显示跨折平均排名,按重要性从高到低(排名最低)排列。误差条显示s.d.(仅显示上侧),点显示各折排名。七个全细胞排名大于300的以三角形显示在轴限处。全色和浅色条形分别表示正权重和负权重。每个模型n = 7个外层折,训练集有重叠。折是重采样单位,不是生物学重复。每个留出批次包含两名独立供体,共14名供体。模型使用了来自这14名供体的480,524个细胞核(全细胞)、227,283个少突胶质细胞、103,815个神经元、57,437个星形胶质细胞、52,390个小胶质细胞和22,004个OPCs。d,前35个共享特征。条形显示所有五个细胞类型特异性模型的平均排名,排名越低表示重要性越高。e,每种细胞类型的前15个特征,按目标细胞类型相对于其他细胞类型的基因排名选择。条形显示特异性评分。f,从按带符号模型权重排序的基因的GSEA中选择的显著富集KEGG通路,适用于全细胞和细胞类型特异性模型。x轴显示绝对归一化富集分数,点大小表示通路基因数,颜色表示显著性(−log10[FDR])。Astro.,星形胶质细胞;AUC,曲线下面积;NES,归一化富集分数;Oligo.,少突胶质细胞。
对七个外层交叉验证折的绝对基因权重取平均,得到每个分类器的前20个特征(图3c),其中许多先前已被认为与AD病理相关,为我们的模型预测提供了生物学支持。全细胞模型的首要特征包括精氨酸加压素(由AVP编码),这是一种在AD中升高的昼夜节律神经肽24。细胞类型特异性模型同样突出了AD相关基因:MCF2L(在AD中差异甲基化;少突胶质细胞)25、ARL17B(在AD皮层中升高的抑制性神经元表达定量性状位点;神经元)26、CHI3L1(星形胶质细胞分泌的神经炎症标志物,也是早期AD诊断的脑脊液(CSF)生物标志物;星形胶质细胞)27、RNF150(顺式表达定量性状位点,小胶质细胞)28和ITGA8(与脱髓鞘相关;少突胶质细胞前体细胞(OPC))29(图3c)。
按五种最丰富细胞类型的平均排名对基因排序,确定HP1BP3为最重要的共享特征(图3d),它是海马认知衰老的候选调节因子,受二甲双胍影响30,31,但在下丘脑中研究不足。逐基因特异性排名(图3e)揭示长非编码RNA(例如LINC02646、LINC00551、LINC01250、LINC00937和LINC02389)在顶级神经元特征中强烈富集(图3e),提供了已知和新AD相关基因的细胞类型特异性资源。对排序预测基因的基因集富集分析(GSEA)显示昼夜节律和炎症通路显著富集(图3f、扩展数据图5和补充表5),将我们的细胞水平分类器与神经退行性变的既定标志联系起来。
细胞类型特异性表达变化
文章标题:衰老与阿尔茨海默病中下丘脑体积及细胞类型变化
正文: 接下来,我们在 early-AD 与对照样本之间,按细胞类型和样本进行了 pseudobulk 差异表达分析(edgeR 似然比检验(LRT))(图4a 和补充表6)。值得注意的是,小胶质细胞显示出数量最多的差异表达基因(DEGs),凸显出即使在 early AD 阶段它们也具有显著的转录响应。
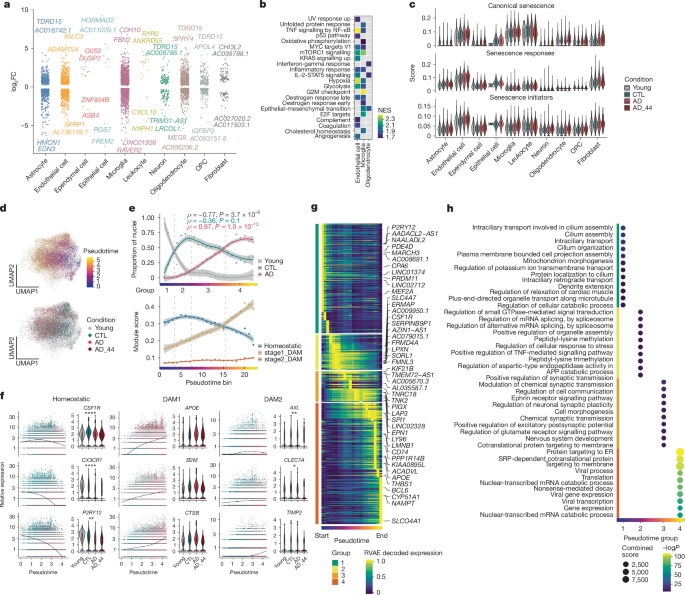
a,主要细胞类型的显著 DEGs。每位供者和每个亚区一个 pseudobulk。AD 与老年对照(CTL)样本:主要细胞类型,18 和 21(来自 6 和 7 位供者);室管膜细胞,13 和 15;上皮细胞,2 和 3(未检验)。DEGs(FDR < 0.05):edgeR LRTs(1 个自由度),Benjamini–Hochberg 校正(补充表6)。b,early-AD 非神经元 Hallmark 富集(fGSEA,Benjamini–Hochberg 校正 P < 0.1)。c,衰老评分:young(3 位供者)、CTL、AD、AD_44(1 位供者)。AD–CTL 样本均值:双侧 Wilcoxon 秩和检验,跨细胞类型 Benjamini–Hochberg 校正,不显著(补充表8)。计数同 a。小提琴图,每个细胞核的评分。箱体,中位数、四分位距(IQR)、1.5 × IQR 须线。d,小胶质细胞 UMAP(51,420 个细胞核):pseudotime(上),condition(下)。e,上,每个 pseudotime 分箱中 young、CTL 和 AD 的细胞核比例(22 个分箱,47,948 个细胞核)。Spearman ρ(95% CI),双侧未校正 P:young −0.77(−0.90 至 −0.51),3.7 × 10−5,CTL −0.36(−0.69 至 0.09),0.10,AD 0.97(0.93 至 0.99),1.0 × 10−13。组 1–4,示意性阶段。下,每个分箱的平均 UCell 评分(51,420 个细胞核),LOESS 线,95% CI 带。f,多项式 pseudotime 拟合(左),表达(右):young(3,213 个细胞核),CTL(24,648),AD(20,087),AD_44(3,472)。AD–CTL FDRs(a):CSF1R 3.1 × 10⁻⁷,CX3CR1 9.7 × 10⁻⁶,P2RY12 7.1 × 10⁻³,AXL 9.6 × 10⁻³,CLEC7A 1.7 × 10⁻²。FDR < 0.05,FDR < 0.01,FDR < 0.001,****FDR < 0.0001。小提琴图,每个细胞核的表达。箱体同 c。g,t-DEGs(13,104,Moran's I 检验,q < 0.01),显示为四个共表达时间进程簇。pseudotime 条(图下方)范围同 d(0–5)。h,每个簇的 Gene Ontology 术语(Enrichr,单侧 Fisher 精确检验,Benjamini–Hochberg 校正 P < 0.01)。大小,combined score。颜色,−log10 [P]。
为进行正交验证,我们利用了来自健康对照参与者和 AD 个体的人类 CSF 蛋白质组数据集。在显著差异丰度蛋白质中(补充表7),有五种对应于主要细胞类型中的显著 DEGs,其中三种在内皮细胞中,而内皮细胞是血脑屏障的主要组成部分(扩展数据图6a):次黄嘌呤-鸟嘌呤磷酸核糖转移酶(HPRT)升高,脑源性神经营养因子和神经肽 Y 降低。这些结果与血脑屏障功能障碍作为 early AD 特征一致32,脑源性神经营养因子和神经肽 Y 降低反映神经保护丧失33,34,HPRT 升高提示嘌呤补救应激反应35。小胶质细胞 PGK1 上调表明促炎性小胶质细胞特征性的糖酵解转变36,37。PTPRN 指向 OPC 状态改变38。对小胶质细胞 DEGs 的 GSEA 显示 G2M checkpoint、mTORC1 信号传导和胆固醇稳态富集。这些发现提示,在 early AD 中,小胶质细胞可能进入一种复杂的支持性状态。mTORC1 特征指向代谢重编程,胆固醇稳态特征与与 amyloid-β 吞噬相关的胆固醇外流增强一致,共同提示 early 支持性小胶质细胞反应(图4b)。
文章标题:Hypothalamic volume and cell-type changes in ageing and Alzheimer’s disease
正文: 由于细胞衰老参与衰老和神经退行性变39,我们在各细胞类型中对三个衰老特征——经典衰老、衰老反应和衰老启动因子(图4c)——以及三个重叠的NFT特征39(扩展数据图6b–d和补充表8)进行了评分。小胶质细胞、白细胞、成纤维细胞和内皮细胞显示出最高评分,并且在衰老(对照)和AD中均升高(图4c和扩展数据图6b–d),而神经元NFT在携带APOE4/4家族性AD的患者(AD_44)中最为明显(图4c和扩展数据图6b–d)。这些发现提示一种二分性:非神经元细胞的衰老可能促进AD中的微环境功能障碍,而神经元NFT则反映一种由tau驱动的独特病理,并随疾病进展或遗传易感性而加剧。这凸显了不同的、细胞类型特异性治疗靶点的潜力。为探究这些转录组变化是否可能与磁共振成像(MRI)观察到的亚区体积变化相关,我们检查了调控细胞大小和组织结构的通路。一个经整理的mTOR信号基因集(核心调控因子MTOR、RPTOR、RHEB、TSC1/2和DEPTOR;效应因子RPS6KB1、EIF4EBP1和SREBF1/2)在AD中显示出模块评分升高,最明显的是在非神经元细胞中(扩展数据图6e和补充表9)。由于mTORC1调控细胞生长和大小40,这提出细胞肥大是宏观结构水平上所观察到体积增加的一个推测性促成因素。相反,一个细胞外基质(ECM)基因集(胶原蛋白COL1A1和COL4A1;蛋白聚糖ACAN、BCAN和VCAN;糖蛋白SPARC和TNC)在AD中显示出模块评分降低(扩展数据图6f和补充表9)。这些变化提示细胞大小调控和细胞外重塑可能是与亚区体积变化潜在相关的候选分子过程。
Microglia trajectory in HypoAD
小胶质细胞是脑衰老和神经退行性变的核心11,41,42。我们对来自所有条件(年轻、老年对照参与者和AD)的小胶质细胞应用轨迹推断43,44,推断出一个连续的从衰老到AD的轨迹(图4d、扩展数据图7a和补充表10)。伪时间连续统一体被分为四个阶段:来自年轻参与者的小胶质细胞的衰老阶段(第1阶段)和老年对照参与者(第2阶段)、富集老年对照参与者的晚衰老阶段(第3阶段,代表这些细胞沿轨迹的较晚状态)以及AD(第4阶段)小胶质细胞(图4e和扩展数据图7a–e)。来自老年对照个体的一部分小胶质细胞出现在较早的轨迹点,而来自年轻个体的一些小胶质细胞持续到较晚阶段,提示某些小胶质细胞可能保留年轻特性,而另一些则表现出对早期病理变化的更高易感性。
我们使用UCell45沿伪时间对三个小胶质细胞特征进行了评分:(1) 稳态(CSF1R和CX3CR1);(2) 第1阶段疾病相关小胶质细胞(DAM1)(APOE和B2M),其通常由衰老和淀粉样斑块激活;以及(3) 第2阶段DAM(DAM2)(AXL和CLEC7A),其依赖于TREM2信号46,47。评分显示出从稳态向DAM1的转变,并伴有DAM2的适度上升(图4e,f),其中一些在CSF蛋白质组学数据中得到了验证(扩展数据图7f)。这种观察到的从稳态到DAM状态的转变强调了小胶质细胞功能变化在AD进展中的关键作用,并凸显了旨在维持稳态功能或阻止向有害DAM状态完全转变的治疗干预潜力。
Moran’s I 检验鉴定出 13,104 个与轨迹相关的 DEG(t-DEG)(Supplementary Table 11 和 Extended Data Fig. 7g),并用 RVAgene48 平滑和聚类(Fig. 4g)。对这些 t-DEG 的 Gene Ontology 生物学过程分析显示,衰老阶段从纤毛组装和线粒体形态发生转向应激反应,包括淀粉样前体蛋白分解代谢过程,而疾病阶段从细胞形态发生和突触调节转向病毒反应通路和蛋白质靶向内质网(Fig. 4h)。
为了检验在我们的队列和下丘脑之外的普适性,我们与背外侧前额叶皮层的 PsychAD 单核图谱49,50 进行了比较。AD 相关表达在非神经元细胞类型中方向一致,并在胶质细胞中最强,而内皮细胞显示出更多区域特异性变化,这与下丘脑独特的血管微环境一致(Extended Data Fig. 8a 和 Supplementary Table 12)。在两个独立的 PsychAD 队列中(衰老,208 名供者49;AD,585 名供者)50,DAM 特征随年龄和 AD 状态升高,重现了我们从稳态到 DAM 的进展(Extended Data Fig. 8b–g 和 Supplementary Table 13)。总之,这些跨队列、跨区域的比较表明,在 HypoAD 下丘脑中鉴定出的主要转录组特征在独立生成的数据集中可重现。
亚区间的神经元多样性
人类下丘脑中的神经元显示出广泛的细胞类型多样性13,21,22。我们分析了 213,469 个神经元细胞核,将其分为三个由神经递质定义的类别:抑制性和/或 γ-氨基丁酸能(GABAergic)(GAD2)、兴奋性和/或谷氨酸能(SLC17A6)以及组胺能神经元(HDC)(Fig. 5a–c)。层次 Leiden 聚类产生了五个聚类层级(5 至 254 个亚簇)。解剖来源根据整理好的亚区标志物21 推断(Extended Data Fig. 9a),对于表达多个标志物的亚簇,主要亚区列在首位(Extended Data Fig. 9a)。树状图将不同分辨率下的亚型关联起来,节点和叶节点用区分性标志物标记。254 个叶亚簇根据其在总神经元群体中的相对丰度、在年轻参与者、老年对照参与者和 AD 患者中的分布以及推断的亚区进行了注释(Fig. 5d)。
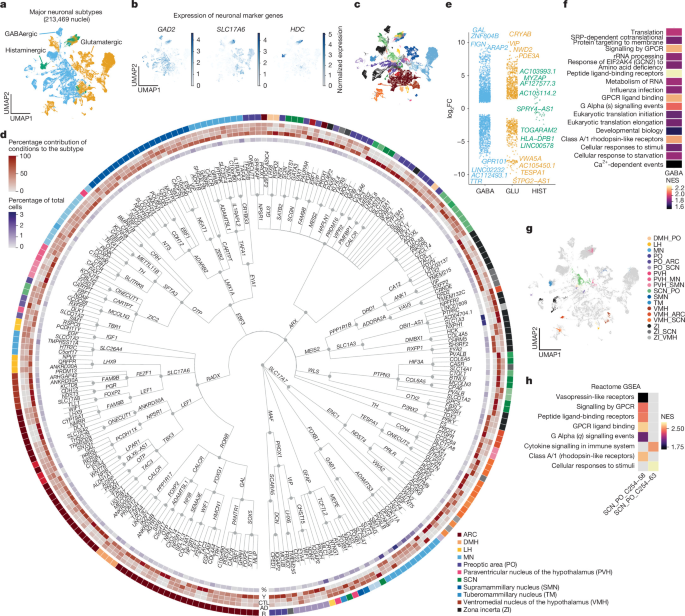
a,213,469个下丘脑神经元的UMAP,按主要神经递质类别进行颜色编码:GABA能(表达GAD2;蓝色)、谷氨酸能(表达SLC17A6;橙色)和组胺能(表达HDC;绿色)。b,叠加在UMAP上的特征图,展示GAD2(GABA能)、SLC17A6(谷氨酸能)和HDC(组胺能)在神经元群体中的标准化表达。c,神经元细胞核的UMAP,根据标记基因表达推断的亚区身份着色(颜色键见d),突出下丘脑内神经元簇的区域分布。d,环形树状图,展示254个已识别下丘脑神经元亚型之间的关系。对于每个亚型,树状图标注了其推断的亚区身份(基于标记基因)以及来自年轻参与者、老年对照参与者和AD患者的相对贡献。e,在转录改变最显著的30个神经元亚型中识别出的显著DEGs。DEGs按亚型属于GABA能、谷氨酸能或组胺能类别进行分组。f,热图显示AD改变的GABA能神经元中显著富集的Reactome通路。g,UMAP显示早期AD中转录变化最显著的30个神经元亚型。亚型按其推断的下丘脑亚区起源着色。h,热图显示AD改变的神经元亚型中显著富集的Reactome通路。突出显示的通路包括与加压素样受体、GPCR信号传导和免疫和/或细胞因子信号传导相关的通路。AD,AD患者;CTL,非AD个体;GABA,GABA能;GLU,谷氨酸能;HIST,组胺能;R,亚区注释;Y,来自参考文献22的年轻个体。
AD在神经元亚型中的特征
下丘脑包含具有专门稳态作用的不同神经元群体,但它们对AD的亚型特异性贡献仍知之甚少。为此,我们对254个神经元亚型进行了伪批量差异基因表达分析(edgeR LRT),按DEG数量优先选择前30个,并按神经递质类别分组(图5e)。值得注意的是,GABA能和/或抑制性神经元显示出最显著的变化,富集的Reactome通路涉及肽配体结合受体和G蛋白偶联受体(GPCR)信号传导(图5f),提示早期AD下丘脑中神经肽信号传导和突触功能可能存在失调,这可能促进AD发病机制特有的代谢紊乱。
通过推断的亚区身份在均匀流形近似和投影(UMAP)和空间位置中映射了前30个亚型(图5g,h、扩展数据图9b–d和补充表14),其他身份则通过来自九个人类供体的Visium空间转录组学进行了验证13,51(扩展数据图10)。该分析突出显示SCN内的神经元特别脆弱:一个显著的SCN簇(C254-58)显示出改变的GPCR和加压素相关受体通路。加压素由AVP编码(扩展数据图11a),是一种关键的神经肽,主要由SCN神经元以昼夜节律方式合成和分泌52,对维持昼夜节律稳态至关重要。这些发现表明早期AD破坏了SCN神经元功能,可能促成患者中常观察到的昼夜节律失调。
区域、模态和物种比较
我们在PsychAD队列中在神经元水平上验证了我们的发现,比较了皮层和下丘脑的谷氨酸能和GABA能谱系。谷氨酸能神经元中AD相关的变化在不同区域间比GABA能神经元更为一致(扩展数据图11b和补充表15),神经元的跨区域一致性弱于胶质细胞,这与神经元身份具有更大的区域特化相一致。
衰老和阿尔茨海默病中的下丘脑体积与细胞类型变化
我们接下来探讨了在匹配的亚区内分子信号如何与MRI体积相关,并计算了各模态针对AD状态(淀粉样蛋白阳性且认知受损 vs. 所有其他;MRI为亚区体积;snRNA-seq为pseudobulk PC1;Extended Data Fig. 12a–c)的受试者工作特征曲线下面积(AUROC)。这些模态在某些亚区一致,在另一些亚区则不一致,没有单一模态普遍更优。SCN在转录组上比在体积上更具区分度,这与上文描述的其神经元特征一致。因此,成像和转录组学为下丘脑AD病理提供了非冗余、区域特异性的窗口,将两者结合比单独任一种提供更完整的图景。
为了进行受控的跨物种比较,我们在5xFAD小鼠模型中分析了下丘脑。我们对8月龄雌性5xFAD小鼠和年龄匹配的野生型对照的下丘脑组织进行了snRNA-seq(Extended Data Fig. 13),这处于疾病进展的相对早期阶段。5xFAD下丘脑重现了主要的DAM标志物变化和免疫反应富集(Extended Data Fig. 13 and Supplementary Table 16)。神经元亚型和亚区用HypoMap53进行了注释(Extended Data Fig. 14)。跨亚区的差异表达分析(5xFAD vs. 野生型)突出了SCN内GPCR信号传导和配体–受体相互作用的改变,同时DMH、下丘脑外侧区、ARC和室旁核亚区也存在转录变化(Extended Data Fig. 14 and Supplementary Table 16)。
总之,这些分析揭示了AD中特定下丘脑神经元亚型和亚区的选择性转录失调,尤其影响GABAergic和/或抑制性神经元以及SCN。SCN内神经肽信号传导(例如血管加压素)和GPCR通路的显著改变提示其与昼夜节律紊乱存在机制联系,而昼夜节律紊乱是AD的一个可在认知衰退之前出现的标志。这些发现将下丘脑定位为AD发病机制中关键且易受损害的枢纽,支持针对神经肽-GPCR信号传导、昼夜节律同步或亚区特异性韧性机制的治疗策略,以潜在地缓解临床前AD症状。
讨论
我们的发现提供了多模态视角,展示了下丘脑在衰老和早期AD中如何发生改变,说明了此前未观察到的区域特异性和细胞类型特异性变化。神经影像学研究提示,下丘脑体积与衰老和认知衰退均相关,尽管与其他研究充分的易损脑区相比效应量相对较小54。这种相对的体积稳定性可能反映了该区域在进化上保守的性质及其在生存中的关键作用。在这里,我们使用最近开发的人下丘脑高分辨率图谱15,检测到13个不同下丘脑亚区中的特定体积变化,而这些变化会被低分辨率成像数据的更粗粒度分析所掩盖。
具体而言,我们发现,尽管某些核团(例如下丘脑外侧区)的大小随年龄增长而减小,但其他核团(例如 SCN 和 ARC)在老年人中可表现出体积增加,即使在控制 amyloid-β 病理和认知障碍后也是如此。总之,这些发现表明,即使没有 AD,下丘脑核团也会随衰老发生差异性的体积变化。然而,与衰老和性别相比,在 amyloid-β 沉积和认知障碍背景下,下丘脑核团体积差异更为有限或不存在。这可能与下丘脑早期 AD 相关神经变性低于其他脑区有关,或者相反,与样本量有限时体积分析检测 AD 相关下丘脑效应的敏感性较差有关。此外,与海马等更易受损的脑区相比,整个下丘脑和其他自主神经区域似乎随衰老保持稳定,提示可能存在补偿机制赋予其韧性,因为它在进化上保守且对生存至关重要55。
为了研究 AD 在单个下丘脑核团中的细胞和分子效应,我们对来自对照供者和早期 AD 供者的死后下丘脑组织进行了 snRNA-seq,揭示了与炎症反应和昼夜节律相关的关键分子特征,这些特征可通过机器学习区分对照供者细胞与 AD 供者细胞。进一步通过轨迹推断和差异表达分析,我们发现小胶质细胞、GABAergic 和/或抑制性神经元以及特别是预测来自 SCN 和 DMH 的昼夜节律和睡眠调节神经元存在显著脆弱性。与其他脑区一致,被广泛认为是脑衰老和神经变性介质的小胶质细胞2,41,42,在早期 AD 的下丘脑中尤其容易出现转录重编程,尽管我们的非配对横断面数据无法建立因果或方向性关系。
在 SCN 中观察到的体积和分子脆弱性的一致性表明,下丘脑的昼夜节律回路是衰老和 AD 中潜在脆弱的节点,这使我们的发现置于关于 AD 昼夜节律功能障碍的更广泛文献中。昼夜节律紊乱,包括睡眠-觉醒周期碎片化、日落综合征和褪黑素分泌改变,是 AD 公认的临床特征,通常先于认知症状出现,并可能加速疾病进展8,而 SCN 是调控这些节律的中枢调节器。然而,由于 SCN 属于体积可靠性较低的亚区之一(与乳头体、背侧室周核和结节乳头体核一起),我们对其体积关联的解读格外谨慎;其在我们结论中的参与主要依赖于正交分子证据。我们进一步指出,解析这些小核团的体积变化已接近此处所用基于 3T MRI 方法的极限;超高场 MRI 等新兴技术可能大幅提高体内亚区体积测量的可靠性56。尽管如此,我们的研究增加了汇聚性的体积学和转录组学证据,表明 SCN 和 DMH 在衰老和 AD 中尤其受到影响,其机制包括 SCN 神经元中血管加压素信号失调、小胶质细胞炎症重塑以及与昼夜节律调节相关的 GABAergic 神经元的显著脆弱性。
衰老和阿尔茨海默病中的下丘脑体积与细胞类型变化
回到体积测量结果,我们的分子数据可能为我们在衰老和 AD 中观察到的亚区体积增加提供候选的、尽管是推测性的解释。尽管这些变化很小,单细胞分析指向几种可能构成其基础的细胞机制。5xFAD 全下丘脑小鼠数据中的主要细胞类型组成在早期 AD 动物和对照动物之间相当,这与人类中样本量有限的早期研究57,58一致,提示观察到的体积效应不太可能反映细胞的明显增加或减少,至少在该疾病阶段如此。相反,我们的数据提示细胞大小和状态的变化:我们观察到 ECM 重塑和调节细胞生长的 mTOR 信号传导的富集,同时非神经元细胞中出现炎症特征。一个可能的贡献因素是反应性胶质增生,它在衰老下丘脑中发生,并可在没有神经元丢失的情况下表现为结构性 MRI 上的表观体积增加,正如肥胖中下丘脑的报道59。结合先前关于人类下丘脑随年龄出现神经元肥大的报道60,这些变化提示细胞重塑与宏观结构体积之间可能存在联系。然而我们强调,这种联系是一个假说而非已确立的机制:鉴于单核转录组特征与宏观 MRI 体积之间存在大的空间尺度差距,以及 snRNA-seq 固有的转录噪声,它不能仅从转录组数据推断,而需要空间分辨的蛋白质或组织学验证。更根本地说,完全统一这两种模态仍然具有挑战性。由于体积和分子数据来自不同队列,没有同一个体中的配对、共配准测量,我们没有尝试耦合统计整合,例如多模态嵌入或从影像特征预测分子状态。相反,我们在匹配的解剖亚区比较了每种模态的 AD 预测信号,揭示影像和转录组学为下丘脑病理提供了非冗余且区域特异性的窗口(Extended Data Fig. 12a–c)。真正的整合——在共享统计框架中联合建模体积和分子特征——将需要未来研究从同一个体获取两种模态,理想情况下采用空间共配准采样。
总之,我们结合体积和单细胞的人类下丘脑图谱为阐明衰老和 AD 病理如何差异化影响特定下丘脑亚区和细胞类型提供了高分辨率框架。我们强调 GABA 能和/或抑制性神经元、SCN 和 DMH 昼夜节律调节因子以及炎症性小胶质细胞级联中的显著脆弱性,强调它们在引发早期下丘脑功能障碍中的潜在作用。
方法
影像数据的体积分析
文章标题:衰老与阿尔茨海默病中的下丘脑体积及细胞类型变化
本研究所使用的脑部 MRI 扫描来自两个独立的数据集。第一个来自 AMBR 研究16。第二个来自 CBA 研究17 的数据集被纳入以提升严谨性和可重复性。两项研究均获取了 0.8-mm 各向同性 T1 磁化准备快速梯度回波以及 T2 采样完美配合应用优化对比、使用不同翻转角演化序列,用于特定下丘脑核团的分割和体积分析,如参考文献 15 所述。尽管还存在若干其他高分辨率脑部 MRI 数据集,但 AMBR 和 CBA 研究还获得了脑淀粉样蛋白-β 沉积和认知障碍的评估。AMBR 和 CBA 研究在其他方面的差异,例如队列特征,被视为有助于提升本研究的稳健性和可推广性。分割流程的重测信度使用 ICC((2,1);双向随机效应、绝对一致性、单次测量)在 CBA 研究中八名接受重复扫描的参与者中进行了评估。参照参考文献 61,我们将 ICC < 0.40 归类为差,0.40–0.59 归类为尚可;我们注意到其他方案,如参考文献 62,将差–中等边界设在 0.50。对于 ICC 较差的结构,我们随后用一种互补的分子模态对体积学发现进行了佐证。此处报告的所有关联均基于双侧(左右合并)体积;半球特异性测量本身噪声更大,仅作了描述性考察,未构成我们结论的基础。
为专门评估 AD 对亚区体积的影响,参与者根据其淀粉样蛋白-β 和认知状态进行了分类。淀粉样蛋白状态在可获得时通过淀粉样蛋白正电子发射断层成像或 CSF 生物标志物评估确定,采用研究特定的标准:在 AMBR 中,标记基于 Knight Alzheimer Disease Research Center (ADRC) 对 [carbon-11]-Pittsburgh compound B (C-11 PiB) 标准化摄取值比 (SUVR)、[fluorine-18]-florbetapir (F-18 AV-45) SUVR 的截断值,在 SUVR 数据不可用时通过视觉判读,或通过 CSF 检测结果。在 CBA 研究中,标记基于所提供的 centiloid 值,阈值设为 16.4,对应于 Knight ADRC C-11 PiB 平均皮层 SUVR 截断值 1.42(参考文献 63)。如果淀粉样蛋白-β 状态在 MRI 之前任何时间或之后最多 1 年内为阳性,则标记为阳性。反之,如果淀粉样蛋白-β 状态在 MRI 之后任何时间或之前最多 1 年内为阴性,则标记为阴性。否则淀粉样蛋白-β 状态被视为不可用 (NA)。
认知状态使用研究特定的标准标记为“受损”或“未受损”。在 AMBR 研究中,标记基于临床痴呆评定量表 (CDR),CDR = 0 表示认知未受损,CDR > 0 表示认知障碍。受试者仅在 MRI 前后 ±1 年内被评估为受损时才标记为受损,且仅在 MRI 之后任何时间或之前 1 年内被评估为未受损时才标记为未受损(否则编码为 NA)。在 CBA 研究中,标记基于时间点特异性诊断代码,代码 1 表示认知未受损;代码 2、4、5 和 6 表示认知障碍的证据,代码 3(主观障碍)编码为 NA。
在这两项研究中,同时符合认知障碍标准和 amyloid-β 阳性的个体被指定为 AD 组。相反,无认知缺陷且 amyloid-β 阴性的参与者被归类为 non-AD(对照)组。为尽量减少中间病理特征可能带来的混杂,这些特定比较分析仅纳入明确归入这些 AD 或 non-AD 类别的个体。该队列的平均年龄为 63.4 ± 11.6 岁(平均值 ± 标准差),女性占 60.5%。此外,我们的数据集包含与 AD 直接相关的信息,包括 30.6% 认知状态异常和 13.8% 为 amyloid-β 阳性(Extended Data Fig. 1a)。该队列的平均总下丘脑体积为 736.2 ± 88.2 mm3。
鉴于该数据集没有为所有所需比较预先定义组结构,我们使用 GLM 评估下丘脑亚区体积(左右半球求和)与各种人口学和临床变量之间的关联。
具体而言,在 AMBR 研究(n = 202)中,我们将每个亚区体积的自然对数(log[subregion volume])建模(记为 ‘~’)为 MRI 时经标准化的年龄、性别、认知(cogn.)状态、amyloid-β 沉积状态和其他相关协变量的函数,其中 ‘+’
为评估下丘脑体积在识别 AD 和认知状态中的预测能力,我们使用受试者工作特征分析开展了一系列二元分类任务。定义了三个主要目标条件:(1) 认知状态(受损‘A’对比正常‘N’),(2) 淀粉样蛋白状态(阳性‘P’对比阴性‘N’)和 (3) 复合 AD 组(A+P+ 对比所有其他)。对于每种条件,我们比较了两种不同特征集的诊断性能:一个多变量模型,包含 13 个单独的下丘脑亚区(ARC、下丘脑前区、背侧室周核、DMH、下丘脑外侧区、内侧视前核MPO、室旁核、下丘脑后区、室周核、SCN、视上核、结节乳头体核、腹内侧核);以及一个仅使用总下丘脑体积的单变量模型。分类使用逻辑回归进行,并采用平衡类别权重以考虑潜在的组大小差异。模型性能通过五折分层交叉验证方法验证。特征在模型拟合前于每个训练折内进行标准化(z 分数归一化)。所得曲线下面积按交叉验证折的均值计算,并报告标准差作为模型稳定性的度量。
鉴于下丘脑在能量稳态和代谢调节中的核心作用,我们检查了 BMI 是否与总体及亚区水平的下丘脑体积相关。BMI 与总下丘脑体积无显著关联(估计值 ± s.e. = −0.005 ± 0.007,校正 P = 0.505,扩展数据图 2e 和补充表 4),在 FDR 校正后也与任何双侧亚区体积无显著关联(所有校正 P > 0.086)。在偏侧化分析中,左侧 DMH 显示出与 BMI 的显著负相关(左侧 DMH −0.042 ± 0.014,校正 P = 0.014),尽管在右侧未观察到这一点(右侧 DMH −0.010 ± 0.018,校正 P = 0.664,扩展数据图 2e 和补充表 4)。
死后人脑组织
未固定、速冻的半下丘脑组织获自荷兰脑库(NBB)、荷兰神经科学研究所、阿姆斯特丹(开放获取:www.brainbank.nl)。所有材料均来自供体,NBB 已获得供体或其代表对脑解剖以及将材料和临床信息用于研究目的的书面知情同意。
该同意程序由 VU University Medical Center(Vrije Universiteit, Amsterdam, the Netherlands)的伦理委员会在本研究之前独立批准。组织块储存于 −80 °C。
该队列由 14 名供者组成:7 名无痴呆的对照参与者和 7 名 AD 患者(6 例散发性、1 例家族性)。两组中合并症均常见,且以心血管疾病为主;对照参与者中还包括患有恶性肿瘤的供者(结直肠癌、多发性骨髓瘤、黑色素瘤),而 AD 组中各有 1 名供者患有慢性阻塞性肺疾病和膀胱癌。死亡原因包括急性心脏事件和肺栓塞(对照参与者)、安乐死(2 名对照参与者)、终末期恶性肿瘤(对照参与者),以及呼吸功能不全、吸入性肺炎、恶病质、肠梗阻和因吞咽问题导致的脱水(AD 患者)。没有供者记录有重症监护室入住;所有死亡均发生在社区、养老院或姑息治疗机构中。死后基因表达质量的所有关键决定因素(年龄、死后间隔、脑 pH、RNA 完整性数值和根据临床记录估计的濒死状态)在组间相当(均 P > 0.1,Mann–Whitney U 检验)。所有样本均显示高质量,死后间隔短于 9 h,RNA 完整性数值评分高于 6.5。完整的供者层面临床和神经病理细节可通过 NBB ID 向 NBB 申请获取,NBB ID 可应要求提供。
为克服基于液滴的单细胞测序的输入细胞数限制(每个样本通常捕获数万个细胞)相对于整个下丘脑庞大的细胞数量而言的不足,我们进行了靶向宏观切割。在这项初始研究中,我们优先对三个已涉及衰老和 AD 的亚区进行深入分析,而非对整个下丘脑进行较浅的普查:ARC,能量稳态中枢,包含整合瘦素和胰岛素信号的阿黑皮素原和刺鼠相关肽神经元64,65;SCN,主昼夜节律起搏器,其紊乱是 AD 最早的非认知症状之一睡眠-觉醒障碍的基础66,67;以及乳头体核,Papez 记忆环路的一个组成部分,在 AD 模型中不成比例地易受神经退行性变影响10。总之,这些亚区覆盖下丘脑前后范围,并代表其三个主要功能域:代谢控制、昼夜节律调节和记忆环路。聚焦于三个主要感兴趣区域,即 ARC、SCN 和乳头体核,避免了稀有神经元群体的严重稀释,确保了下游差异表达分析具有足够的采样深度。宏观切割在 Leica 冷冻切片机内于最低温度设置下对半切的下丘脑进行,组织周围放置干冰。为保持 RNA 完整性并防止交叉污染,在每个样本之间对刀片和所有解剖工具进行消毒并用 RNaseZap RNase Decontamination Solution 处理。
动物
野生型和杂合(8 月龄)5xFAD-C57BL/6 雌性小鼠购自 The Jackson Laboratory。小鼠按照 Brown University Institutional Animal Care and Use Committee 批准的方案饲养和使用,并遵守机构和国家指南。动物饲养于 21 ± 1 °C(70 ± 2 °F),湿度 50% 至 70%。动物自由摄取 Lab Diet 5010 饲料和水。光周期为 12 h 光照/12 h 黑暗,7:00 至 19:00 开灯。动物在安乐死前 3 d 接触雄性垫料以同步动情周期。动物在 Zeitgeber 时间 ZT2–ZT3 安乐死。未使用统计方法预先确定样本量。动物未随机分配至实验组。实验或结局评估期间,研究者未对分组设盲。
统计与可重复性
衰老和阿尔茨海默病中的下丘脑体积与细胞类型变化
未使用统计方法预先确定样本量,但我们的供体数量与 AD 中人脑已建立的 snRNA-seq 研究相当,这些研究通常每组分析 3–10 名供体68,69,70。根据质量控制指标(特征计数和线粒体读数计数),单个细胞核被排除在分析之外。数据收集和分析未对实验条件设盲。
snRNA-seq
使用 Nuclei PURE Prep 试剂盒(Millipore Sigma)按照制造商说明进行细胞核提取。所有操作均在冷室中于 45 分钟离心前完成。按照试剂盒说明,使用转移移液管将组织转移至装有 5 ml 裂解液的冷藏 Dounce 匀浆器中。使用 Dounce B 对组织进行匀浆,并将裂解液通过 40-μm 滤器转移至 15-ml Falcon 管中。蔗糖纯化步骤进行了修改:为适应较小的组织样本量,所有试剂均使用一半体积;使用 SW34 转子,样品在 4 °C 下以 30,000g(13,000 r.p.m.)离心 45 分钟。
使用血细胞计数器对细胞核计数,每个样本取 10,000 个细胞核加载到 Chromium Single Cell 3′ Chip(10x Genomics)上,并使用 Chromium Controller(10x Genomics)处理。样本在 GENEWIZ 使用 Illumina NovaSeq 测序,目标为每个样本 50,000 条读数。
质量控制、数据处理和分析
人 snRNA-seq 数据的序列比对(包括来自参考文献 22 的数据集)针对 GRCh38(2020)参考基因组进行。这些比对使用 Cell Ranger(10x Genomics;人类使用 v.7.1.0)并带有 --include-introns 标志执行,该标志对于捕获核 RNA 至关重要。
比对后,使用 CellBender(v.0.3.0)71 从计数矩阵中去除系统性背景噪声,例如环境 RNA。为进行质量控制,根据既定标准识别离群细胞。具体而言,如果细胞在以下任一质量控制指标上超过 5 个中位绝对偏差,则被标记为离群细胞:log1p_total_counts、log1p_n_genes_by_counts 或 pct_counts_in_top_20_genes。此外,线粒体转录本百分比为 10% 或以上的细胞被排除。
随后使用 scDblFinder72 识别并过滤掉潜在的双细胞(两个或更多细胞被捕获为单个液滴)。经过这些质量控制步骤后,使用单细胞变分推断23整合来自不同个体的数据,以校正批次效应。后续数据可视化和下游分析使用 Seurat73 和 Scanpy74 生态系统中的工具进行。
亚区样本从未合并。每名供体提供三个通过粗分离获得的组织样本,分别富集不同的下丘脑亚区(ARC、SCN、MN),14 名老年供体共产生 42 个样本。每个样本收集到单独的管中,并通过独立的 10x Chromium 通道处理,产生独立的文库制备,因此构成生物学和技术上独立的观察,捕获不同的细胞组成和独立的技术变异来源。
使用 pseudobulk 方法结合 edgeR75 中的 LRT 进行差异表达分析。如果 Benjamini–Hochberg 校正后的 P 值低于 0.05,则基因显著。三名年轻参考供体22 仅用于锚定细胞类型注释和小胶质细胞衰老轨迹;所有 AD 与对照的差异表达分析均限定于 HypoAD 队列,排除家族性 AD(AD_44)供体。
使用 fgsea 包76 进行 GSEA,采用 hallmark 基因集列表以及来自 Molecular Signatures Database 的 Kyoto Encyclopedia of Genes and Genomes (KEGG) 和 Reactome 基因集列表76,77。对于 GSEA 输入,每个聚类内的基因根据其 log2 倍数变化 (log2[FC]) 值进行排序,该值由 edgeR LRT 差异表达分析确定。然后使用 fgseaMultilevel() 命令以默认设置进行 GSEA。如果调整后的 P < 0.1,则认为基因集显著富集。
使用 UCE 进行嵌入分析
为了将我们的数据置于更广泛的参考背景中,我们使用了通用细胞嵌入 (UCE) 基础模型。UCE 将单细胞基因表达谱投影到一个通用嵌入空间,该空间与批次效应或协议差异等技术协变量无关78。我们按照其官方仓库 (https://github.com/snap-stanford/UCE) 中的说明,使用 Python (v.3.9.0) 和 PyTorch (v.2.1.1) 以及公开可用的预训练模型权重,实现了 33 层版本的 UCE。
然后,我们使用 UCE 将我们的对照和 AD snRNA-seq 数据集与一个公开可用的、由社区整理的人类大脑图谱(包含超过 2500 万个细胞78)一起投影到一个共享的嵌入空间中。由此产生的嵌入在二维 UMAP 空间中进行可视化,以将我们新生成的数据与这一大规模公共参考进行基准比较。
模型训练和特征排序
为了识别用于区分 AD 与对照个体细胞的分类任务的预测特征,我们使用 Python (v.3.10.9) 和 scikit-learn 库 (v.1.6.1) 开发并应用了一个机器学习流程。完整流程可通过 GitHub (https://github.com/Webb-Laboratory/HypoAD) 获取。
数据子集化
对于细胞类型特异性模型,根据预定义的注释,将完整数据集过滤为仅包含对应于单个目标细胞类型(例如,Neuron、Astrocyte)的细胞。
嵌套交叉验证
我们使用了留一批次嵌套交叉验证策略,以确保稳健的超参数调优,防止数据泄漏,并提供无偏的性能评估。对于七个外部折叠中的每一个,使用内部六折交叉验证来调优模型的超参数。这种方法生成了七个不同的模型,我们从中对基因相关权重进行排序,以识别最具预测性的特征(图3a)。具体来说,所有细胞以及前五种最丰富细胞类型中每一种的数据,根据样本来源批次(留一批次)被分成七个外部折叠。每个批次包含两个供体(一个对照和一个 AD),没有供体出现在超过一个批次中。对于每个外部折叠,测试集由来自单个留出批次的细胞核组成,因此该批次中的两个供体在训练期间完全未见。其余六个批次用于内部留一批次交叉验证,以选择 Elastic Net 逻辑回归模型的最佳超参数。5 × 5 超参数网格包括对正则化参数 C 的对数搜索(从 10−2 到 102)和对 L1 比率的线性搜索(从 0 到 1)。然后,在全部六个训练批次上重新训练具有最佳平均内部折叠 AUROC 的模型,并在留出的测试批次上进行评估。我们首先在所有细胞上训练了一个模型,该模型达到了预测性能(平均 AUROC = 0.75)。然后我们训练了针对五种最丰富细胞类型的模型。所有细胞类型特异性模型也表现良好,其中小胶质细胞模型显示出最高的准确率(平均 AUROC = 0.91)。神经元模型相对较低的性能可能归因于下丘脑神经元的复杂性和异质性(图3b)。
特征权重提取和排序
文章标题:衰老与阿尔茨海默病中的下丘脑体积及细胞类型变化
正文: 在完成外层交叉验证后,我们从七个模型中提取了特征权重(系数),每个模型均在一个外层折上训练。针对每种细胞类型生成了两个特征排序列表。“原始权重”排序依据各特征在七个折上的平均权重对所有特征进行排名,保留符号以指示正向或负向预测关联。“绝对权重”排序依据各特征绝对权重的均值进行排名,以衡量不考虑方向的总预测重要性。
共享特征与细胞类型特异性特征
为识别在所有细胞类型中一致重要的特征,我们将每个基因的“共享分数”定义为其在所分析的五种细胞类型中绝对权重排名的均值,并根据其方向(即该特征位于原始权重排名列表的顶部还是底部)进行着色。特征的特异性排名通过 inquiry_rank/mean_rank_others 定义。
GSEA
为识别与模型预测相关的生物学通路,我们使用 gseapy(v.1.1.9)Python 包进行了预排序 GSEA。针对每种细胞类型,使用平均原始权重对完整特征列表进行排序。该排序列表针对 Molecular Signatures Database 中的 KEGG 通路数据库(v.2021)、Hallmark(v.2020)和 Gene Ontology Biological Process(2021)进行了富集检验。显著性通过基于置换的检验(1,000 次置换)确定,FDR q < 0.05 的通路被视为显著富集。
使用 Monocle3 的轨迹分析
为推断在 Seurat 中生成的小胶质细胞簇(n = 51,420 个细胞核)的衰老过程,我们应用了 Monocle3(参考文献 43,44)。Monocle3 通常使用降维方法将细胞定位在低维空间中,可利用互最近邻对齐校正批次效应,随后以半监督方式连接细胞以构建轨迹。
在我们对小胶质细胞–巨噬细胞簇的分析中,我们直接使用了整合后的 Seurat 对象,绕过了 Monocle3 本身内的任何进一步批次校正或降维步骤,因为这些已在先前的 Seurat 处理中得到解决。在对小胶质细胞簇进行子集化后,轨迹的根节点通过程序化方式定义,即选择最富集来源于年轻个体细胞的主图节点。图 4e 中的横轴代表从单细胞数据中学习到的数据驱动的转录组伪时间,而非按时间顺序的时间线,且个体供体不一定遵循此顺序。随后使用 Monocle3 中实现的 Moran's I 检验沿该推断轨迹进行基于轨迹的表达分析。q 值(FDR 校正 P 值)小于 0.01 的基因被视为显著轨迹依赖,最终鉴定出 13,104 个此类基因。
功能富集分析
使用 Enrichr(v.3.0)79 对 13,104 个 t-DEG 进行功能富集分析,这些基因通过共表达分析被分组到各个表达组中。该分析使用了 GO_Biological_Process_2018 基因集数据库。基于 Benjamini–Hochberg 校正 P 值(Padj)< 0.01 识别出统计学显著富集的 Gene Ontology 术语。为便于可视化,每组中排名前十的显著富集术语以点图展示。
为了解码并可视化 t-DEGs(n = 13,104)沿推断的伪时间轨迹的动态表达模式,我们在 Python(v.3.9.6)中使用 RVAgene 包(v.1.0)48,并配合 PyTorch(v.1.9.0)。输入 RVAgene 之前,每个基因的表达值在离散的伪时间分箱内取平均,随后重新缩放到 [−1, 1] 范围。RVAgene 神经网络配置为对称架构,包括两个隐藏层(每层 48 个节点)和两个潜在变量维度。随后使用 RVAgene 生成的 t-DEGs 平滑、重建的表达轨迹创建汇总热图。
mTOR 与 ECM 模块评分
组装了两个基因集,用于对 mTOR(PI3K-AKT-mTOR) 信号传导和 ECM(matrisome)活性进行评分。每个基因集都始于一份经过整理的经典基因列表:对于 mTOR,是核心通路组分和下游脂质–固醇效应因子;对于 ECM,是 matrisome 组成成分,包括胶原蛋白、层粘连蛋白、蛋白聚糖、基质金属蛋白酶及其抑制剂(MMPs 或 TIMPs)和 ADAMTS 蛋白酶。每个种子列表通过基因符号模式匹配(例如 COL[0–9] + A[0–9]、MMP[0–9]、LAM[ABC][0–9])扩展,并经过滤去除无关的“相似”家族(例如线粒体输入基因 TIMM/TOMM、TIMELESS),然后限制为数据集中检测到的基因,最终得到 70 个 mTOR 基因和 157 个 ECM 基因(Supplementary Table 9,选项卡 mTOR_set 和 ECM_set)。
计数用 Seurat 的 NormalizeData 归一化(对数归一化,比例因子 10,000)。每个细胞的模块评分用 Seurat 的 AddModuleScore 计算(默认参数:24 个表达分箱,每个集合基因对应 100 个随机抽样基因的对照池),该方法从目标集的平均表达中减去随机选择的对照基因集的平均表达。mTOR 和 ECM 评分联合计算(Score1 = mTOR,Score2 = ECM)。为进行统计检验,供体被分为年轻组、对照组或 AD 组。为避免伪重复,将每个细胞的评分按样本水平聚合:在每个样本内,对给定细胞类型的所有细胞取平均评分,仅保留细胞数不少于十个的样本 × 细胞类型组合。对每种细胞类型和基因集,使用双侧 Wilcoxon 秩和检验比较对照组与 AD 样本之间的模块评分,并使用 Benjamini–Hochberg 方法对所有细胞类型 × 基因集检验进行多重比较校正 P 值。分析在 R 中使用 Seurat 和 rstatix 进行。
使用 cell2location 进行空间映射
Cell2location 是一种贝叶斯模型,利用 snRNA-seq 细胞类型特征,通过将每个 Visium 体素中的信使 RNA 计数分解为细胞类型,在 Visium 空间转录组学中推断细胞类型。我们执行了 cell2location 工作流中的三个主要步骤:使用我们的数据集估计细胞类型的参考表达特征,将学习到的细胞类型特征映射到切片上,并进行下游分析。代码、模型参数和训练评估可在我们 GitHub 仓库中的 Jupyter notebooks 中找到。简言之,我们使用默认参数训练 cell2location 模型。
蛋白质组学验证
腰椎 CSF 样本来自 280 名参与者(包括健康对照、AD 和其他病症)的队列,采用液相色谱-串联质谱进行分析。样本在与 Thermo Orbitrap Eclipse Tribrid 质谱仪联用的 Thermo EASY-nLC 1200 系统上处理。详细的色谱和数据采集参数遵循参考文献 80 中描述的方法。通过跨 96 孔板的批次间和实验间样本维持质量控制,以评估并校正技术效应。蛋白质定量通过使用 EncyclopeDIA 将原始谱图映射到经经验校正的 Prosit81 文库(通过气相分级、窄窗口进样生成)来完成,峰积分和蛋白质映射在 Skyline 中最终完成。
在 R 中,使用 limma 和 eBayes 框架82 对预处理并 log2 归一化的蛋白质定量表进行差异丰度分析,以比较 AD 患者(n = 19)与健康对照组(n = 205)。差异蛋白质丰度的统计显著性定义为 Padj < 0.05。
为在蛋白质水平验证细胞类型特异性转录组特征,将显著的 CSF 蛋白质与单细胞 pseudobulk 分析得到的显著 DEGs(Padj < 0.05)取交集。为解决不同模态之间的命名不一致,实施了‘fuzzy-join’逻辑。该方法基于精确匹配、前缀对齐和反义转录本识别,将蛋白质符号与 RNA 符号进行匹配。
对小胶质细胞拟时序分析中九个衰老相关和 AD 相关标志物(图 4f 中的 CSF1R、CX3CR1、P2RY12、APOE、B2M、CTSB、AXL、CLEC7A 和 TIMP2)的验证,是通过使用不区分大小写的子串匹配从 CSF 蛋白质组学表达矩阵中提取其相应特征来完成的。为分离出年龄相关与疾病相关的蛋白质轨迹,将健康对照队列进一步分层为‘年轻’(小于 65 岁)和‘年老’(65 岁及以上)亚组,并据此进行可视化。尽管蛋白质轨迹显示出与基因表达数据相似的趋势,统计分析未显示组间存在显著差异。
在 PsychAD 队列中的外部验证
AD 相关转录组特征基于 PsychAD Consortium 的人类背外侧前额叶皮层单核 RNA-seq 资源(Mount Sinai Brain Bank 队列)进行验证,该资源从 CELLxGENE Discover(https://cellxgene.cziscience.com/collections/84ce6837-548d-4a1f-919f-0bc0d9a3952f)获取。使用了两个版本:用于疾病比较的 AD 富集队列,以及用于衰老分析、覆盖成年期的神经学正常队列。在所有分析中,使用数据集提供的 feature_name 字段将 Ensembl 基因 ID 映射到 HUGO Gene Nomenclature Committee 符号,并将原始 counts 归一化为每细胞 10,000 counts 并进行 log1p 变换。
为评估跨队列差异表达的一致性,在主要细胞类型水平上将 PsychAD 细胞类型映射到其 HypoAD 对应类型。非神经元群体(星形胶质细胞、小胶质细胞、少突胶质细胞、OPCs 和内皮细胞)被赋予直接的一对一对应关系。由于神经元亚型在很大程度上具有区域特异性,且 PsychAD 中注释的皮层亚型与下丘脑群体并非一一对应,因此将 PsychAD 中更细的神经元亚型聚合为谷氨酸能谱系和 GABA 能(GABA)谱系;对每个基因,将 FDR 最低的亚型结果作为该谱系的代表性统计量。使用 edgeR 按细胞类型计算 pseudobulk 差异表达(AD 与对照),并通过绘制共享基因的配对 log2[FC] 在不同数据集间进行比较。AD 相关变化的方向一致性通过 Spearman 秩相关(ρ)在两个数据集中均显著差异表达(FDR < 0.05)的基因子集上量化。
对于小胶质细胞 DAM 模块评分,稳态小胶质细胞(HEXB、CST3、CX3CR1、CSF1R、CTSS、TMSB4X、P2RY12、C1QB)、DAM1(TYROBP、CTSB、APOE、B2M、FTH1、TREM2)和 DAM2(TREM2、AXL、CST7、CTSL、LPL、CD9、CSF1、ITGAX、CLEC7A、LILRB4、TIMP2)的模块评分使用 scanpy.tl.score_genes(类似于 Seurat 的 AddModuleScore)计算。在衰老队列中,评分先按供体平均,再按年龄分箱平均,通过 Spearman ρ 与年龄相关,并用局部加权散点图平滑(带宽 0.6)展示;单个代表性基因以散点图对供体年龄展示(局部加权散点图平滑带宽 0.5),并以小提琴图比较小于 65 岁的供体与 65 岁及以上的供体。在 AD 队列中,在四个供体组(年轻、对照、AD 和家族性 AD)中生成相同的基因水平可视化。
伦理声明
AMBR-MRI 取自涉及正电子发射断层扫描成像的研究,这些研究已获圣路易斯的 Washington University 的放射性药物研究委员会和机构审查委员会批准。所有参与者均提供了书面同意。涉及人类参与者的 CBA-MRI 研究由 University of Pittsburgh 的人类研究保护办公室审查并批准。所有参与者均提供了参与研究的书面知情同意17。所有针对死后组织的程序和研究方案均由 Brown University 的机构审查委员会批准。所有研究均按照相关指南和法规进行。使用死后组织的知情同意已从所有供体或其近亲处获得。
报告摘要
有关研究设计的更多信息可在与本文链接的 Nature Portfolio Reporting Summary 中获取。